إفراز
المحتويات
- الوظيفة
- الآلية
- الإفراز غير التقليدي
- نظام الإفراز من النمط الثاني
- 3. إفراز الجسيمات الحالة lysosomal secretion
- نظام الإفراز من النمط السادس
- في النسج البشرية
- التفاعلات
- البنية
- نظام الإفراز من النمط الرابع
- نظام الإفراز من النمط الثالث
- تحرر حويصلات الغشاء الخارجي
- في الجراثيم سلبية الغرام بكتيريا سلبية الغرام
- نظام الإفراز من النمط الأول
- نظام الإفراز من النمط الخامس
- الإفراز لدى الجراثيم إيجابية الغرام
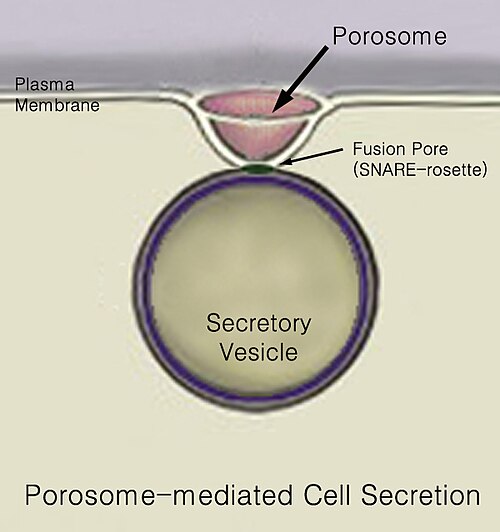
قبل الخوض في التفاصيل، الإفراز هو حركة المواد من نقطة إلى أخرى، مثل إفراز مادة كيماوية من الخلية أو الغدة. بالمقابل، إن الإخراج، هو إزالة مواد أو فضلات محددة من خلية أو عضو. إن الآلية التقليدية لإفراز الخلية هو عبر بوابات إفرازية في الغشاء الخلوي البلازمي المسماة . إن الأجسام المسامية هي بنى جزيئية ضخمة دائمة، شحمية بروتينية، تأخذ شكل الكأس موجودة في الغشاء الخلوي للخلايا حقيقية النوى حيث إن الحويصلات الإفرازية ترسو عليها بشكل مؤقت عبر عملية والإفراز. تتم عملية الالتحام العابر لغشاء الحويصل الإفرازي عند قاعدة الجسيم الإفرازي بتواسط ، مما يؤدي إلى تشكل مسام الالتحام أو الاستمرارية من أجل تحرير المحتويات الموجودة داخل الحويصل والمطلوب إفرازها من الخلية. بعد أن تكتمل عملية الإفراز، فإن مسام الالتحام المتشكل بشكل مؤقت في قاعدة جسيم الإفراز يغلق. إن الجسيمات المسامية تكون متناهية في الصغر من حيث الحجم حيث تقيس بضعة نانومترات وتحتوي على أنماط مختلفة ومتعددة من البروتينات، خاصة أقنية الكالسيوم والكلور، الأكتين وبروتينات سنار التي تتواسط في عملية رسو والتحام الحويصلات مع غشاء الخلية. حالما تنتهي الحويصلات من عملية الرسو باستخدام بروتينات سنار فإنها تنتفخ، مما يزيد من الضغط الداخلي فيها. تلتحم الحويصلات عندئذ بشكل عابر مع قاعدة الجسيم المسامي، وتضغط المحتويات الموجودة ضمنها وتقذفها خارج الخلية. إن فحص الخلايا بعد عملية الإفراز باستخدام المجهر الإلكتروني، يوضح وجود متزايد للحويصلات الفارغة بشكل جزئي بعد عملية الإفراز. إن هذا يقترح بإنه خلال عملية الإفراز، فقط جزء من المحتويات الحويصلية يكون من الممكن إخراجها من الخلية. وفيما يلي تفاصيل أوسع عن ذلك.
من جانب آخر، إن الإفراز في أنواع الجراثيم يعني عبور أو تبدل موضع الجزيئات المستجيبة للمنبهات مثلًا: البروتينات، الأنزيمات أو الذيفانات (مثل ذيفان الكوليرا في الجراثيم الممرضة مثلًا ضمات الكوليرا من داخل (السيتوبلازم أو العصارة الخلوية) للخلية الجرثومية إلى خارجها. إن الإفراز هو عملية في غاية الأهمية من أجل الوظيفة الجرثومية والعملية الجرثومية في بيئتها المحيطة من أجل التأقلم والنجاة.
في الخلايا حقيقة النوى
الوظيفة
كذلك، باختصار، إن نظام الإفراز من النمط الرابع (T4SS) ، هو الآلية العامة التي تفرز بها الخلايا الجرثومية الجزيئات الكبيرة أو تقبطها. آليتها الدقيقة لا تزال غير معروفة. يتم ترميز نظام الإفراز من النمط الرابع على عناصر الاقتران سلبية الغرام Gram-negative conjugative elements في الجراثيم bacteria . إن نظام الإفراز من النمط الرابع هو عبارة عن معقدات ممتدة لتغلف الخلية cell envelope-spanning complexes أو بعبارة أخرى مجموعة بروتينات أساسية يتراوح عددها بين 11-13 تشكل قناة والتي يمكن من خلالها انتقال الحمض الريبي النووي منقوص الأكسجين DNA والبروتينات من البلازما الخلوية التابعة للخلية المانحة إلى البلازما الخلوية التابعة للخلية المتلقية.
من جهة ثانية، علاوةً على ذلك ، يفرز نظام الإفراز من النمط الرابع (T4SS) كذلك بروتينات عامل الفوعة virulence factor proteins مباشرة داخل الخلايا المضيفة فضلًا عن قبط الحمض الريبي النووي منقوص الأكسجين DNA من الوسط medium أثناء التحول الطبيعي natural transformation، مما يدل على براعة جهاز إفراز الجزيئات الكبيرة هذا.
الآلية
وفي هذا الصدد، في النهاية، يحدث اندماج الحويصل vesicle fusion حيث يتم إندماج الحويصل الإفرازي مع الغشاء الخلوي بمستوى البنية الخلوية المسماة الجسيم المسامي، وذلك من خلال عملية تسمى الإفراز الخارجي exocytosis، حيث تفرغ الحويصلات الإفرازية محتوياتها خارج بيئة الخلية.
وعلى صعيد آخر، إن عملية ضبط كيميائية حيوية biochemical صارمة للغاية تحكم هذه السلسلة المتعاقبة من الأحداث الخاصة بالنقل والإفراز وذلك باستخدام ممال درجة الحموضة pH gradient: حيث إن درجة حموضة السائل الخلوي هي 7.4، درجة حموضة الشبكة البلازمية الداخلية الخشنة هي 7.0، درجة الحموضة داخل جهاز كولجي هي 6.5. درجة الحموضة داخل الحويصلات الإفرازية تتراوح بين 6.0 و 5.0؛ بعض الحويصلات الإفرازية تتطور لتشكل الأجسام الحالة lysosomes، والتي تمتلك درجة حموضة 4.8.
إضافةً إلى ذلك، تمتلك الخلايا حقيقة النوى، بما فيها الخلايا البشرية ، عملية إفراز متطورة للغاية. يتم تصنيع البروتينات المستهدف ارسالها للخارج بواسطة الريبوسومات الملتصقة بالشبكة الإندوبلازمية الخشنة. حالما يتم تصنيع هذه البروتينات يتم نقلها إلى داخل لمعة الشبكة البلازمية الداخلية الخشنة، حيث تتم عملية اقترانها بالسكريات glycosylated ( عملية الاقتران بالسكريات تعني التعديل الإضافي والارتباط التساهمي لبقايا الكربوهيدرات مع جزيء الركيزة) ومن ثم تساعد بروتينات الشابرون chaperones في عملية تطوي البروتين protein folding (عملية تطوي البروتين هي تحويل جزئي البروتين من الشكل الخطي ثنائي الأبعاد إلى البنية ثلاثي الأبعاد لجزيئ البروتين). إن البروتينات المطواة بشكل خاطئ يتم تحديدها عادة هنا ويتم نقلها بواسطة الشبكة البلازمية الداخلية الخشنة إلى السائل الخلوي، حيث يتم تدركها وتحطيمها بواسطة الأجسام الحالة proteasome (إن الأجسام الحالة هي معقدات بروتينية داخل خلوية تقوم بوظيفة تحلل وتدرك البروتينات غير الضرورية والتالفة ضمن الخلية). إن الحويصلات vesicles التي تحتوي على البروتينات المطواة بشكل مناسب وصحيح تدخل عندئذ جهاز كولجي Golgi apparatus.
وفي السياق ذاته، في جهاز كولجي، يتم تعديل ارتباط السكريات على البروتينات ويمكن أن تحدث تعديلات إضافية أخرى على البروتين أبعد من شكله بعد مرحلة الترجمة posttranslational modifications، بما في ذلك تقسيمه cleavage وتحويله إلى بروتين وظيفي. عندئذ يتم نقل البروتينات proteins إلى داخل الحويصلات الإفرازية التي تسير على طول الهيكل الخلوي cytoskeleton إلى حافة الخلية. إن تعديلات إضافية يمكن أن تحدث في الحويصل الإفرازي (مثلًا إن تقسيم طليعة الأنسولين proinsulin للحصول على الأنسولين insulin يتم داخل الحويصل الإفرازي).
الإفراز غير التقليدي
كذلك، 1. النقل المباشر للبروتينات عبر الغشاء البلازمي ومن المحتمل أن هذا الأمر يتم من خلال نواقل الغشاء.
وفي هذا السياق، 2. النقل بطريقة تشكل الدمعات blebbing، وذلك بتشكيل انتفاخ في الغشاء البلازمي للخلية يشبه الدمعة.
ومن جهة أخرى، هناك الكثير من البروتينات مثل البروتين FGF1 والمعروف بـ aFGF ، البروتين FGF2 والمعروف بـ bFGF، الانترلوكين 1 (IL1) الخ والتي لا تمتلك تسلسل الإشارة. إن هذه البروتينات لا تستعمل الطريق التقليدي المتمثل بالشبكة البلازمية الداخلية الخشنة - جهاز كولجي ER-Golgi pathway.
من جانب آخر، على الأقل هناك أربع طرق غير تقليدية موصوفة لنقل البروتينات. تتضمن هذه الطرق:
نظام الإفراز من النمط الثاني
وفي السياق ذاته، بمجرد وصول البروتينات المقرر إفرازها إلى البلازما المحيطية periplasm، فإنها تمر من خلال الغشاء الخارجي عبر معقد مسام متعدد الأقطاب multimeric complex of pore (مؤلف من 12-14 وحدة فرعية subunits) مكون من بروتينات السيكريتين secretin. فضلًا عن بروتين السيكريتن ، فإن 10-15 بروتينا من البروتينات الغشائية الداخلية والخارجية الأخرى يتشاركون جميعا في تشكيل جهاز الإفراز الكامل full secretion apparatus، والكثير من هذه البروتينات لا تزال مجهولة الوظيفة. إن النمط الرابع من جهاز الوخز الحركي Type IV Pilus Twitching Motility لدى سلبيات الغرام يستعمل نسخة معدلة من نظام الإفراز من النمط الثاني Type II secretion system من أجل تشكلها الحيوي biogenesis، وفي بعض الحالات يتم مشاركة بعض البروتينات بين معقد الوخز الحركي pilus complex ونظام الإفراز من النمط الثاني Type II secretion system ضمن الأنواع الجرثومية الواحدة single bacterial species.
ومن ناحية أخرى، إن البروتينات المفرزة من خلال نظام الإفراز من النمط الثاني، أو الفرع الطرفي الرئيسي للطريق الإفرازي العام، تعتمد على نظام Sec أو Tat من أجل النقل البدئي إلى داخل البلازما المحيطية periplasm (إن البلازما المحيطية تعريفا هي المطرق المركز الشبيه بالجل concentrated gel-like matrix في المسافة ما بين الغشاء البلازمي الخلوي الداخلي والغشاء الخارجي لدى الجراثيم سلبية الغرام).
3. إفراز الجسيمات الحالة lysosomal secretion
ومن ناحية أخرى، 4. التحرر عبر الأجسام الخارجية المشتقة من أجسام حويصلية متعددة.
ومن ناحية أخرى، بالإضافة لذلك، يمكن أن تتحرر البروتينات من الخلايا من خلال الجروح الميكانيكية والفيزيولوجية ومن خلال المسام السرطانية العابرة غير القاتلة في الغشاء البلازمي المحدثة بواسطة غسل الخلايا باستخدام الوسائط أو السوائل الدرائة الخالية المصل.
نظام الإفراز من النمط السادس
وفي هذا الصدد، تم تحديد نظام الإفراز من النمط السادس أصلا في سنة 2006 من قبل مجموعة جون ميكالانوس John Mekalanos في كلية الطب بجامعة هارفارد Harvard Medical School (بوسطن Boston، الولايات المتحدة الأمريكية USA) في اثنين من العوامل الممرضة الجرثومية، ضمات الكوليرا Vibrio cholerae و الزوائف الزنجارية Pseudomonas aeruginosa.
إضافةً إلى ذلك، تم تحديد هذا النظام الإفرازي من النمط السادس عندما أدت الطفرات في جينات Hcp و VrgG في ضمات الكوليرا Vibrio cholerae إلى انخفاض الضراوة virulence والقدرة على إحداث المرض pathogenicity.منذ ذلك الحين، تم العثور على نظام الإفراز من النمط السادس في 25% من جميع مورثات جراثيم بروتوس proteobacterial genomes، بما في ذلك العوامل الممرضة pathogens الحيوانية والنباتية والبشرية ، فضلًا عن جراثيم التربة، البيئة أو البحر.في حين أن أغلب الدراسات المبكرة المجراة حول نظام الإفراز من النمط السادس قد ركزت على دوره في إحداث الإمراضية pathogenesis لدى الكائنات الحية العليا higher organisms، فإن الدراسات الحديثة المجراة مؤخرا اقترحت دورًا فيزيولوجيًا أوسع في الدفاع ضد الخلايا المفترسة حقيقية النواة البسيطة simple eukaryotic predators ودورها في التفاعلات بين الجراثيم inter-bacteria interactions.
علاوةً على ذلك، إن مجموعات مورثات نظام الإفراز من النمط السادس تحتوي على مورثات يتراوح عددها من 15 إلى أكثر من 20 مورثة، اثنتان من هذه المورثات هما Hcp و VgrG، قد ثبت أنها ركائز لهذا النظام substrates of the system مُفرزة دوما على وجه التقريب بدون استثناء. إن التحليل البنيوي Structural analysis لهذه البروتينات وغيرها من البروتينات الموجودة في نظام الإفراز من النمط السادس تحمل تشابهًا صارخًا مع شوكة ذيل الفَيْرُوسٌ المفترس للجراثيم T4 (المصطلح الإنكليزي: tail spike of the T4 phage)، ويُعتقد أن نشاط هذا النظام الإفرازي من النمط السادس يشابه وظيفيا إصابة الجراثيم بالفَيْرُوسٌ الجرثومي phage.
في النسج البشرية
علاوةً على ذلك، إن الكثير من أنماط الخلايا البشرية تمتلك القدرة على أن تكون خلايا إفرازية. إنها تمتلك جهاز شبكي بلازمي داخلي وجهاز كولجي متطوران ليلبيا متطلبات هذه الوظيفة. إن الأنسجة التي تنتج مفرزات تتضمن السبيل المعدي المعوي والذي يفرز الأنزيمات الهاضمة والحمض المعدي ، الرئتيان واللتان تفرزان السورفكتانت surfactants وهي مادة خافضة للتوتر السطحي مما تسمح للأسناخ الرئوية بالبقاء منفتحة وتمنع انخماصها، والغدد الزهمية sebaceous glands التي تفرز الزهم sebum لتزيت الجلد والشعر. كذلك تفرز غدد ميبوميان Meibomian glands الموجودة في العين مادة الميبوم meibum التي تعمل على تزيت وحماية العين.
التفاعلات
ومن جهة أخرى، ملاحظة: إن الأنابلاسما Anaplasma هي جنس genus جرثومي bacteria من جراثيم بروتوس ألفا alpha proteobacterial (تم تسميتها هكذا نسبة إلى إله البحر اليوناني بروتيوس Proteus القادر على اتخاذ الكثير من الأشكال المختلفة (وليس نسبة إلى جرثوم البروتيوس Proteus)، وذلك نظرًا للتنوع الكبير في الأشكال الموجودة في هذه المجموعة) من رتبة الريكيتيسيات order Rickettsiales، عائلة الأنابلاسماتاسيا family Anaplasmataceae.
ومن ناحية أخرى، إن الريكتسيا Rickettsia هي كائنات دقيقة طفيلية وتعتبر بين البكتيريا والفيروس.
وعلى صعيد آخر، الأول: ATS-1، والذي يرمز إلى الركيزة -1 المنقولة بجراثيم الأنابلازما (بالإنكليزية: Anaplasma translocated substrate 1 ).ثانيا: AnkA،والذي يرمز إلى البروتين A الحاوي على نطاق تكرار الأنكيرين (بالإنكليزية: ankyrin repeat domain-containing protein A).
إضافةً إلى ذلك، علاوةً على ذلك ، فإن بروتينات اقتران نظام الإفراز من النمط الرابع هي VirD4، التي تقوم بالارتباط بـ VirE2.
ومن ناحية أخرى، إن نظام الإفراز من النمط الرابع يحتوي على نوعين إثنين من البروتينات المستجيبة للمنبهات:
البنية
وفي هذا السياق، في نظام الإفراز من النمط الرابع يتكون TraC، على وجه الخصوص من حزمة حلزونية ثلاثية وزائدة كروي فضفاضة.
نظام الإفراز من النمط الرابع
وفي هذا السياق، إن جراثيم المتلوية البوابية Helicobacter pylori تستعمل نظام الإفراز من النمط الرابع لنقل CagA إلى داخل الخلايا الظهارية المعدية gastric epithelial cells، والتي تترافق مع التسرطن المعدي gastric carcinogenesis.تفرز جرثومة البورديتيلا الشاهوقية Bordetella pertussis، وهي العامل الممرض المسبب للسعال الديكي whooping cough، سموم السعال الديكي pertussis toxin بشكل جزئي من خلال نظام الإفراز من النمط الرابع T4SS.إن الفَيْلَقِيَّةٌ الأَلِيفَةُ للرِئَة Legionella pneumophila (وهي العامل المسبب لمرض الفيلقة legionellosis المعروف بداء الفيالق Legionnaires' disease) تمتلك نظام الإفراز من النمط الرابع B (بالإنكليزية: type IVB secretion system)، والذي يعرف بنظام icm/dot (أي نظام التضاعف داخل الخلوي/ الخلل في مورثات تهريب العضيات، حيث أن المصطلح باللغة الإنكليزية يأخذ الحرف الأول من كل كلمة: intracellular multiplication / defect in organelle trafficking genes system ). إن الفَيْلَقِيَّةٌ الأَلِيفَةُ للرِئَة Legionella pneumophila تستعمل نظام icm/dot لنقل البروتينات الضخمة المستجيبة للمنبهات numerous effector proteins إلى داخل الخلية حقيقية النواة المضيفة للجرثوم.
إضافةً إلى ذلك، إن النموذج الأولي prototype لنظام الإفراز من النمط الرابع A (المصطلح بالإنكليزية: Type IVA secretion system) هو المعقد VirB الخاص بالأَجْرَعِيَّةُ المورِمَة Agrobacterium tumefaciens.إن أعضاء البروتين في هذه العائلة هم مكونات نظام الإفراز من النمط الرابع. إن هذه البروتينات تتواسط عملية النقل داخل الخلوي intracellular للجزيئات الكبيرة macromolecules عبر آلية مرتبطة سلفًا بتلك الآليات الخاصة بالاقتران الجرثومي bacterial conjugation.
إضافةً إلى ذلك، إن نظام الإفراز من النمط الرابع مماثل لآلية اقتران conjugation machinery الجراثيم. إن هذا النظام قادر على نقل كلا من الحمض الريبي النووي منقوص الأكسجين DNA والبروتينات proteins. لقد تم اكتشاف هذا النظام في جرثومة الأَجْرَعِيَّةُ المورِمَة Agrobacterium tumefaciens ، والتي تستعمل هذا النظام لإدخال الجزء T-DNA من البلازميد Ti plasmid إلى النبات المضيف، والذي بدوره يتسبب في تطور المنطقة المصابة إلى مرارة تاجية crown gall (ورم tumor). (ملاحظة: إن المرارة التاجية crown gall هي مرض يصيب النبات والذي يحدث بسبب الجراثيم التي تعيش في التربة والمسماة الأَجْرَعِيَّةُ المورِمَة Agrobacterium tumefaciens. إن هذا الجرثوم يسبب نموا غير طبيعي أو ما يعرف بالمرارات galls (النتوءات) على الجذور roots، الأغصان twigs والفروع branches في شجيرات الإيونيموس euonymus shrubs (وهي شجيرات دائمة الخضرة موزعة على نطاق واسع أو أشجار صغيرة أو كروم) أو الشجيرات الأخرى بشكل أساسي في عائلة الورد rose family. إن هذه الجراثيم تحرض على النمو السريع لخلايا النبات مما يسبب تشكل المرارات galls.
نظام الإفراز من النمط الثالث
من جانب آخر، يقوم نظام Hrp لدى العوامل الممرضة للنبات بحقن الهاربينات harpins والبروتينات المسببة للمرض من خلال آلية مشابهة داخل النباتات. (ملاحظة: الهاربينات harpins هي بروتينات مستقرة ضمن الظروف الحرارية وهي غنية بالغلايسين وهي تفرز من قبل نظام الإفراز من النمط الثالث T3SS في الجراثيم سلبية الغرام المسببة للأمراض في النباتات). تم اكتشاف نظام الإفراز هذا لأول مرة في اليَرْسَنِيَّةٌ الطَاعُونِيَّة Yersinia pestis وأظهر أنه من الممكن حقن السموم toxins مباشرة من السائل البلازمي الجرثومي في السائل البلازمي لخلايا مضيفها بدلاً من مجرد إن يتم إفراز هذه السموم ببساطة ضمن الوسط خارج الخلية الجرثومية extracellular medium.
ومن جهة أخرى، إن نظام الإفراز من النمط الثالث متماثل مع الجسم القاعدي في الأسواط البكتيرية. إنه يشبه حقنة جزيئية التي يمكن من خلالها للجرثوم (مثل أنواع معينة من السالمونيلا Salmonella، والشيغيلا Shigella، واليرسينيا Yersinia، والضمات Vibrio) حقن البروتينات في الخلايا حقيقية النواة eukaryotic cells. إن تركيز شوارد الكالسيوم Ca2+ المنخفض في السائل الخلوي يفتح البوابة التي تنظم نظام الإفراز من النمط الثالث T3SS. إن أحد الآليات التي تقوم بتحري انخفاض تركيز الكالسيوم قد تم توضيحها بواسطة المستضد lcrV (الاستجابة للكالسيوم المنخفض) lcrV (Low Calcium Response) antigen المستعملة من قبل اليَرْسَنِيَّةٌ الطَاعُونِيَّة Yersinia pestis والتي تستعمل للكشف عن تركيزات الكالسيوم المنخفضة وتحرض على الارتباط بنظام الإفراز من النمط الثالث T3SS.
تحرر حويصلات الغشاء الخارجي
كذلك، إلى جانب استخدام المعقدات متعددة البروتينات multiprotein complexes المذكورة أعلاه ، تمتلك الجراثيم سلبية الغرام Gram-negative bacteria طريقة أخرى لإطلاق المادة خارج الخلية وهي: تكوين حويصلات الغشاء الجرثومي الخارجي bacterial outer membrane vesicles.
من جانب آخر، يتم اقتطاع أجزاء من الغشاء الخارجي للجرثوم، وتشكيل هياكل كروية من حجم نانو مؤلفة من طبقة ثنائية من الدهون الغنية بعديد السكاريد وهذه الهياكل الكروية تحتوي في داخلها على مواد البلازما المحيطية periplasmic materials (إن البلازما المحيطية periplasma هي البلازما الموجودة أساسا بين الغشاء الداخلي والغشاء الخارجي للجرثوم) وتسمى هذه الهياكل الكروية بحويصلات الغشاء الخارجي outer membrane vesicles حيث يتم نقل المحتويات المصنعة داخل الخلية حقيقة النواة من مواضع التصنيع والتخزين إلى حويصلات الغشاء الخارجي outer membrane vesicles ليتم فيما بعد نشرها وتفريغ محتوياتها خارج الجرثوم حيث تعرف هذه العملية بتهريب الحويصلات الغشائية membrane vesicle trafficking والتي تسمح للجرثوم بالتلاعب بالبيئة المحيطة به أو أن يغزو مضيفا من خلال واجهة المضيف - العامل الممرض host-pathogen interface. لقد وُجد أن حويصلات الغشاء الخارجي outer membrane vesicles التابعة لعدد من الأنواع البكتيرية تحتوي على عوامل ضراوة virulence factors، وبعضها له تأثيرات معدلة مناعية ، وبعضها يمكن أن تلتصق مباشرة بالخلايا المضيفة وتسممها. تم إثبات إطلاق الحويصلات كاستجابة عامة لظروف الشدة stress conditions، ويبدو أن عملية تحميل بضائع البروتينات process of loading cargo proteins انتقائية.
في الجراثيم سلبية الغرام بكتيريا سلبية الغرام
وفي هذا السياق، إن الإفراز ليس عملية فريدة ومقتصرة على الخلايا حقيقية النواة eukaryotes - إنها كذلك عملية موجودة لدى العتائق archaea (العتائق مفردها عتيقة وهي مجموعة من العضيات بدائية النواة prokaryotes وحيدm الخلية والتي تفتقر إلى وجود نواة حقيقية وتمتلك بدلا من ذلك طليعة نواة) إلى جانب الجراثيم (وهي الشكل الآخر لبدائيات النوى prokaryotes الأكثر تطورا من العتائق archaea). تعتبر النواقل من نوع النمط ABC ذات الشريطة الرابطة للأدينوزين ثلاثي الفوسفات ATP (المصطلح الإنكليزي ATP binding cassette) شائعة في قطاعات الحياة الثلاثة (الخلايا حقيقة النوى والجراثيم والعتائق). إن بعض البروتينات المفرزة والمنقولة عبر الغشاء البلازمي الخلوي بواسطة الناقل الإفرازي المسمى Sec translocon، وهو واحد من إثنين من أنظمة النقل، والتي تتطلب وجود ببتيد إشارة انتهائي في النهاية الأميدية N على البروتين المفرز. إن بقية البروتينات تنقل عبر الغشاء البلازمي الخلوي عبر طريق النقل ذو الأرجنين التوأم twin-arginine translocation pathway Tat. إن الجراثيم سلبية الغرام Gram-negative bacteria تمتلك غشائين إثنين، وبالتالي تجعل عملية النقل طوبوغرافيا أصعب. يوجد على الأقل ستة أنظمة نقل لدى الجراثيم سلبية الغرام. إن الكثير من البروتينات المفرزة تكون هامة بشكل خاص في إحداث الإمراضية الجرثومية.
ومن جهة أخرى، في الجراثيم سلبية الغرام نجد ستة أنماط لأنظمة الإفراز، إلى جانب وجود طريقة مختلفة عن الأنظمة الستة السابقة متمثلة بتكوين حويصلات الغشاء الجرثومي الخارجي وتحريرها.
نظام الإفراز من النمط الأول
من جهة ثانية، إن الإفراز من النمط 1 هو نظام إفراز يعتمد على المرافق chaperone باستخدام مجموعات المورثات Hly وTol. تبدأ العملية عندما يتم التعرف على التسلسل الرئيسي للبروتين المراد إفرازه بواسطة HlyA وربط HlyB على الغشاء. إن تسلسل الإشارة هذا محدد للغاية بالنسبة للناقل ABC. يقوم المعقد HlyAB بتحفيز HlyD الذي يبدأ بفك اللفائف ويصل إلى الغشاء الخارجي حيث يقوم TolC بتمييز الجزيئ أو الإشارة النهائية على HlyD. يقوم HlyD بتجنيد TolC إلى الغشاء الداخلي ويتم إطراح HlyA خارج الغشاء الخارجي عن طريق قناة بروتين طويلة النفق long-tunnel protein channel. إن نظام الإفراز من النمط I ينقل جزيئات متنوعة، من الشوارد، الأدوية، إلى البروتينات المتنوعة الحجم (20 -900 كيلو دالتون). تختلف الجزيئات التي تم إفرازها في الحجم من ببتيد الكوليسين الخامس colicin V الخاص بجرثومة الإيشريشيا كولي Escherichia coli والذي يبلغ وزنه 10 كيلو دالتون، إلى بروتين الالتصاق الخلوي LapِِA الخاص بجرثومة الزوائف الفلورسينية Pseudomonas fluorescens التي يصل وزنها إلى 520 كيلو دالتون. أفضل ما يميز نظام الإفراز من النمط الأول هو سموم ر.ت.إكس RTX toxins والليباز lipases. إن نظام الإفراز من النمط الأول يشارك كذلك في تصدير ركائز غير بروتينية مثل البيتا غلوكانات الحلقية cyclic β-glucans والسكريات المتعددة polysaccharides.
نظام الإفراز من النمط الخامس
كذلك، إن نظام الإفراز من النمط الخامس يسمى كذلك نظام الناقل الآلي autotransporter system، ويتضمن نظام الإفراز من النمط الخامس استخدام نظام Sec لعبور الغشاء الداخلي. تتمتع البروتينات التي تستعمل هذا الطريق بالقدرة على تكوين برميل بيتا beta-barrel مع طرفه سي C-terminus الذي يدخل في الغشاء الخارجي، مما يسمح لبقية الببتيد (القطاع المسافر the passenger domain) بالوصول إلى خارج الخلية. في كثير من الأحيان، يتم قطع الناقلات الآلية autotransporters مما يترك قطاع البرميل بيتا beta-barrel domain معلقا في الغشاء الخارجي ومحررا القطاع المسافر the passenger domain. يعتقد بعض الباحثين أن بقايا الناقلات الآلية أدت إلى ظهور البورينات porins التي تشكل هياكل بيتا برميلية مماثلة.
وفي هذا السياق، ملاحظة: إن المواد اللاصقة Adhesins هي مكونات أو زوائد من سطح الخلية الجرثومية والتي تسهل الالتصاق أو الالتحام مع الخلايا الأخرى أو الأسطح الأخرى، والتي عادة ما تكون في المضيف الذي تصيبه هذه الجراثيم بالإنتان أو تعيش ضمنه. إن المواد اللاصقة Adhesins هي أحد أنماط عامل ضراوة الجرثوم virulence factor.
ومن جهة أخرى، إن البورين porin هو أي صنف من البروتينات التي يمكن لجزيئاتها أن تشكل أقنية channels (هذه الأقنية تكون كبيرة بما يكفي لتسمح بمرور الشوارد الصغيرة والجزيئات) عبر الأغشية الخلوية. من الأمثلة الشائعة على الناقل الآلي الذي يستعمل نظام الإفراز من النمط الخامس هو الناقل الآلي الثلاثي الخاص بنقل مواد الالتصاق Trimeric Autotransporter Adhesins.
الإفراز لدى الجراثيم إيجابية الغرام
من جانب آخر، لدى بعض أنواع المكورات العنقودية Staphylococcus والمكورات العقدية Streptococcus، يتعامل النظام الإفرازي الإضافي مع تصدير البروتينات السكرية المخصصة للالتصاق المتكرر repetitive adhesion glycoproteins.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟