استماتة (علم أحياء)
المحتويات
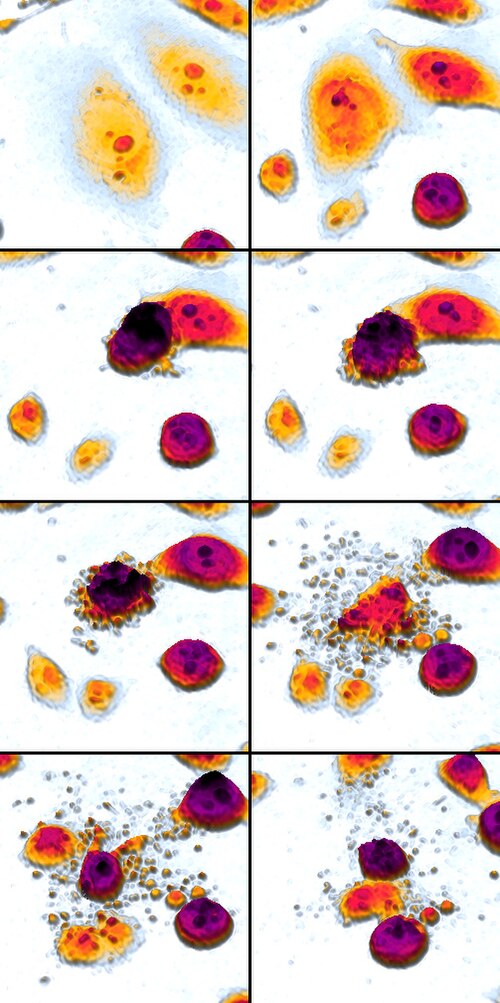
في البداية، الاستماتة أو الموت الخلوي المبرمج عملية فسيولوجية منظَّمة وراثيًا تُفكِّك فيها الخلية مكوناتها ذاتيًا وفق برنامج جزيئي دقيق، دون الإضرار بالخلايا المجاورة أو إثارة استجابة التهابية. وتُعد الاستماتة إحدى أهم آليات الاتزان الخلوي في الكائنات متعددة الخلايا، إذ تعمل بتوازن دقيق مع تكاثر الخلايا وانقسامها للمحافظة على ثبات حجم الأنسجة ووظائفها الطبيعية، كما تؤدي دورًا أساسيًا في النمو الجنيني، وتكوين الأعضاء، وتجديد الأنسجة، والمحافظة على توازن الجهاز المناعي، والتخلص من الخلايا المتضررة أو المصابة أو التي اكتسبت طفرات جينية قد تؤدي إلى نشوء الأورام. وفيما يلي تفاصيل أوسع عن ذلك.
وفي السياق ذاته، يموت في جسم الإنسان البالغ يوميًا ما يقارب 50 إلى 70 مليار خلية بوساطة الاستماتة، في مقابل إنتاج خلايا جديدة، مما يحافظ على ثبات حجم الأنسجة ووظائفها الطبيعية، بينما يكون معدل الاستماتة أعلى نسبيًا خلال مراحل النمو في الأطفال نتيجة إعادة تشكيل الأنسجة بصورة مستمرة.
في هذا الإطار، ويؤدي اختلال تنظيم الاستماتة، سواء بزيادة معدلها أو نقصانه، إلى طيف واسع من الأمراض، من أبرزها السرطان، والأمراض التنكسية العصبية، واضطرابات المناعة الذاتية، مما جعلها أحد أكثر موضوعات علم الأحياء الخلوي والطب الجزيئي دراسةً خلال العقود الأخيرة.
من جانب آخر، اشتُق مصطلح Apoptosis من الكلمة الإغريقية التي تعني «التساقط»، في تشبيه لتساقط أوراق الأشجار أو بتلات الأزهار، واعتمد بمعناه الحديث عام 1972 بعد أن استعمله جون كير وأندرو وايلي وألستير كاري لوصف هذا النمط المنظَّم من الموت الخلوي وتمييزه عن النخر.
العلاقة مع الفيروسات
وعلى صعيد آخر، تُعد الاستماتة إحدى أهم وسائل الدفاع الخلوي ضد العدوى الفيروسية، إذ تُبادر الخلايا المصابة إلى تدمير نفسها للحد من تضاعف الفيروس وانتشاره داخل الجسم. وفي المقابل، طورت فيروسات عديدة استراتيجيات للهروب من هذا الدفاع، من بينها إنتاج بروتينات فيروسية تُثبِّط الكاسبيز مباشرة أو بروتينات تحاكي عمل أفراد عائلة Bcl-2 المضادة للاستماتة، مما يطيل بقاء الخلية المصابة ويزيد إنتاج الجسيمات الفيروسية الجديدة.
كذلك، ويرتبط هذا التفاعل الوثيق بين الفيروسات والاستماتة بعدد من الأمراض؛ فمثلًا، تُسهم الزيادة غير الطبيعية في استماتة الخلايا اللمفاوية التائية المساعدة أثناء عدوى فيروس نقص المناعة البشرية في إضعاف الجهاز المناعي تدريجيًا، في حين تعتمد بعض الفيروسات الأخرى على تثبيط الاستماتة للحفاظ على الخلايا المصابة فترةً أطول وإكمال دورة تكاثرها.
المقارنة مع الأنماط الأخرى للموت الخلوي
وفي السياق ذاته، تُعد الاستماتة والنخر أكثر أنماط الموت الخلوي شيوعًا، إلا أنهما يختلفان اختلافًا جوهريًا في الآليات الجزيئية والخصائص المورفولوجية والنتائج الفسيولوجية. فالاستماتة عملية فسيولوجية منظَّمة وراثيًا تُنفَّذ عبر سلسلة من الإشارات الجزيئية التي تحافظ على سلامة غشاء الخلية وتسمح بإزالة الخلايا الميتة دون إثارة استجابة التهابية، في حين يحدث النخر غالبًا نتيجة إصابة خلوية حادة تؤدي إلى تمزق غشاء الخلية وانسكاب محتوياته، مما يسبب التهابًا وأذيةً للأنسجة المجاورة.
من جانب آخر، ولا تمثل هذه الأنماط مراحل متتابعة لعملية واحدة، وإنما مسارات جزيئية مستقلة تُفعَّل استجابةً لأنواع مختلفة من الإجهاد أو الضرر الخلوي، وقد تتقاطع فيما بينها في بعض الظروف الفسيولوجية والمرضية، مما يعكس تعقيد الشبكات المنظمة لمصير الخلية.
في هذا الإطار، ومع تطور علم الأحياء الخلوي, تبيَّن أن الاستماتة ليست النمط الوحيد للموت الخلوي المنظَّم، بل توجد مسارات أخرى تختلف في آلياتها ووظائفها البيولوجية، من أبرزها النخر المبرمج (Necroptosis)، والتقيح الخلوي (Pyroptosis)، والاستماتة الحديدية (Ferroptosis)، في حين يُعد الالتهام الذاتي (Autophagy) عمليةً خلويةً تهدف أساسًا إلى إعادة تدوير المكونات الداخلية والمحافظة على بقاء الخلية، وإن كانت قد تنتهي في ظروف معينة إلى موتها.
تنظيم الاستماتة
من جهة ثانية، التنظيم بواسطة الحمض النووي الريبي الميكروي (microRNA): تسهم جزيئات الحمض النووي الريبي الميكروي في ضبط التعبير عن عدد كبير من الجينات المنظمة للاستماتة، وذلك عبر تثبيط ترجمة الرنا المرسال أو تحفيز تحلله. ويؤدي اختلال هذا التنظيم إلى زيادة مقاومة الخلايا للموت أو إلى فرط الاستماتة بحسب نوع الجزيئات المتأثرة.
ومن ناحية أخرى، بروتين c-FLIP: يُعد المنظم الرئيس للمسار الخارجي للاستماتة، إذ يمتلك بنيةً مشابهةً لبروكاسبيز-8 وبروكاسبيز-10 لكنه يفتقر إلى النشاط البروتيني. ويرتبط تنافسيًا بمعقد الإشارة المحرِّض للموت (DISC)، فيمنع تنشيط الكاسبيزات البادئة ويثبط بدء الاستماتة عبر مستقبلات الموت.
وفي هذا السياق، لا يعتمد حدوث الاستماتة على سلامة مساراتها الجزيئية فحسب، بل يخضع كذلك لشبكة من الآليات التنظيمية التي تتحكم في توقيت تفعيلها وشدته واستمراره. وتشمل هذه الآليات منظمات بروتينية، وتنظيمًا بعد النسخ بواسطة الحمض النووي الريبي الميكروي، وآليات فوق جينية تتحكم في التعبير عن الجينات المرتبطة بالاستماتة، مما يسمح للخلايا بالاستجابة بدقة للإجهاد الخلوي والظروف الفسيولوجية والمرضية.
من جهة ثانية، التحكم الفوق جيني (Epigenetic regulation): يمكن للتعديلات الفوق جينية، مثل مثيلة الحمض النووي وتعديل الهيستونات، أن تُغيّر التعبير عن الجينات المنظمة للاستماتة دون تغيير تسلسل الحمض النووي. وقد يؤدي إسكات بعض الجينات المحفزة للاستماتة بهذه الآليات إلى تعزيز بقاء الخلايا، وهو ما يُلاحظ في عدد من الأورام الخبيثة.
النماذج البحثية في دراسة الاستماتة
ومن جهة أخرى، الفئران المعدلة وراثيًا (Knockout mice): استُخدمت لتعطيل جينات بعينها مثل Bax وBak وApaf-1 وCaspase-3، مما أسهم في تحديد وظيفة كل منها وإظهار أثر غيابها في تنظيم الاستماتة وتطور الأنسجة والأمراض البشرية.
وعلى صعيد آخر، دودة الأسطوانة الشفافة (Caenorhabditis elegans): تُعد النموذج الكلاسيكي لدراسة الأساس الجيني للاستماتة، إذ يموت أثناء نموها الطبيعي 131 خلية جسدية من أصل 1090 خلية وفق برنامج وراثي ثابت، وقد أدى اكتشاف الجينات ced-3 وced-4 وced-9 فيها إلى إرساء الأساس لفهم التنظيم الجزيئي للاستماتة في الحيوانات والإنسان.
من جانب آخر، الضفدع المخلبي الأفريقي (Xenopus laevis): يُعد نموذجًا مهمًا لدراسة الاستماتة المصاحبة للاستحالة؛ إذ يُحفِّز هرمونا الثيروكسين وثلاثي يودوثيرونين استماتة واسعة في خلايا الذيل والخياشيم والزعانف أثناء تحول الشرغوف إلى ضفدع بالغ، مما يجعله نموذجًا رئيسيًا لدراسة إعادة تشكيل الأنسجة أثناء التطور.
ومن ناحية أخرى، أسهمت عدة كائنات نموذجية في الكشف عن الآليات الجزيئية والتنظيمية للاستماتة، وكان لها دور محوري في فهم هذا النمط من الموت الخلوي المبرمج، ومن أبرزها:
الموت الخلوي المبرمج في النباتات
وفي السياق ذاته، على الرغم من أن مصطلح «الاستماتة» وُضع أساسًا لوصف الموت الخلوي في الحيوانات، فإن النباتات تمتلك كذلك صورًا متعددة من الموت الخلوي المبرمج تؤدي أدوارًا أساسية في النمو والدفاع وإعادة تشكيل الأنسجة. وتشترك هذه الأنماط مع الاستماتة الحيوانية في بعض السمات المورفولوجية، مثل تكاثف الكروماتين وتشظي الحمض النووي، لكنها تختلف اختلافًا جوهريًا في آلياتها الجزيئية؛ إذ تفتقر النباتات إلى الكاسبيز وتعتمد بدلًا من ذلك على إنزيمات مثل الميتاكاسبيز وغيرها من البروتيازات النباتية.
- انظر كذلك
- شيخوخة خلوية
- نخر
- سرطان
- تحلل ذاتي
- موت الخلية المبرمج
- بروتين موت الخلية المبرمج 1
- موت الخلايا
- قائمة الجينات البشرية
- أبيجينين
في هذا الإطار، وتؤدي هذه العملية دورًا مهمًا في تكوين الأنسجة الوعائية، وتساقط الأوراق والأزهار، والاستجابة لعدوى مسببات الأمراض من خلال «الاستجابة فائقة الحساسية»، كما تسهم في تكيف النبات مع ظروف الإجهاد البيئي المختلفة.
نقطة التقاطع بين المسارين
من جانب آخر، يرتبط المساران ارتباطًا وثيقًا؛ إذ يستطيع الكاسبيز-8 المنشَّط في المسار الخارجي شطر بروتين Bid إلى صورته الفعالة tBid، التي تنتقل إلى الميتوكوندريا لتعزز نفاذية غشائها الخارجي وتُضخِّم إشارات المسار الداخلي، مما يزيد كفاءة تنفيذ الاستماتة في عدد من أنواع الخلايا.
الأهمية الطبية والارتباط بالأمراض
إضافةً إلى ذلك، وقد أتاح هذا الفهم تطوير استراتيجيات علاجية تستهدف تنظيم الاستماتة، مثل مثبطات بروتين Bcl-2 المستعملة في علاج بعض أنواع اللوكيميا، إلى جانب الأبحاث الجارية لتفعيل مستقبلات TRAIL أو تثبيط البروتينات المضادة للاستماتة في الأورام الصلبة.
وعلى صعيد آخر، أمراض المناعة الذاتية ومتلازمات فرط التكاثر اللمفاوي: قد تنتج عن خلل في مسار مستقبل Fas يمنع التخلص الطبيعي من الخلايا المناعية ذاتية التفاعل.
من جانب آخر، الإصابات الإقفارية: مثل احتشاء عضلة القلب والسكتة الدماغية، حيث يسهم نقص التروية والإجهاد التأكسدي في تحفيز الاستماتة في الخلايا الواقعة حول منطقة الإصابة.
إضافةً إلى ذلك، أدى فهم آليات الاستماتة إلى تحول كبير في الطب الحديث، إذ تبيّن أن اختلال تنظيمها، سواء بزيادة نشاطها أو نقصانه، يسهم في نشوء طيف واسع من الأمراض، كما أصبحت مكوناتها الجزيئية أهدافًا علاجية واعدة في عدد من الأمراض البشرية.
ومن جهة أخرى، الأمراض التنكسية العصبية: مثل داء آلزهايمر وداء باركنسون وداء هنتنغتون والتصلب الجانبي الضموري، حيث يسهم فرط الاستماتة في فقدان العصبونات تدريجيًا.
ومن جهة أخرى، السرطان: يرتبط بنقص الاستماتة أو مقاومة الخلايا الورمية لها، وغالبًا ما ينجم ذلك عن طفرات في الجين الكابت للورم p53، أو فرط تعبير بروتينات عائلة Bcl-2 المضادة للاستماتة، أو زيادة مثبطات الكاسبيز مثل XIAP.
الآلية الجزيئية
ومن ناحية أخرى، يرتبط السيتوكروم-c ببروتين Apaf-1 بوجود جزيء ATP أو dATP، مُشكِّلًا معقدًا متعدد الوحدات يُعرف بـالجسيم الاستماتي (Apoptosome)، الذي يُجنِّد الكاسبيز-9 ويُنشِّطه، لتبدأ بذلك المرحلة التنفيذية للاستماتة.
ومن جهة أخرى، تُستحث الاستماتة عبر مسارين رئيسيين يلتقيان في مرحلة تنفيذية مشتركة تعتمد على تنشيط الكاسبيزات (Caspases): المسار الداخلي (الميتوكوندري)، الذي يُفعَّل استجابةً للضغوط داخل الخلية، والمسار الخارجي (مستقبلات الموت)، الذي يبدأ بإشارات صادرة من خارجها.
وفي السياق ذاته، يُستحث هذا المسار نتيجة ضغوط داخلية مثل تلف الحمض النووي، أو الإجهاد التأكسدي، أو نقص عوامل النمو والبقاء، أو اضطراب توازن الكالسيوم داخل الخلية. ويتحكم فيه التوازن بين البروتينات المحفِّزة والمثبِّطة للاستماتة من عائلة Bcl-2؛ فعندما تطغى الإشارات المحفِّزة، تُحدِث بروتينات Bax وBak زيادةً في نفاذية الغشاء الخارجي للميتوكوندريا (MOMP)، مما يؤدي إلى تحرر السيتوكروم-c، إضافةً إلى بروتينات أخرى مثل Smac/DIABLO وعامل تحريض الاستماتة AIF إلى السيتوبلازم.
المسار الخارجي (مستقبلات الموت)
وفي هذا الصدد، يبدأ هذا المسار بارتباط جزيئات إشارية خارجية مثل FasL أو TNF أو TRAIL بمستقبلات الموت الموجودة على سطح الخلية، مثل Fas/CD95 وبعض أفراد عائلة مستقبلات عامل نخر الورم (TNFR). يؤدي هذا الارتباط إلى تكوين معقد الإشارة المحرِّض للموت (DISC)، الذي يُنشِّط الكاسبيز-8، وفي بعض الحالات الكاسبيز-10، لتبدأ سلسلة تنشيط الكاسبيزات التنفيذية.
المسار الداخلي (الميتوكوندري)
تقنيات الكشف المخبري
وفي السياق ذاته، اختبار TUNEL: يكشف النهايات الحرة للحمض النووي المتشظي بواسطة وسم إنزيمي، ويُعتبر من أكثر الاختبارات استخدامًا في الدراسات النسيجية والمرضية.
وفي هذا الصدد، قياس التدفق الخلوي (Flow Cytometry): يعتمد غالبًا على ارتباط الأنيكسين-V بالفوسفاتيديل سيرين المنقلب إلى السطح الخارجي لغشاء الخلية، ويُستعمل مع يوديد البروبيديوم للتمييز بين الخلايا الحية والمستمِيتة والنخرة.
وفي السياق ذاته، المجهر الإلكتروني: يُستعمل لرصد التغيرات المورفولوجية الدقيقة، مثل تكاثف الكروماتين، والتبرعم الغشائي، وتكوّن الأجسام الاستماتية.
إضافةً إلى ذلك، طُورت عدة تقنيات مخبرية لرصد الاستماتة وتمييزها عن غيرها من أنماط الموت الخلوي، ويعتمد اختيار التقنية على المرحلة المراد دراستها ونوع العينة.
وفي هذا الصدد، الترحيل الكهربائي لهلام الحمض النووي: يكشف النمط المتدرج لتشظي الحمض النووي («سلّم الحمض النووي») الذي يُعتبر من السمات الكلاسيكية للاستماتة.
التغيرات المورفولوجية
وعلى صعيد آخر، تجزؤ النواة (Karyorrhexis): تفتت النواة إلى شظايا متعددة نتيجة تحلل اللامينات النووية وتجزؤ الحمض النووي بصورة منتظمة.
وفي هذا السياق، يمكن رصد الاستماتة تحت المجهر من خلال سلسلة متتابعة من التغيرات المورفولوجية المميزة التي تنتهي بإزالة الخلية دون إحداث استجابة التهابية، وقد وصفها لأول مرة جون كير وأندرو وايلي وألستير كاري عند تمييزهم الاستماتة عن النخر عام 1972.
وفي هذا الصدد، تكاثف الكروماتين (Pyknosis): تكدّس المادة الوراثية بمحاذاة الغشاء النووي، ويُعتبر من أقدم العلامات المجهرية المميزة للاستماتة.
ومن ناحية أخرى، انكماش الخلية: فقدان الحجم نتيجة خروج الماء والأيونات، مع ازدياد كثافة السيتوبلازم وبقاء الغشاء البلازمي سليمًا خلال أغلب مراحل العملية.
من جهة ثانية، وتشير دراسات حديثة إلى أن الأجسام الاستماتية لا تُزال فحسب، بل قد تحمل كذلك بروتينات وجزيئات RNA صغيرة غير مشفرة (microRNA) وقطعًا من الحمض النووي يمكن أن تُسهم في التواصل بين الخلايا المجاورة، كما أن تفككها إلى حويصلات أصغر قد يزيد من كفاءة تعرف الخلايا البالعة عليها وإزالتها.
علاوةً على ذلك، انقلاب الفوسفاتيديل سيرين: انتقال هذا الفوسفوليبيد من الوجه الداخلي للغشاء البلازمي إلى الوجه الخارجي، حيث يعمل بوصفه إشارة «كُلني» (Eat-me signal) تتعرف إليها الخلايا البالعة، مما يضمن إزالة الخلية المستميتة بكفاءة ودون إثارة استجابة التهابية.
ومن ناحية أخرى، التبرعم الغشائي (Blebbing): ظهور نتوءات أو فقاعات على سطح الغشاء البلازمي نتيجة إعادة تنظيم الهيكل الخلوي، مع احتفاظ الغشاء بسلامته حتى المراحل المتأخرة.
ومن جهة أخرى، تكوّن الأجسام الاستماتية: تنقسم الخلية أخيرًا إلى حويصلات صغيرة مغلَّفة بالغشاء تحتوي شظايا من السيتوبلازم والنواة والعضيات، فتُبتلع بسرعة بواسطة الخلايا البلعمية، ولا سيما البلاعم، دون أن يتسرب محتواها إلى الوسط المحيط، وهو ما يفسر غياب الاستجابة الالتهابية.
مرحلة التنفيذ
من جانب آخر، على الرغم من أن أغلب حالات الاستماتة تعتمد على تنشيط الكاسبيزات، فقد وُصفت كذلك مسارات مستقلة عنها؛ إذ يمكن لبعض البروتينات الميتوكوندرية، مثل عامل تحريض الاستماتة (AIF) والإندونوكلياز G (Endonuclease G)، أن تنتقل إلى النواة بعد تحررها من الميتوكوندريا فتُحدث تكاثف الكروماتين وتشظي الحمض النووي حتى في غياب نشاط الكاسبيز، مما يدل على وجود آليات بديلة لتنفيذ الاستماتة في بعض الظروف الفسيولوجية والمرضية.
وفي هذا السياق، يلتقي المساران في تنشيط الكاسبيزات التنفيذية، ولا سيما الكاسبيز-3 والكاسبيز-6 والكاسبيز-7، بعد تنشيطها بواسطة الكاسبيزات البادئة مثل الكاسبيز-8 والكاسبيز-9 والكاسبيز-10. وتعمل هذه الإنزيمات على شطر مئات البروتينات الخلوية، بما في ذلك مكونات الهيكل الخلوي، واللامينات النووية، وعوامل إصلاح الحمض النووي، مما يؤدي إلى إعادة تشكيل الخلية بصورة منظمة وانكماشها وتجزئها إلى أجسام استماتية قابلة للبلعمة.
وفي هذا السياق، كما تؤدي الكاسبيزات التنفيذية إلى تعطيل البروتين ICAD المثبط لإنزيم CAD، فيتحرر الأخير ليُحدِث تقطيعًا منتظمًا للحمض النووي إلى شظايا بطول يقارب مضاعفات 180 زوجًا قاعديًا، وهو النمط المعروف باسم «سلّم الحمض النووي»، ويُعتبر من السمات المميزة للاستماتة عند الفحص المخبري.
أصل الكلمة وتاريخ الاكتشاف
وعلى صعيد آخر، الكلمة مشتقة من اليونانية القديمة (ἀπόπτωσις)، وتعني حرفياً «التساقط»، في إشارة إلى تساقط أوراق الشجر أو بتلات الزهور. استُخدم المصطلح طبياً منذ عهد أبقراط للدلالة على تساقط شظايا العظام، ثم وسّع جالينوس معناه ليشمل سقوط القشور عن الجروح.
من جهة ثانية، تُوِّجت هذه الأبحاث البيولوجية الفذة بجائزة نوبل في الطب أو علم وظائف الأعضاء عام 2002، والتي مُنِحت بالتساوي لكل من سيدني برينر وروبرت هورفيتز وجون سالستون.
وفي هذا الصدد، أما استخدامه بمعناه الحديث في علم الأحياء الخلوي فيعود إلى ثلاثة علماء من جامعة أبردين وجامعة كوينزلاند، هم جون كير، وأندرو وايلي، وألستير كاري، الذين نشروا عام 1972 بحثاً محورياً في مجلة الأبحاث البريطانية للسرطان (British Journal of Cancer) ميّزوا فيه بوضوح بين هذا النمط المنظَّم من الموت الخلوي وبين النخر العرضي الناتج عن الإصابة. وقد اقترح عليهم المصطلح جيمس كورماك، أستاذ اللغة اليونانية في جامعة أبردين.
علاوةً على ذلك، بدأ فك الشفرة الجينية للعملية في ثمانينيات القرن العشرين عبر دراسات مكثفة على دودة الأسطوانة الشفافة Caenorhabditis elegans؛ حيث يتكوّن جسمها من 1090 خلية جسدية، يموت منها 131 خلية بشكل مبرمج ودقيق أثناء النمو الطبيعي، أغلبها في الجهاز العصبي. وقد حدّد الباحثون ثلاثة جينات رئيسية متحكمة في هذا المصير: ced-3 وced-4 المسؤولان عن تنفيذ الموت، وced-9 الذي يثبّطه ويحمي الخلايا السليمة. وشهدت فترة التسعينيات نقلة نوعية بعدما تبيّن أن لهذه الجينات نظائر بشرية وظيفية مباشرة داخل خلايا الإنسان: الكاسبيز يقابل ced-3، وبروتين Apaf-1 يقابل ced-4، وعائلة Bcl-2 تقابل جين الحماية ced-9.
وفي هذا السياق، سبقت هذه الدراسة ملاحظات أقدم بكثير؛ إذ وصف العالم الألماني كارل فوغت مبدأ هذا النوع من الموت الخلوي عام 1842. وقدّم عالم التشريح فالتر فليمنغ عام 1885 وصفاً أدق لمراحل العملية دون أن يُطلق عليها اسماً محدداً، وقد سُمّي هذا النمط أحياناً قبل عام 1972 بـ«النخر الانكماشي» لدقة وصفه لفقدان الخلية للماء وتقلّص حجمها.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟