الأنواع الفرعية لفيروس العوز المناعي البشري
المحتويات
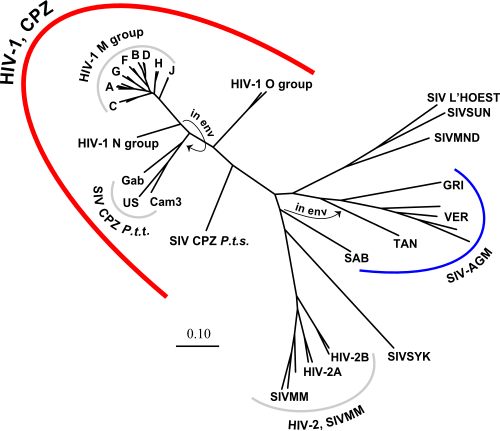
على سبيل التعريف، يشكّل التنوع الجيني الكبير لفيروس العوز المناعي البشري عقبة في علاجه. يمكن تقسيم الفيروس إلى نوعين رئيسيّين، إتش آي في النوع الأوّل (إتش آي في 1) وإتش آي في النوع الثاني (إتش آي في 2). يرتبط إتش آي في 1 بالفيروسات الموجودة عند الشيمبانزي والغوريلا القاطنة في أفريقيا الغربيّة، بينما يرتبط إتش أي في 2 بالفيروسات الموجودة بشكل رئيسيّ عند منجبي أسخم المهددة للانقراض في جنوب أفريقيا. يمكن تقسيم إتش آي في 1 إلى مجموعات أكثر. تكوّن المجموعة إم من إتش آي في 1 المسيطرة والمسؤولة عن جائحة الإيدز. يمكن تجزيء المجموعة إم إلى أنواع فرعيّة أكثر حسب بيانات التسلسل الجينيّ. تُعرف بعض الأنواع الفرعيّة بفوعتها العالية (الحدّة الجرثوميّة) أو بمقاومتها لمعالجاتٍ مختلفة. وكذلك، يُعتقد أن فيروسات إتش آي في 2 أقل خبثًا وقدرة على الانتقال من المجموعة إم لإتش آي في 1، على الرغم من معرفة أن الإتش آي في 2 هو المسبّب للإيدز. ونتناول فيما يلي مزيدًا من التفاصيل.
الأنواع الرئيسيّة
إتش أي في 2
من جهة ثانية، وحسب عام 2010، يوجد ثمانية مجموعات معروفة للإتش آي في 2 (من إيه إلى إتش). تشكل فقط إيه وبي من هذه المجموعات جائحة. وُجدت المجموعة إيه بشكل رئيسي في غرب أفريقيا، ولكنّها انتشرت عالميًا إلى أنغولا، وموزمبيق، والبرازيل، والهند، وأوروبا، والولايات المتّحدة الأميركيّة. وعلى الرغم من الوجود العالمي للإتش آي في 2، تقتصر المجموعة بي بشكل رئيسيّ على غرب أفريقيا. ورغم انحصاره النسبيّ، يجب ان يُؤخذ الإتش آي في 2 بعين الاعتبار عند كل المرضى المطوّرين أعراضًا للإتش آي في وليس فقط القادمين من غرب أفريقيا، بل أيّ شخص تعرض لتماسٍّ مع سوائل جسم عند شخص من غرب أفريقيا (أي مشاركة إبرة، أو اتصال جنسي، الخ..).
علاوةً على ذلك، يرتبط إتش آي في 2 بشكل وثيق بفيروس العَوَز المناعيّ القرديّ المستوطن عند منجبي أسخم، وهم من أنواع القرود القاطنين في غابات ايتورال غرب أفريقيا. تظهر تحاليل التطوّر السلالي أنّ الفيروس الأكثر ارتباطًا بسلالتين من الإتش آي في 2 المنتشرة كثيرًا عند البشر (مجموعات الإتش آي في 2 إيه وبي) هو فيروس عَوَز المناعة القرديّ الموجود عند منجبي أسخم غابات تاي، في ساحل العاج الغربيّ.
وفي هذا الصدد، توجد ست مجموعات إضافية معروفة من HIV-2، كل منها عُثِر عليه في شخص واحد. يبدو أنها انتقلت جميعا بشكل مستقل من سوتي مانجابي إلى البشر. عُثِر على المجموعتين C و D عند شخصين من ليبيريا، بينما وجدت المجموعتان E و F عند شخصين من سيرا ليون، وأخيرا اكتُشِفت المجموعتان G و H عند شخصين من ساحل العاج. كل واحدة من هذه السلالات، والتي يعد الإنسان غالبًا نهاية مسدودة في حلقة المضيفين بالنسبة لها، ترتبط بدرجة كبيرة بسلاسلات SIVsmm المنتشرة عند سوتي مانجابي الذي يعيش في نفس الدولة التي وجدت فيها حالات العدوى عند البشر.
علاوةً على ذلك، لم يُعرف انتشار لإتش آي في 2 خارج أفريقيا. ظهرت أول حالة في الولايات المتّحدة في سنة 1987. يمكن للعديد من مجموعات اختبار الإتش آي في 1 الكشف عن الإتش آي في 2.
المجموعة إم
- يوجد النوع الفرعيّ جاي بشكل رئيسي في شمال ووسط وغرب أفريقيا، والكاريبي.
- يكون النوع الفرعيّ كي محدودًا في جمهوريّة كونغو الديمقراطيّة والكاميرون.
- يكون النوع الفرعيّ إل محدودًا في جمهوريّة كونغو الديمقراطيّة.
من جانب آخر، استُخدم النوع الفرعيّ آي لوصف سلالة تُمثّل بسي أر إف 0 4 _ سي بي إكس (CRF04_cpx)، مع cpx لتأشب «معقد» لأنواع فرعيّة متعدّدة.
وعلى صعيد آخر، يوجد النوع الفرعيّ إي في جنوب شرق آسيا وهو الشكل المسيطر عند متغايري الجنس ومن حيث معدّل الانتقال هو أعلى بكثير من الأنماط الفرعيّة الأخرى.
وفي هذا الصدد، «إم» من «major الرئيسي»، هي المجموعة الأكثر شيوعًا من أنماط الإتش آي في على الإطلاق، فأكثر من 90% من حالات الإيدز/إتش آي في تعود إلى الإنتان بالمجموعة إم لإتش آي في 1. بدأ فيروس الإتش آي في الرئيسي هذا والذي هو مصدر الجائحات الفيروسيّة لما قبل 1960 في عشرينيّات القرن العشرين في ليوبولدفيل في كونغو البلجيكية، والمعروفة في الوقت الحالي بكينشاسا، عاصمة جمهوريّة كونغو الديمقراطية (دي أر سي) في الوقت الحالي. تُجزئ المجموعة إم إلى فروعٍ حيويّةٍ أكثر، تُدعى الأنواع الفرعيّة، والتي تُعطى كذلك حرفًا. يوجد كذلك «أشكالًا مأشوبة جائلة» أو «سي أر إفز» مشتقّةً من تأشّب أنواعٍ فرعية مختلفة من الفيروسات تُعطى كلّ واحدة منها رقمًا. فمثلًا، سي أر إف 12_بي إف (CRF12_BF) هو التأشّب بين الأنواع الفرعيّة لإف وبي.
يكون النوع الفرعيّ إتش محدودًا في أفريقيا الوسطى.
علاوةً على ذلك، يكون النوع الفرعيّ بي الشكل المسيطر في أوروبا، والأميركيّتين، واليابان، وأستراليا. بالإضافة لذلك، يكون النوع الفرعيّ بي الشكل الأكثر شيوعًا في الشرق الأوسط وشمال أفريقيا. انتقل من أفريقيا عندما زار المهنيون الهاييتيّون كينشاسا في ستينيّات القرن العشرين وجلبوه إلى هاييتي في سنة 1964.
وفي هذا السياق، يكون النوع الفرعيّ سي الشكل المسيطر في أفريقيا الجنوبيّة، وأفريقيا الشرقيّة، والهند، ونيبال، وأجزاء من الصين.
في هذا الإطار، يوجد النوع الفرعيّ إف في أفريقيا الوسطى، وجنوب أميركا، وأوروبا الغربية.
يكون النوع الفرعيّ إيه شائعًا في أفريقيا الشرقيّة.
من جهة ثانية، انتقلت هذه الأنواع الفرعيّة بفضل حركتها الفراغيّة على طول السكك الحديديّة والممرات المائيّة لجمهوريّة كونغو الديمقراطيّة قادمة من كينشاسا نحو هذه المناطق الأخرى. تنقسم هذه الأنواع الفرعيّة في بعض الأوقات إلى المزيد من الأنواع تحت الفرعيّة مثل إيه 1 وإيه 2 أو إف 1 وإف 2. في عام 2015، وُجد ارتباطٌ قويّ للسلالة سي أر إف 19، وهي النوع الفرعيّ إيه والنوع الفرعيّ دي والنوع الفرعي جي المؤشبة مع ببتيداز النوع الفرعيّ دي، مع تقدم الإيدز السريع في كوبا. يُعتقد أن هذه القائمة ليست كاملة أو نهائية، ومن المتوقع إيجاد أنواع أكثر.
في هذا الإطار، يوجد النوع الفرعيّ جي (وسي أر إف 2 0_أيه جي CRF02_AG) في أفريقيا وأوروبا الوسطى.
وفي السياق ذاته، يُرى النوع الفرعيّ دي بشكلٍ عام فقط في أفريقيا الوسطى والشرقيّة.
إتش آي في 1
من جهة ثانية، هو السلالة الأكثر شيوعًا وإمراضًا من الفيروس. يقسّم العلماء إتش أي في 1 إلى مجموعة رئيسيّة (المجموعة إم) ومجموعتين فرعيّتين أو أكثر، هما المجموعة إن وأو وربّما المجموعة بّي. يُعتقد أن كل مجموعة تمثل ناقل مستقل لفيروس العَوَز المناعيّ القرديّ (إس أي في) إلى البشر (ولكنّ الأنواع الفرعيّة ضمن المجموعة ليست كذلك). بلغ مجموع قوالب القراءة المفتوحة 39 في أُطر القراءة الستّة جميعها لمتوالية الجينوم الكاملة للإتش آي في 1، ولكنّ عددًا قليلًا منها فقط وظيفي.
المجموعة بّي
ومن جهة أخرى، في عام 2009، أبلغ استقصاء جديد عن متتالية لإتش آي في تملك تشابهًا كبيرًا مع فيروس العوز المناعي القردي المكتشف مؤخرًا عند الغوريلا أكثر من فيروس العوز المناعي القردي عند الشيمبانزي. عُزل الفيروس من امرأة كاميرونية مقيمة في فرنسا مشخصة بإنتان بالإتش آي في 1 في عام 2004. وضعها العلماء المبلغين عن هذه المتتالية في مجموعة بّي المقترحة «بانتظار تحديد حالات أكثر عند البشر».
المجموعة أو
وفي هذا الصدد، أصابت المجموعة أو («الشاذّة» نحو 100.000 شخص بالعدوى من القاطنين في غرب وسط أفريقيا ولا تُشاهد عادةً خارج هذه المنطقة. وهي أكثر شيوعًا في الكاميرون حسب المعلومات، حيث وجد مسحٌ في عام 1997 أن 2% من العينات إيجابيّة الإتش آي في تعود للمجموعة أو. سبّب هذا الفيروس بعض القلق لأنّه لم يكن من الممكن كشفه من خلال الإصدارات الباكرة لمجموعة اختبارات إتش آي في 1. طُوّرت الآن اختبارات إتش آي في متقدّمة لكشف المجموعتين أو وإن.
الطفرات المقاومة للأدوية
في هذا الإطار، طورت عدة سلالات معزولة من HIV-1 و HIV-2 مقاومة لكابحات الفيروسات نتيجة الانتخاب الطبيعي والطفرات الجينية، والتي خضعت للمتابعة والتحليل. تنشر كل من قاعدة بيانات ستانفورد لفيروس عوز المناعة المقاوم للأدوية والجمعية العالمية للإيدز لائحة لأهم هذه الطفرات. نُشِر في السنة الأولى لائحة من 80 طفرة شائعة، بينما احتوت لائحة السنة الماضية 93 طفرة، يمكن الوصول إلى هذه اللوائح عبر قاعدة بيانات ستانفورد لفيروس HIV وتسلسل البروتييز.
الحمل
من جانب آخر، عند تعرض امرأة حامل للفيروس، تخضع للتصوير بشكل طبيعي. إذا كان فحص فيروس HIV-2 إيجابيًّا، قد تخضع الأم لعلاج بمضادات الفيروسات (ART) كإجراء وقائي لتقليل خطر الانتقال من الأم للجنين. بعد الولادة، يتبع الطفل نظاما من الأدوية الوقائية. قد يحتوي حليب الثدي على الفيروس كذلك، وعليه فإنه ينصح باجتناب الرضاعة الطبيعية بشكل كامل.
التطور
وعلى صعيد آخر، تطور الفيروس كذلك ليصبح معديا بشكل أكبر بين المضيفين. يتوفر الفيروس على ثلاثة ميكانيزمات تسمح له بالتطور عند أعداد بمستوى ساكنة. يتضمن الأول معركة مستمرة للتطور والتفوق على نظام المناعة ما يبطئ عملية التطور ويجُرُّ تركيز الفيروس نحو أعداد بمستوى الساكنة. يتضمن الثاني التطور البطيء للحمولة الفيروسية نظرًا لكون طفرات الحمولة محايدة داخل المضيف. بينما يركز الأخير على تفضيل الفيروس نَقْلَ سلالة الفيروس الأم (المُؤَسِّس) المُخَزَّنة عند المراحل الأولى من العدوى. يشرح هذا التفضيل سبب تطور فيروس HIV بشكل أسرع داخل المضيف نفسه من تطوره بين عدة مضيفين.
من جانب آخر، يؤثر تطور HIV عند المضيف على عدة عوامل منها نقطة ضبط الحمولة الفيروسية. إذا كان للفيروس نقطة ضبط منخفضة، يعيش المضيف لفترة أطول، وعندها يكون يزداد احتمال نقله لشخص آخر. إذا امتلك الفيروس نقطة ضبط مرتفعة، يعيش المضيف فترة قصيرة ويكون احتمال انتقاله لشخص آخر ضئيلا. تطور فيروس HIV لرفع معدل انتقاله لمضيفين آخرين، وقد أظهر تفضيله في اختيار سلالات متوسطة أن الفيروس يخضع لانتخاب مستقر.
كذلك، يعود التطور السريع لفيروس نقص المناعة إلى معدل الطفرات العالي لديه. في المراحل الأولى من التحول، يبدو هذا محايدا نظرا لعدم تواجد أي إجابة تطورية. ومع ذلك، عند فحص الفيروس عند عدد من الأفراد، يمكن العثور على طفرات متقاربة بشكل مستقل في هذه البيئات الفيروسية.
وعلى صعيد آخر، يتطور الفيروس حاليًّا إلى شكل أقل عدوانية لكن فرصة تحوله إلى فيروس غير مميت ما زالت بعيدة المنال.
العلاج
في هذا الإطار، يعتبر النوع الثاني مُمْرِضا بشكل أقل حدة من النوع الأول. لم يُعرف ميكانيزمه بوضوح، ولا الفرق بينه وبين النوع الأول، غير أن معدل انتقاله منخفض بدرجة كبيرة مقارنة بفيروس HIV-1. يمكن أن يقود كلاهما إلى الإصابة بالإيدز وحتى تطوير مقاومة للأدوية. يتضمن رصد المرض عند المرضى المصابين بالنوع الثاني تقييما سريريًّا وتعداد خلايا CD4، بينما يتضمن العلاج استعمال مكافحات الفيروسات، مثبط البروتياز-Protease inhibitor، مثبطات النسخ العكسي النيكليوسيدية-Nucleoside Reverse Transcriptase Inhibitors (NRTIs)، مثبطات النسخ العكسي اللانيكليوزيدية-Non-Nucleoside Reverse Transcriptase (NNRTIs) بإضافة مضادات المستقبلات المشتركة لخلايا CCR5 وخلط المثبطات.
ومن ناحية أخرى، يمكن أن ينتقل كل فيروس بشكل فردي أو بشكل جماعي (co-infection). يسبب فيروس HIV-2 معدل أقل من الوفيات، أعراض أقل حدة وفرضة أقل للإصابة بالإيدز من النوع الأول وحده أو الإصابة الجماعية. غير أنه على إثر هذه الأخيرة، يعتمد الأمر على نوع الفيروس الذي أصاب الشخص أولا. يميل الصنف الأول من HIV إلى التحكم بتقدم المرض أكثر من الصنف الثاني. أصبحت الإصابة الجماعية تبدو مشكلة متنامية مع مرور الوقت، باعتبار أغلب حالات العدوى متواجدة بدول غرب أفريقيا، إضافة لبعض الحالات بالولايات المتحدة.
من جهة ثانية، لم يُحدد بعد اختيار العلاج الأولي أو/و علاج الخط الثاني لفيروس HIV-2. أبدى هذا الأخير مقاومة لجوهر العلاج بتقنية NNRTIs، لكنه بالمقابل قد يكون حساسًا للعلاج باستخدام NRTIs، رغم أن فهمنا للميكانيزم ما زال ضعيفًا. أظهرت مثبطات البروتياز تأثيرات مختلفة، بينما ما زالت مثبطات الأنزيم المدمج قيد الاختبار. لم يتجاوز خلط التقنيات أعلاه مرحلة التجربة كذلك، بإظهاره تأثيرات مختلفة باختلاف العلاجات التي جرى دمجها. بينما ما تزال الميكانيزمات غير مفهومة للنوعين، فإنه من المعروف أنهما يستعملان أنماط مختلفة، ما يجعل الخوارزميات المستعملة لتقييم مقاومة النوع الأول دون فائدة لتقييم النوع الثاني.
التشخيص
في هذا الإطار، يمكن تشخيص النوع الثاني من فيروس HIV عندما لا تظهر عند المريض أي أعراض باستثناء فحص دم إيجابي يشير إلى أن الشخص مصاب بفيروس HIV. الفحص السريع متعدد النقط لفيروس HIV-1/HIV-2 هو الاختبار الوحيد المصادق عليه من إدارة الغذاء والدواء للتفريق بين النوعين. يوصى دائمًا باستعمال الفحص المناعي للأنزيم، والذي يكشف عن النوع الأول، المجموعة O من النوع الأول والنوع الثاني. عند تصوير المزيج، إذا أظهر الفحص نتيجة إيجابية مصحوبة باللطخة المناعية-Immunoblot (لطخة ويسترن-Westen Blot)، يتوجب القيام بفحص إضافي للمتابعة، كتحليل الأحماض الآمينية لتحديد نوع العدوى المسؤول عن المرض. بحسب المؤسسة الوطنية للصحة-NIH، يجب أخذ التشخيص التفريقي لفيروس HIV-2 بعين الاعتبار عندما يكون الشخص منحدرا من غرب أفريقيا أو أقام اتصالا جنسيا أو شارك الإبر مع شخص من هذه المنطقة. يواجه غرب أفريقيا الخطر الأكبر باعتباره مصدر الفيروس.
المجموعة إن
من جهة ثانية، ترمز إن إلى «بلا إم وبلا أو». اكتشف هذه المجموعة فريق فرانكو كاميرونيّ في سنة 1998، عندما حدّدوا وعزلوا السلالة المتغايرة لإتش آي في 1، والتي هي واي بي إف 380 (YBF380)، من امرأة كاميرونيّة ماتت بالإيدز في عام 1995. عندما أجروا الاختبارات، تفاعل واي بي إف 380 المتغاير مع مستضدّ غلافي من إس آي في سي بّي زيد (SIVcpz) بدلًا من تلك المجموعات إم وأو، ما يشير إلى أنّها بالفعل سلالة جديدة للإتش آي في 1. وحسب 2015، سُجّل أقل من 20 إنتان للمجموعة إن.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟