الحجب الجيني (التفاعل الجيني)
المحتويات
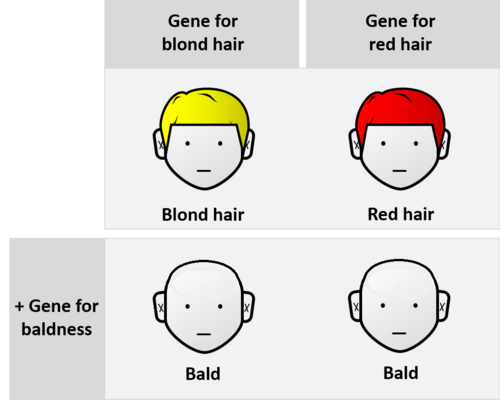
في البداية، الحجب الجيني او تفوق او رَوكَبة او مَحو هو ظاهرة في علم الوراثة حيث يعتمد تأثير طفرة جينية على وجود أو عدم وجود طفرات في واحد أو أكثر من الجينات الأخرى، على التوالي تسمى الجينات المعدلة. بمعنى آخر، يعتمد تأثير الطفرة على الخلفية الجينية التي تظهر فيها هذه الطفرة.وبالتالي فإن الطفرات المتفاعلة جينيا لها تأثيرات مختلفة حين تحدث لوحدها وحين تحدث مع طفرات أخرى. في الأصل، كان مصطلح الحجب الجيني يعني على وجه التحديد أن تأثير متغير الجين يكون مغطيا لتأثير جين آخر. ونتناول فيما يلي مزيدًا من التفاصيل.
إضافةً إلى ذلك، فهم الحجب الجيني تغير إلى حدّ كبير خلال تاريخ علم الوراثة وفهم المصطلح كذلك. استعمل هذا المصطلح لأول مرة من قبل ويليام باتسون وزميليه فلورنس دورهام وموريل ويلديل أونسلو. في النماذج الأولية للانتقاء الطبيعي التي وضعت في أوائل القرن العشرين، اعتبر كل جين بأنه يساهم بطريقته الفريدة في اللياقة، مقابل خلفية متوسطة من الجينات الأخرى. بعض المحاضرات الالتدائية اليوم لا زالت تدرس علم الوراثة السكانية بهذه الطريقة. بسبب الطريقة التي نضج بها علم الوراثة السكانية، علماء الوراثة التطورية عادة ما يعتبرون الحجب الجيني استثناء. وبالرغم من ذلك، فإن التعبير الظاهري لأي أليل يعتمد بطريقة معقدة على الكثير من الأليلات الأخرى في جينات أخرى أو في نفس الجين.
في هذا الإطار، في علم الوراثة الكلاسيكي، إذا تحور جينا؛ مثلا جين A وجين B، وكل طفرة تنتج نمطًا ظاهريًا فريدًا لوحدها ولكن الطفرتين معًا تظهران نفس نمطا ظاهريا مماثلا لطفرة الجين A لوحدها، فإن الجين A يكون حاجبا جينيا على الجين B والجين B يكون خاضعا جينيا للجين A. مثلا، جين الصلع الكامل حاجب جينيا على جين الشعر البني. بهذا المثال، يمكن التفريق بين الحجب الجيني والهيمنة الجينية، التي هي تفاعل بين الأليلات في نفس موضع الجين. مع تطور علم الوراثة، ومع ظهور البيولوجيا الجزيئية، بدأت دراسة الحجب الجيني على مستوى بمواقع السمات الكمية (QTL) والوراثة متعددة الجينات.
وفي هذا الصدد، أصبحت تأثيرات الجينات الآن قابلة للقياس الكمي بشكل يسير عن طريق قياس النمط الظاهري (مثل الطول أو التصبغ أو معدل النمو ) أو عن طريق قياس نشاط البروتين على مستوى كيميائي حيوي (مثل الارتباط أو الحفز). تهدف نماذج الأحياء الحسابية والتطورية المتطورة بشكل متزايد إلى وصف تأثيرات الحجب الجيني على نطاق الجينوم وآثار ذلك على التطور. نظرًا لأن تحديد أزواج الحجب الجيني يحتوي على صعوبات حسابية وإحصائية، تقوم بعض الدراسات لإعطاء الأولوية للأزواج المعروفة مسبقا.
كذلك، مفهوم الحجب الجيني نشأ في علم الوراثة في سنة 1907 ولكنه الآن يستعمل في الكيمياء الحيوية، وعلم الأحياء الحاسوبي، وعلم التطور البيولوجي. تنشأ هذه الظاهرة بسبب التفاعلات، سواءً بين الجينات (مثل الطفرات التي تحتاج كذلك إلى مثبطات لتعبير الجين) أو داخلها (تحتاج إلى طفرات متعددة قبل أن يفقد الجين وظيفته)، مما يؤدي إلى تأثيرات غير خطية. يمتلك التفاعل الجيني تأثيرًا كبيرًا على شكل المناظر الأكلوبية التطورية، مما يؤدي إلى نتائج عميقة على التطور وعلى قابلية تطور الصفات الظاهرية.
دورات الطفرات المزدوجة
وعلى صعيد آخر، عند قياس التفاعل الجيني داخل الجين، يمكن استخدام الطفرات الموجهة للموقع لإيجاد الجينات المختلفة، ويمكن معايرة منتجاتها البروتينية. يُطلق على هذا النوع من الدراسات أحيانًا اسم دورة الطفرات المزدوجة وتتضمن إنتاج ودراسة البروتينات من النوع الخالي من الطفرات ومقارنتها بالنوع ذو الطفرة الواحدة، والنوع ذو الطفرتين معا (الطفرة المزدوجة). يُقاس التفاعل الجيني على أنه الفرق بين تأثيرات الطفرات معًا مقابل مجموع تأثيراتها الفردية. يمكن استخدام نفس المنهجية لدراسة التفاعلات بين مجموعات أكبر من الطفرات ولكن يجب إنتاج جميع المجموعات وفحصها.
- طالع كذلك
- طفره
- التباين الوراثي
- قابلية التطور
- تعدد الأشكال
- تطور التكاثر الجنسي
حجم تأثير التفاعل الجيني
من جهة ثانية، بشكل مستقل، عندما يكون التأثير على اللياقة لطفرتين أكثر جذرية مما هو متوقع من آثارهما عندما يكونان بمفردهما، يشار إلى ذلك باسم التفاعل الجيني التآزري. على العكس، عندما يكون اختلاف اللياقة للطفرتين معا مقارنة بغياب الطفرتين أقل مما هو متوقع من تأثيرات الطفرتين المنفردتين، يسمى ذلك بالتفاعل الجيني العدائي. لهذا فإن الطفرات الخاضعة للتفاعل الجيني السلبي هي كذلك خاضعة للتفاعل الجيني التآزري. وعكسا من ذلك، فإن الطفرات الخاضعة للتفاعل الجيني الإيجابي هي كذلك خاضعة للتفاعل الجيني العدائي.
كذلك، على النقيض من ذلك، عندما تؤدي طفرتان معًا إلى نمط ظاهري أقل لياقة مما هو متوقع من آثارهما عندما يكونان بمفردهما، يُطلق على ذلك اسم التفاعل الجيني السلبي. يؤدي التفاعل الجيني السلبي بين الطفرات المفيدة إلى تحسينات في اللياقة أقل من المتوقع فيما لو كانت الطفرات تراكمية بشكل تام، في حين يتسبب التفاعل الجيني السلبي بين الطفرات الضارة انخفاضًا أكبر في اللياقة.
كذلك، عندما يكون للطفرتين معا أثرا إيجابيا على النمط الظاهري أكثر مما هو متوقع من تأثيرات الطفرتين المنفردتين، يشار إلى هذا التفاعل بين الطفرتين بالتفاعل الجيني الإيجابي . يؤدي التفاعل الجيني الإيجابي بين الطفرات المفيدة يؤدي إلى تحسنات في اللياقة تفوق المتوقع فيما لو كانت الطفرات تراكمية بشكل تام. التفاعل الجيني الإيجابي بين الطفرات الضارة يحمي من الأثر السلبي ويؤدي إلى هبوط أخف في مستوى اللياقة.
علاوةً على ذلك، التعزيز الوراثي هو مصطلج يستعمل أحيانًا عندما يكون للطفرته المزدوجة الضارة نمط ظاهري أكثر خطورة من التأثيرات التراكمية للطفرات منفردة.
التراكمية
وفي هذا الصدد، تعتبر طفرتان تراكميتان بشكل تام إذا كان تأثير الطفرتين معا مساو لجموع أثر الطفرتين منفردتين. كون طفرتين متراكمتين بشكل كامل هو نتيجة استقلال الطفرتين عن بعضهما البعض وعدم وجود أي تفاعل جيني بينهما. مثلًا، لأن الطفرتين تعملان عبر مسارات استقلابية مختلفة. دُرست الصفات التراكمية منذ وقت مبكر في تاريخ علم الوراثة، إلا أن الصفات التراكمية بشكل كامل نادرة نسبيًا، حيث تُظهر أغلب الجينات مستوى معينًا على الأقل من التفاعل الجيني.
تطور الجنس
وفي السياق ذاته، بالرغم من ذلك، فإن الأدلة على فرضية الطفرة الحتمية ليست واضحة بشكل تام وقد اُنتقد النموذج الذي اقترحه كوندراشوف حيث إنه افترض معلمات طفرة مخالفة للمعلمات المرصودة تجريبيا في العالم الحقيقي. علاوةً على ذلك، فإن الاختبارات التي استعملت شبكات الجينات الاصطناعية عثرت على التفاعل الجيني السلبي فقط في الشبكات الجينية الأكثر كثافة، في حين تشير الأدلة التجريبية إلى أن شبكات الجينات الطبيعية مترابطة بشكل متقطع، وتظهر النظرية أن الانتقاء من أجل المتانة سيفضل شبكات أكثر مترابطة وأقل تعقيدًا.
إضافةً إلى ذلك، يُعتقد بأن التفاعل الجيني السلبي والجنس مرتبطان ارتباطا وثيقا. تُختبر هذه الفكرة عن طريق استخدام محاكاة رقمية للمجموعات السكانية اللاجنسية والجنسية. الماحاكاة بينت أنه مع مرور الوقت، تتحرك المجموعات الجنسية نحو المزيد من التفاعل الجيني السلبي، أو انخفاض اللياقة من خلال أليلين متفاعلين. هذا النمط، الذي هو زيادة التفاعل الجيني السلبي، يسمح بإزالة الأفراد الذين يحملون الطفرات الضارة المتفاعلة من التعداد بكفاءة. يؤدي هذا إلى إزالة تلك الأليلات من التعداد، مما يؤدي إلى مجتمع أكثر لياقة بشكل عام. اُقترحت هذه الفرضية من قبل أليكسي كوندراشوف، وتُعرف أحيانًا باسم فرضية الطفرة الحتمية واُختبرت كذلك باستخدام شبكات الجينات الاصطناعية.
التصنيف
ومن جهة أخرى، المصطلحات حول الحجب الجيني تختلف في الحقول العلمية المختلفة. غالبًا ما يشير علماء الوراثة إلى النوع المنتشر والأليلات المتحورة، ويفترض أن الطفرات ضارة ويذكر علماء الوراثة مصطلحات مثل: التعزيز الجيني، القتل الصناعي (حيث يؤدي تفاعل أكثر من طفرة إلى موت الكائن أو الخلية)، والمثبطات الجينية .على النقيض، عالم الكيمياء الحيوية يركز غالبا على الطفرات المفيدة ويذكر بوضوح تأثير الطفرة ويستعمل مصطلحات مثل التفاعل الجيني الإشاري المتبادل والطفرة التعويضية (أي الطفرة التي تزيد كفاءة الخلية أو الكائن). علاوةً على ذلك، هناك اختلافات عند النظر إلى التفاعل الجيني داخل جين واحد (الكيمياء الحيوية) والتفاعل الجيني داخل الجينوم أحادي الصيغة الصبغية أو ثنائي الصيغة الصبغية (علم الوراثة). بشكل عام، يُستعمل التفاعل الجيني للإشارة إلى الانحراف عن "الاستقلالية" لتأثيرات مواقع الجينات المختلفة. غالبًا ما ينشأ الارتباك بسبب التفسير المتنوع لـ "الاستقلالية" بين فروع البيولوجيا المختلفة. تحاول التصنيفات أدناه تغطية المصطلحات المختلفة وكيفية ارتباطها ببعضها البعض.
الأساليب والأنظمة النموذجية
علاوةً على ذلك، علم الوراثة الكمي يركز على التباين الوراثي الناتج عن التفاعلات الجينية. يمكن تقسيم أي تفاعل بين جينين إلى ثمانية مؤثرات جينية مستقلة باستخدام الانحدار الموزون. في هذا الانحدار، تُعامل المؤثرات الجينية للموضعين المرصودين كمتغيرات تابعة وتُستعمل مؤثرات الجينية "النقية" كمتغيرات مستقلة. نظرًا لأن الانحدار موزون، فإن التقسيم بين مكونات التباين سوف يتغير كدالة لنسبة الجينات في التعداد. من الممكن توسيع هذا النظام إلى ثلاثة مواقع في الجينوم أو أكثر، أو إلى التفاعلات داخل نواة الخلية.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟