الصدفة الرخوية
المحتويات
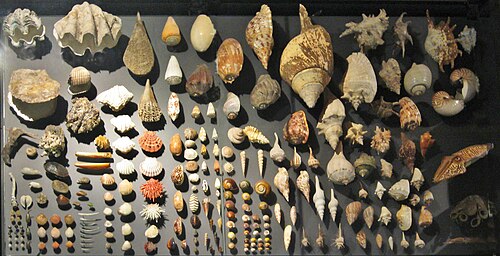
قبل الخوض في التفاصيل، الصدفة الرخوية (أو أصداف الرخويات) هي عبارة عن هيكل خارجي كلسي يدعم ويحمي ويحيط بالأجزاء الرخوية للحيوان في شعبة الرخويات، والتي تشمل القواقع والمحار والقواقع النابية وغيرها من الأصناف الأخرى. لا تعيش جميع الرخويات ذات القواقع في البحر؛ حيث تعيش أغلبها على الأرض وفي المياه العذبة. وفيما يلي تفاصيل أوسع عن ذلك.
في هذا الإطار، علم المالاكولوجيا، هو الدراسة العلمية للرخويات ككائنات حية. لدى هذا العلم فرع مخصص لدراسة الأصداف، وهذا ما يسمى بعلم المحار - على الرغم من أن هذه المصطلحات كانت تستعمل إلى حد طفيف بالتبادل حتى من قبل العلماء (وهو الأمر الأكثر شيوعًا في أوروبا).
في هذا الإطار، في العادة، توجد هنالك بعض الاختلافات في بعض أنواع الرخويات، من حيث الشكل والنمط والزخرفة ولون القوقعة.
رأسيات الأرجل
علاوةً على ذلك، Nautiluses هي رأسيات الأرجل الوحيدة التي لها غلاف خارجي. (للحصول على معلومات حول فئة فرعية منقرضة كبيرة جدًا من رأسيات الأرجل المقشرة ، يرجى الاطلاع على Ammonites .) الحبار والحبار والسبيرولا والحبار مصاص الدماء والأخطبوط السيريت لها أصداف داخلية صغيرة. تفرز إناث الأخطبوط Argonauta كيس بيض رقيق ورقي متخصص يقيمون فيه جزئيًا ، ويُنظر إلى هذا بشكل عام على أنه «قشرة»، على الرغم من أنها غير مرتبطة بجسم الحيوان.
في هذا الإطار، يتكون غلاف ذوات الصدفتين من جزأين وهما صمامان مفصليان ومربوطان برباط.
الحجم
وعلى صعيد آخر، في أغلب الرخويات التي تحتوي على أصداف، تكون الصدفة كبيرة بما يكفي لسحب جميع الأجزاء الرخوة إلى الداخل عند الضرورة، للحماية من الافتراس أو من الجفاف. ومع ذلك، فهناك الكثير من أنواع رخويات بطنيات الأرجل التي يتم فيها تقليل الصدفة إلى حد ما أو تقليلها إلى حد كبير، بحيث توفر درجة معينة من الحماية للكتلة الحشوية فقط، ولكنها ليست كبيرة بما يكفي للسماح بتراجع الأجزاء اللينة الأخرى. هذا شائع بشكل خاص في الفروع الخيشومية وفي بعض الأنواع الرئوية، في شبه الرخويات مثلًا.
من جانب آخر، بعض بطنيات الأرجل ليس لها صدفة على الإطلاق، أو صدفة داخلية فقط أو حبيبات كلسية داخلية، وغالبًا ما تُعرف هذه الأنواع باسم الرخويات. شبه الرخويات عبارة عن رخويات رئوية ذات صدفة خارجية مخفضة إلى حدّ كبير والتي يتم تغطيتها جزئيًا في بعض الحالات عن طريق الوشاح.
مونوبلاكوفورا
من جانب آخر، يبدو أن الطبقة الصدفية من قذائف monoplacophoran قد خضعت لبعض التعديلات. في حين أن الصدف الطبيعي ، وجزء من الطبقة الصدفية لنوع واحد أحادي الطبقة (Veleropilina zografi)، يتكون من بلورات أراغونيت «تشبه الطوب»، فإن هذا الطوب يشبه الصفائح ذات الطبقات الأحادية. المحور c عمودي على جدار الغلاف ، والمحور a موازٍ لاتجاه النمو. يُفترض أن هذا الأراجونيت المرقق قد تطور من الطبقة الصدفية ، التي كان مرتبكًا بها تاريخيًا ، ولكنه يمثل حداثة داخل الرخويات.
النشأة
ومن جهة أخرى، تفرز حافة الوشاح صدفة مكونة من عنصرين؛ حيث يتكون العنصر العضوي بشكل أساسي من السكريات والبروتينات السكرية؛ وقد تتفاوت تفاوتاً واسعاً في تكوينها: بحيث تستعمل بعض الرخويات مجموعة كبيرة من جينات التحكم في الكيتين على شكل مصفوفة، بينما يستعمل البعض الآخر جيناً واحداً فقط، مما يشير إلى أن دور الكيتين في هيكل الصدفة متغير إلى حدّ كبير. ويمكن أن لا يتواجد الكيتين أساساً في بعض الرخويات مثل مونوبلاكورا. يتحكم هذا العنصر العضوي في تكوين بلورات كربونات الكالسيوم (الفوسفات، باستثناء Cobcrephora )، ويحدد متى وأين تبدأ وتتوقّف البلورات عن النمو، ومدى سرعة تمددها ؛ حتى أنه يتحكم في تعدد أشكال البلورات المترسبة، وفي موضع واستطالة تلك البلورات ووقف نموها إن لَزِمَ الأمر.
وفي السياق ذاته، يتم تشكيل قوقعة الرخويات وإصلاحها وصيانتها بواسطة جزء من علم التشريح يسمى الوشاح. عادة ما تنعكس أي إصابات أو حالات غير طبيعية في الوشاح على شكل وهيئة وحتى لون القوقعة. عندما يواجه الحيوان ظروفًا قاسية تحد من إمداداته الغذائية، أو تجعله في سبات لفترة من الزمن، غالبًا ما يتوقف الوشاح عن إنتاج المادة التي تفرزها القوقعة. وعندما تتحسن الظروف مرة أخرى ويستأنف الوشاح مهمته، يتم إنتاج تلك المادة على نحوٍ متنامٍ.
وفي هذا السياق، لتكوين الصدفة، يتطلب وجود آلية بيولوجية معينة؛ حيث يتم ترسيب الصدفة داخل حجرة صغيرة، الجزء الفارغ منها، وهي حجرة مغلقة عن البيئة الخارجية بواسطة قشرة الصدفة، وهي طبقة خارجية جلدية حول حافة القشرة، وهي الجزء الذي يحدث فيه النمو. تقوم قشرة الصدفة بتغطية الجزء الخارجي، الذي يحدها بالأسطح الأخرى وهي الغلاف والوشاح. تعمل قشرة الصدفة كإطار يمكن من خلاله إيقاف الطبقة الخارجية من إنتاج الكربونات، ولكن يمكنها كذلك بأن تسمح للأيونات بالتراكم بتركيزات كافية لحدوث التبلور. يتم تحفيز تراكم الأيونات بواسطة مضخات أيونية معبأة داخل الظهارة المتكلسة. ويتم الحصول على أيونات الكالسيوم من بيئة الكائن الحي من خلال الخياشيم والأمعاء والظهارة، ولاحقًا، يتم نقلها بواسطة الهيموليمف («الدم») إلى الظهارة المتكلسة، وتخزينها كحبيبات داخل الخلايا أو فيما بينها؛ حيث تكون جاهزة للإذابة وضخها إلى الجزء الخارجي إن لَزِمَ الأمر. تُعتَبَر المصفوفة العضوية الناقلة التي توجه التبلور، كما تتحكم في ترسب وضبط معدل البلورات عن طريق الهرمونات التي تنتجها الرخويات. ونظرًا لفرط تشبع الجزء الخارجي للكتلة، يمكن اعتبار المصفوفة على أنها عائق، بدلاً من أن تكون محفزاً لترسب الكربونات؛ وعلى الرغم من أنها تعتبر نواة للبلورات وتتحكم في شكلها واتجاهها وتعدد أشكالها، إلا أنها توقف نموها بمجرد وصولها إلى الحجم المطلوب. تعد النواة بطانية الظهارة في Neopilina و Nautilus ، ولكنها تعتبر خارجية الظهارة في ذوات الصدفتين وبطنيات الأرجل.
ومن جهة أخرى، يتضمن تكوين الصدفة عددًا من الجينات وعوامل نسخ محددة. بشكل عام، تعتبر عوامل النسخ وجينات الإشارة متحفظة على نحو عميق، ولكن البروتينات الموجودة في جزء الإفراز مستخلصة بدرجة كبيرة وتتطور على نحو أسرع. يعمل الجين المحفور على إزالة علامات حافة الصدفة؛ حيث يتحكم dpp في شكل الغلاف، أما Hox1 و Hox4 فإنهما يتحكمان في بداية التمعدن. في أجنة بطنيات الأرجل، يتم التعبير عن Hox1 بتراكم الصدفة؛ ومع ذلك لا يمكن أن يكون هناك أي ارتباط بين جينات Hox وتكوين صدفة رأسيات الأرجل. يزيد البيرلوسين من معدل ترسيب كربونات الكالسيوم لتشكيل الصدفة عندما تكون في مياه البحر المشبعة؛ هذا البروتين هو من نفس مجموعة البروتينات (النوع C ليكتينات) وهي تلك المسؤولة عن تكوين قشر البيض وبلورات حصوات البنكرياس، لكن دور الليكتينات من النوع C في التمعدن غير واضح. يعمل البيرلوسين مع البيرلوسترين، وهو قريب وأصغر من اللوسترين أ، كبروتين مسؤول عن مرونة الطبقات العضوية التي تجعل الصدف مقاومًا للتشقق. لدى Lustrin A تشابهًا هيكليًا ملحوظًا مع البروتينات المشاركة في تمعدن الدياتومات – بالرغم من أنه يتم استخدام السيليكا مع الدياتومات بدلاً من الكالسيت لعمل التجارب!
سطح الصدف ، بناء رياضي
النحت (الرخويات)
بروتين صدفة Brachiopod ، أوراق مارغريت جوب
التطور
وفي هذا الصدد، تعتبر أصداف الرخويات (خاصة تلك التي تكون في الأنواع البحرية) متينة للغاية وتدوم أطول من الحيوانات الرخوة التي تنتجها لفترة طويلة جدًا (وأحيانًا لآلاف السنين حتى دون أن تتحجَّر). تتحجر أغلب أصداف الرخويات البحرية بسهولة إلى حد ما، كما يعود تاريخ أصداف الرخويات الأحفورية إلى العصر الكمبري. وتشكل كميات كبيرة من الأصداف أحيانًا على هيئة رواسب، وعلى مدى فترة زمنية جيولوجية معينة، يمكن أن تنضغط على هيئة رواسب الحجر الجيري.
ومن ناحية أخرى، يحتوي aplacophora عديم الصدفة على قشرة كيتينية تم تشبيهها بهيكل الصدفة؛ لقد تم اقتراح أن دباغة هذه البشرة ، بالاقتران مع التعبير عن البروتينات الإضافية ، يمكن أن تكون قد مهدت المرحلة التطورية لإفراز قشرة كلسية في رخويات أسلاف تشبه aplacophoran.
وفي السياق ذاته، أكثر من السجل الأحفوري من الرخويات يتكون من أصدافها، منذ قذيفة وغالبا ما يكون جزء فقط المعدنية من الرخويات (ولكن انظر كذلك Aptychus والغطاء الخيشومي). عادة ما يتم الحفاظ على الأصداف على شكل كربونات الكالسيوم - وعادة ما يكون أي أراجونيت كاذب الشكل مع الكالسيت. يمكن حماية الأراجونيت من إعادة التبلور إذا تم إبعاد الماء عن طريق مادة كربونية ، ولكن هذا لم يتراكم بكميات كافية حتى الكربونفرن ؛ وبالتالي ، فإن الأراجونيت الأقدم من الكربوني غير معروف عمليًا: ولكن يمكن أحيانًا استنتاج التركيب البلوري الأصلي في ظروف محظوظة ، مثل ما إذا كانت الطحالب تغلف عن كثب سطح القشرة ، أو إذا كان العفن الفوسفاتي يتشكل بسرعة أثناء التكوّن.
إضافةً إلى ذلك، تم استيعاب قشرة الرخويات في عدد من السلالات ، بما في ذلك رأسيات الأرجل القولونية والكثير من سلالات بطنيات الأقدام. ينتج عن انحراف بطنيات الأقدام قشرة داخلية ، ويمكن أن تحدث عن طريق تعديلات تطورية طفيفة نسبيًا مثل تلك الناتجة عن التعرض لتركيزات عالية من البلاتين.
إضافةً إلى ذلك، يُظهر السجل الأحفوري أن جميع فئات الرخويات قد تطورت منذ نحو 500 مليون سنة من سلف صدفي يشبه نوعاً ما monoplacophoran الحديث، وأن التعديلات على شكل الصدفة أدت في النهاية إلى تكوين فئات وأنماط حياة جديدة. ومع ذلك، تشير مجموعة متزايدة من البيانات الجزيئية والبيولوجية إلى أن بعض سمات الأصداف قد تطورت عدة مرات على الأقل بشكل مستقل. إن الطبقة الصدفية هي بنية معقدة، ولكن بدلاً من أن تكون صعبة التطور، فقد نشأت في الواقع عدة مرات بشكل متقارب. تختلف الجينات المستعملة للتحكم في تكوينها اختلافًا كبيرًا بين الأصناف: حيث تم العثور على أقل من 10 ٪ من الجينات (غير التدبيرية المنزلية) في الأصداف التي تنتج في الصدف بطني الأرجل عن تلك التي في ذوات الصدفتين: كما تم العثور كذلك على أغلب هذه الجينات المشتركة في تمعدن الأعضاء في نسب الديوتروستوم. يتم دعم الأصول المستقلة لهذه السمة بشكل أكبر من خلال الاختلافات البلورية بين الفروع: حيث يختلف اتجاه محاور الأراجونيت" المترسب، والتي تشكل الطبقة الصدفية في كل من monoplacophora، في بطنيات الأرجل وذوات الصدفتين.
الكيتون
وفي هذا السياق، تتكون أصداف الكيتون من ثمانية صمامات كلسية متداخلة ، محاطة بحزام.
ومن جهة أخرى، أخيرًا ، قد تخلق بطنيات الأرجل ذات نمط النمو المحدد بنية شفة واحدة وطرفية عند الاقتراب من النضج ، وفيما بعد يتوقف النمو. وتشمل هذه cowries (Cypraeidae) وقذائف خوذة (Cassidae)، وكلاهما مع الشفاه في تحول، وconchs الحقيقية (فصيلة الدولع) أن تطوير الشفاه حرق، والكثير من القواقع البرية التي تتطور هياكل الأسنان أو فتحات مقيدة عند بلوغ الحجم الكامل.
ومن جهة أخرى، في بعض الأجناس البحرية ، خلال مسار النمو الطبيعي ، يمر الحيوان بمراحل سكون دورية حيث لا يزيد حجم الصدفة الكلي ، ولكن يتم إنتاج شفة كثيفة ومعززة إلى حدّ كبير. عندما تتشكل هذه الهياكل بشكل متكرر مع النمو الطبيعي بين المراحل ، يكون الدليل على هذا النمط من النمو مرئيًا على السطح الخارجي للقشرة ، وتسمى هذه المناطق الرأسية السميكة غير العادية بالدوالي ، المفرد " varix ". الدوالي هي نموذجية في بعض العائلات بطني الأرجل البحرية، بما في ذلك Bursidae ، موريسيدي، و Ranellidae .
مساحة القشرة: Flare و Verm و Spire
مساحة شل: حالة «الراحة»
الكيمياء
من جهة ثانية، يبدو أن تكوين صدفة الرخويات مرتبط بإفراز الأمونيا التي تنشأ من اليوريا. إنَّ وجود أيون الأمونيوم يرفع من درجة الحموضة في السائل خارج جسم الرخويات، ويفضل ترسب كربونات الكالسيوم. هذه الآلية ليست فقط للرخويات، ولكن كذلك لسلالات التمعدن الأخرى غير ذات الصلة.
Scaphopods
الأضرار التي قد تلحق بالأصداف
ومن ناحية أخرى، يشبه غلاف الكثير من سكافوبودز («قذائف الناب») ناب الفيل المصغر في الشكل العام ، إلا أنه مجوف ومفتوح من كلا الطرفين.
الأصداف اللؤلؤية
وفي هذا السياق، يشكل الصدف اللؤلؤي، المعروف كذلك باسم أم اللؤلؤ، الطبقة الداخلية لهيكل الصدفة في بعض مجموعات بطنيات الأرجل والرخويات ذات الصدفتين، وأغلبها في أسلاف العائلات الرخوية، مثل القواقع العليا (Trochidae) ومحار اللؤلؤ (Pteriidae). وكغيرها من الطبقات الجيرية الأخرى في الصدفة، يتم تكوين هذا النوع من الأصداف عن طريق الخلايا الظهارية (تلك التي تتكون من الطبقة الجرثومية للأديم الظاهر) لنسيج الوشاح. ومع ذلك، لا يبدو أن هذه الأصداف تمثل تعديلًا لأنواع أخرى من الأصداف، لأنها تحتوي على مجموعة مميزة من البروتينات.
النمو والتطوُّر
ومن ناحية أخرى، يُحَدَّد شكل قوقعة الرخويات بالبيئة التي يعيش فيها الكائن الحي. في الرخويات التي تتغير بيئتها المحيطة من شكل اليرقات إلى شكل البلوغ، يخضع شكل الصدفة كذلك لتعديل واضح أثناء التحول. قد تحتوي قشرة اليرقات على معادن مختلفة تمامًا عن المحارة البالغة، وربما تكون مكونة من الكالسيت غير المتبلور مقابل الأراجونيت في المحارة البالغة.
من جهة ثانية، في تلك الرخويات التي تحتوي على أصداف وتنمو نموَّاً غير محدود، تنمو الصدفة بشكل مطرد على مدى عمر الرخويات عن طريق إضافة كربونات الكالسيوم إلى حافة الصدفة الأمامية أو الفتحة. وهكذا تصبح الصدفة تدريجيًا أطول وأوسع، وفي شكل حلزوني متزايد، لاستيعاب الحيوان النامي بداخلها على نحوٍ أفضل. وتزداد سماكة الصدفة مع نموها، بحيث تظل قوية نسبيًا مع حجمها.
ومن جهة أخرى، يتم تمييز منطقة إفراز الصدفة في وقت مبكر جدًا من التطور الجنيني؛ حيث تتكاثف منطقة من الأديم الظاهر، ثم تتمدَّد لتصبح «غدة قوقعة». يرتبط شكل هذه الغدة بشكل الصدفة البالغة؛ في بطنيات الأرجل، وتكون على شكل حفرة بسيطة فيها، أما في ذوات الصدفتين، فإنها تشكل أخدودًا يصبح في النهاية الخط المفصلي بين الصدفتين؛ حيث يتم ربطهما عن طريق رباط معين. لاحقًا، تتبخر الغدة في الرخويات التي تنتج صدفة خارجية. أثناء الانزلاق، يتم تشكيل قشرة الصدفة - والتي ستكون ناقلة للقشرة النامية - حول فتحة الانغماس، مما يسمح بترسب القشرة عند قلب الغدة. تظهر مجموعة واسعة من الإنزيمات أثناء تكوين الغلاف، بما في ذلك الأنهيدراز الكربوني، والفوسفاتاز القلوي، و DOPA-oxidase (التيروزيناز) / البيروكسيداز.
الشكل
كذلك، يتم التحكم بشكل الصدفة الرخوية سواء عن طريق معدل النمو وعوامل النسخ (مثل عوامل النسخ الجذرية و decapentaplegic). يُعتقد أن تبسيط شكل الصدفة يتطور بسهولة نسبيًا، وقد فقدت الكثير من سلالات بطنيات الأرجل بشكل مستقل في الشكل الملفوف المعقد. ومع ذلك، تتطلب إعادة اللف الكثير من التعديلات المورفولوجية وهو أمر نادر جدًا. وعلى الرغم من ذلك، فهو أمر لا يزال من الممكن إنجازه؛ فمن المعروف أن سلالة واحدة لم يتم لفها لمدة 20 مليون سنة على الأقل، قبل تعديل معدل نموّها لاستعادة التشكل الملفوف.
وفي السياق ذاته، في ذوات الصدفتين، يتغير الشكل من خلال النمو، ولكن يبقى نمط النمو ثابتاً، أو بالأحرى، في كل نقطة حول فتحة الصدفة، يظل معدل النمو ثابتًا. وينتج عن ذلك مناطق مختلفة ذات معدلات نمو مختلفة، وبالتالي يُعتبَر لف الصدفة والتغيير في شكلها - تحدبها وشكل الفتحة - طريقة متسقة ومتوقعة.
ومن ناحية أخرى، يتم استخدام عدد من المصطلحات لوصف شكل قوقعة الرخويات؛ في الرخويات أحادية المصراع، تلتف الأصداف المعوية لجهة الخلف (بعيدًا عن الرأس)، بينما تلتف الأصداف الخارجية إلى الأمام؛ المصطلحات المكافئة في الرخويات ذات الصدفتين هي opisthogyrate و prosogyrate على التوالي.
وعلى صعيد آخر، شكل الصدفة له مكون بيئي وجيني؛ حيث يمكن لاستنساخ بطنيات الأرجل أن تتشكّل بأشكال مختلفة من الأصداف. وفي الواقع، يمكن أن يكون التباين داخل هذه الأنواع أكبر بعدة مرات من التباين في أنواع أخرى.
الخسارة الثانوية
ومن جهة أخرى، يتم فقدان صدفة بالغة في بعض بطنيات الأرجل من خلال التخلص من صدفة اليرقات؛ أما بالنسبة لبطنيات الأرجل الأخرى وفي رأسيات الأرجل، تُفقد الصدفة أو تنزع المعادن منها بارتشاف الكربونات عن طريق نسيج الوشاح.
بروتينات الصدفة
ومن جهة أخرى، يعمل المكون القابل للذوبان في مصفوفة الغلاف على تثبيط التبلور عندما يكون في شكله القابل للذوبان، ولكن عندما يرتبط بركيزة غير قابلة للذوبان، فإنه يسمح بتنوِّي البلورات. من خلال التبديل من الشكل المذاب إلى الشكل المرفق والعودة مرة أخرى، يمكن للبروتينات إنتاج دفعات من النمو، مما ينتج عنه بنية جدارية للصدفة.
علاوةً على ذلك، في المحار وربما في أغلب الرخويات، تحتوي الطبقة الصدفية على هيكل عضوي من البروتين MSI60، والذي يشبه إلى حد ما حرير العنكبوت ويشكل صفائح؛ تستعمل الطبقة المنشورية MSI31 لبناء الإطار الخاص بها. كما يشكل هذا كذلك صفائح بيتا. ونظرًا لأن الأحماض الأمينية الحمضية، مثل حمض الأسبارتيك وحمض الجلوتاميك، هي أوسطة مهمة للتمعدن الحيوي، تميل بروتينات الصدفة في أن تكون غنية بهذه الأحماض الأمينية. يعد حمض الأسبارتيك، والذي يمكن أن يشكل ما يصل إلى 50٪ من بروتينات هيكل الصدفة، متواجداً بكثرة في طبقات الكالسيتيك، كما يوجد بكثافة في طبقات الأراجونيت. عادة ما ترتبط البروتينات ذات النسب العالية من حمض الجلوتاميك بكربونات الكالسيوم غير المتبلورة.
في هذا الإطار، تتحكم المئات من البروتينات القابلة للذوبان وغير القابلة للذوبان في تكوين الصدفة. ويتم إفرازها في الجزء الخارجي عن طريق الوشاح، الذي يفرز كذلك البروتينات السكرية والبروتيوغليكان والسكريات المتعددة والكيتين التي لها دور في تشكيل مصفوفة الغلاف العضوي. تميل البروتينات غير القابلة للذوبان في أن تلعب دورًا مهماً في التحكم في التبلور. وتميل المصفوفة العضوية للأصداف إلى أن تتكون من β- كيتين وحرير فيبروين. ويقوم البيرلوسين بتحفيز ترسب الكربونات، ويوجد هذا المكوّن في واجهة الطبقة الكيتينية والأراغونية في بعض الأصداف. كما تعتبر مصفوفة الغلاف الحمضي ضرورية لتكوين الصدفة في رأسيات الأرجل؛ أما في الحبار غير المعدني gladius فهي تعتبر أساسية.
قراءة متعمقة
علاوةً على ذلك، أبوت ، ر. تاكر ، 1974. الصدف الأمريكي . الطبعة الثانية. فان نوستراند راينهولد ، نيويورك ،
وعلى صعيد آخر، أبوت ، ر. تاكر ، 1989، خلاصة وافية للأرضية: دليل ملون لأكثر من 2000 قذيفة أرضية في العالم ، علماء المالاكولوجيا الأمريكيون ، ماديسون للنشر أسوشيتس ، نيويورك.رقم ISBN 0-915826-23-2
من جهة ثانية، أبوت ، ر. تاكر ، 1986. صدف أمريكا الشمالية ، مطبعة سانت مارتن ، نيويورك ،
في هذا الإطار، أبوت ر. تاكر ، صدف العالم: دليل للأنواع الأكثر شهرة ، 1985، جولدن بريس ، نيويورك ،
كونشولوجيون أمريكا
من جانب آخر، Abbott R. Tucker & S. Peter Dance ، خلاصة وافية للأصداف البحرية ، دليل كامل الألوان لأكثر من 4200 من الأصداف البحرية في العالم . 1982، EP Dutton ، Inc ، نيويورك ،
روابط خارجية
قذائف أنواع المياه العذبة
نموذج نمو القشرة
من مشروع عروض Wolfram - يتطلب مشغل CDF (مجاني) :
تكوين نمط
من جهة ثانية، تمت نمذجة عمليات تشكيل الأنماط في أصداف الرخويات بنجاح باستخدام أنظمة التفاعل والانتشار أحادية البعد ، ولا سيما نظام Gierer-Meinhardt الذي يعتمد بشدة على نموذج تورينج.
البُنيَة
من جانب آخر، تتكون طبقات كربونات الكالسيوم في غلاف الصدفة بشكل عام من نوعين: طبقة موشورية خارجية تشبه الطباشير وطبقة داخلية لؤلؤية أو صفائحية أو صدفية الشكل. عادةً ما تشتمل الطبقات على مادة تسمى كونشيولين، وفي الغالب تكون موجودة من أجل أن تساعد في ربط بلورات كربونات الكالسيوم معًا. وتتألف في أغلبها من كونكيولين كينون -tanned البروتينات.
علاوةً على ذلك، تحتوي بعض الأصداف على أصباغ مدمجة في الهيكل، وهذا ما يفسر الألوان والأنماط المدهشة التي يمكن رؤيتها في بعض أنواع الأصداف البحرية وأصداف بعض القواقع الأرضية الاستوائية. كما تحتوي أصباغ الأصداف هذه أحيانًا على مركبات مثل البيرول والبورفيرينات.
وعلى صعيد آخر، تتكون الأصداف على وجه التقريب في جميع الأحوال من أشكال متعددة من كربونات الكالسيوم - إما الكالسيت أو الأراجونيت. وفي كثير من الحالات، مثل أصداف الكثير من بطنيات الأرجل البحرية، تتكون طبقات مختلفة في الصدفة من الكالسيت والأراجونيت. وفي عدد قليل من الأنواع التي تعيش بالقرب من الفتحات الحرارية المائية، يتم استخدام كبريتيد الحديد لبناء الغلاف. لا تستعمل الرخويات الفوسفات أبدًا، باستثناء الكوبكريفورا، التي تتكون من تقارب رخوي غير معروف.
وعلى صعيد آخر، يتم إفراز طبقة قشرة الصدفة والطبقة المنشورية بواسطة مجموعة هامشية من الخلايا، بحيث تنمو الصدفة عند حافتها الخارجية. وعلى عكس ذلك، فإن الطبقة الصدفية تكون مستخلصَة من السطح الرئيسي للوشاح.
وفي هذا الصدد، إن الأصداف هي عبارة عن مواد مركبة من كربونات الكالسيوم (والتي توجد إما على شكل كالسيت أو أراجونيت) وجزيئات عضوية كبيرة (والتي تحتوي على بروتينات وعديد السكاريد بشكل أساسي). كما يمكن أن تحتوي الأصداف على الكثير من الزخارف فائقة الدقة، وأكثرها شيوعًا هي الصفيحة المتقاطعة (الأراجونيت) والمنشورية (الأراجونيت أو الكالسيت) والمتجانسة (الأراجونيت) والمرققة (الأراجونيت) والصدف اللؤلؤي (الأراجونيت). وعلى الرغم من أنه ليس الأكثر شيوعًا، إلا أن الصدف اللؤلؤي هو أكثر الأنواع دراسة.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟