بروتين الGTPase
المحتويات
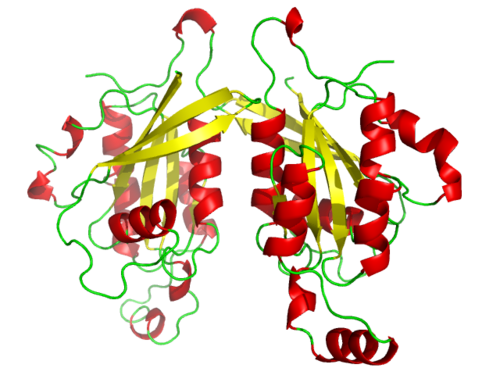
تعريفًا بالموضوع، GTPases هي عائلة كبيرة من إنزيمات الهيدرولاز التي تعلق بالنيوكليوتيد غوانوزين ثلاثي الفوسفات (GTP) وتتحلل عبر الماء إلى غوانوزين ثنائي فوسفات (الناتج المحلي الإجمالي). يحدث ارتباط GTP والتحلل المائي في مجال G المحفوظ والذي يشترك في الكثير من GTPases. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
البروتينات الكبيرة
- انظر إلى الدينامين كنموذج أولي لـ GTPases الأحادية الكبيرة.
- انظر كذلك
- مستقبلات البروتين G
- دينامين
- بروتين شبيه بالدينامين 120 كيلو دالتون
- المراجع
- روابط خارجية
الزخارف الرئيسية
في هذا الإطار، في أغلب قواعد GTPases ، يتم نقل خصوصية الجوانين الأساسي مقابل النيوكليوتيدات الأخرى بواسطة نموذج التعرف على القاعدة، والذي يحتوي على تسلسل الإجماع [N / T] KXD.
وفي هذا السياق، لاحظ أنه في حين أن التوبولين والبروتينات الهيكلية ذات الصلة ترتبط كذلك بـ GTP وتتحلل بالماء كجزء من وظيفتها لتشكيل الأنابيب داخل الخلايا، فإن هذه البروتينات تستعمل مجال توبولين مميزًا لا علاقة له بمجال GTPase المستعمل عن طريق إشارات GTPases.
بروتينات ج غير المتجانسة
في هذا الإطار، البروتينات G heterotrimeric يمكن تصنيفها حسب تسلسل التماثل من وحدة ألفا والأهداف الوظيفية إلى أربع عائلات: عائلة G الصورة، G ط الأسرة، G الأسرة ف وG 12 عائلة. تحتوي كل عائلة من عائلات بروتين G α هذه على أعضاء متعددة، بحيث تحتوي الثدييات على 16 جينًا مميزًا للوحدة الفرعية ألفا . تتكون G β و G γ بالمثل من الكثير من الأعضاء، مما يزيد من التنوع الهيكلي والوظيفي المتغاير. من بين الجزيئات المستهدفة لبروتينات G المحددة، الإنزيمات المولدة للرسول الثانية adenylyl cyclase وphospholipase C ، إلى جانب القنوات الأيونية المختلفة.
ومن ناحية أخرى، يتم إنهاء إشارات البروتين G عن طريق التحلل المائي لـ GTP المرتبط بالناتج المحلي الإجمالي المرتبط. يمكن أن يحدث هذا من خلال نشاط GTPase الجوهري للوحدة الفرعية α ، أو يتم تسريعها بواسطة بروتينات تنظيمية منفصلة تعمل كبروتينات تنشيط GTPase (GAPs)، مثل أعضاء منظم إشارات البروتين G (RGS) الأسرة). تعمل سرعة تفاعل التحلل المائي كساعة داخلية تحد من طول الإشارة. بمجرد أن يتم إرجاع G α إلى كونه مرتبطًا بالناتج المحلي الإجمالي، فإن جزأين من المتغير المتغاير يعادان الارتباط بالحالة الأصلية غير النشطة.
وفي هذا السياق، تعمل بروتينات G غير المتجانسة كمحولات للمستقبلات المقترنة بالبروتين G ، حيث تقترن تنشيط المستقبلات بمؤثرات الإشارات النهائية والمرسلات الثانية. في الخلايا unstimulated، يتم تجميع البروتينات G heterotrimeric كما بد من الناتج المحلي الإجمالي، أرتب غير نشط (G α -GDP-G βγ مجمع). عند تنشيط المستقبلات، يعمل المجال داخل الخلايا للمستقبل المنشط كمرفق البيئة العالمية لإطلاق الناتج المحلي الإجمالي من مركب البروتين G ولتعزيز ارتباط GTP في مكانه. يخضع المركب المرتبط بـ GTP لتحول تشكيل نشط يفصله عن المستقبل ويقسم كذلك المركب إلى مكونه الفرعي المكون من بروتين G ألفا وبيتا جاما. في حين أن هذه الوحدات الفرعية للبروتين G المنشط أصبحت الآن حرة في تنشيط مؤثراتها، فإن المستقبل النشط يتمتع بالحرية كذلك لتنشيط بروتينات G الإضافية - وهذا يسمح بالتنشيط التحفيزي والتضخيم حيث يمكن لمستقبل واحد تنشيط الكثير من بروتينات G.
ومن ناحية أخرى، البروتين Heterotrimeric G تتكون المجمعات من ثلاث وحدات فرعية متميزة بروتين يدعى ألفا (α)، بيتا (β) وغاما (γ) مفارز. تحتوي الوحدات الفرعية ألفا على مجال ربط GTP / GTPase المحاط بمناطق تنظيمية طويلة، بينما تشكل الوحدات الفرعية بيتا وغاما مجمعًا ثنائي الأبعاد ثابتًا يُشار إليه بمجمع بيتا جاما. عند تنشيطه، ينفصل بروتين G غير المتجانسة إلى وحدة ألفا الفرعية النشطة المرتبطة بـ GTP ووحدة فرعية منفصلة لبيتا جاما، يمكن لكل منها أداء أدوار إشارات مميزة. يتم تعديل الوحدة الفرعية α وبواسطة مثبتات دهنية لزيادة ارتباطها بالنشرة الداخلية لغشاء البلازما.
عائلة عامل الترجمة
وفي السياق ذاته، تلعب GTPases لعائلة عوامل الترجمة المتعددة أدوارًا مهمة في بدء واستطالة وإنهاء التخليق الحيوي للبروتين.
عوامل النقل
في هذا الإطار، لمناقشة إزفاء العوامل ودور GTP، انظر الجسيمات الاعتراف إشارة (الخطة).
آلية
يمكن تغيير مقدار GTPase النشط بعدة طرق:
وعلى صعيد آخر، ليتم تنشيطها، يجب ربط GTPases بـ GTP. نظرًا لتحويل الناتج المحلي الإجمالي المرتبط مباشرة إلى GTP غير معروفة، يتم حث GTPases غير النشطة على إطلاق الناتج المحلي الإجمالي المرتبط من خلال عمل بروتينات تنظيمية متميزة تدعى بعوامل تبادل نيوكليوتيدات الجوانين أو GEFs. يعمل GTPase الخالي من النوكليوتيدات على إعادة ربط GTP، والذي يعد مفرطًا في الخلايا السليمة مقارنة بالناتج المحلي الإجمالي، مما يقبل لـ GTPase بالدخول إلى حالة التشكل النشط وتعزيز تأثيراته على الخلية. يعد تنشيط GEFs آلية التحكم الأساسية في تحفيز وظائف إشارات GTPase ، على الرغم من أن GAPs تلعب كذلك دورًا مهمًا. بالنسبة لبروتينات G غير المتجانسة والكثير من البروتينات الصغيرة المرتبطة بـ GTP ، يتم تحفيز نشاط GEF بواسطة مستقبلات في سطح الخلية استجابةً للإشارات خارج الخلية
من جانب آخر، يؤدي تسريع التحلل المائي GTP بواسطة GAPs إلى تقليل كمية GTPase النشطة.
إضافةً إلى ذلك، يسرع تسريع تفكك الناتج المحلي الإجمالي بواسطة GEFs من تراكم GTPase النشط.
من جانب آخر، يؤدي التحلل المائي لـ GTP المرتبط بـ GTPase (نشط) إلى إلغاء تنشيط وظيفة الإشارة / المؤقت للإنزيم. يحدث التحلل المائي للفوسفات الثالث من GTP لتكوين ثنائي فوسفات الغوانوزين (GDP) و فوسفور Pi ، الفوسفور غير العضوي، بواسطة آلية S N 2 (انظر الاستبدال nucleophilic) عبر حالة انتقال خماسي التكافؤ ويعتمد على وجود أيون المغنيسيوم مغ2+ .
وفي هذا الصدد، يبطئ تثبيط تفكك الناتج المحلي الإجمالي بواسطة مثبطات تفكك النوكليوتيدات (GDIs) تراكم GTPase النشط.
كذلك، يمكن لنظائر GTP الاصطناعية مثل GTP- γ -S و β و γ -methylene-GTP و β و γ -imino-GTP التي لا يمكن تحللها بالماء قفل GTPase في حالتها النشطة.
من جانب آخر، يمكن للطفرات (مثل تلك التي تقلل معدل التحلل المائي الجوهري GTP) أن تحبس GTPase في الحالة النشطة، ومثل هذه الطفرات في GTPase Ras الصغيرة شائعة بشكل خاص في بعض أشكال السرطان.
وفي هذا السياق، ترتبط بعض GTPases كذلك ببروتينات ملحقة تسمى مثبطات تفكك النوكليوتيدات الجوانين أو GDIs التي تعمل على استقرار الحالة غير النشطة المرتبطة بالناتج المحلي الإجمالي.
من جانب آخر، يعمل نشاط GTPase بإيقاف لأدوار إشارات GTPases من خلال إعادة البروتين النشط المرتبط بـ GTP إلى الحالة غير النشطة المرتبطة بالناتج المحلي الإجمالي. أغلب "GTPases" لها نشاط GTPase، والذي يقبل لها بالبقاء نشطة فقط لفترة قصيرة جدا قبل إلغاء تنشيط نفسها عن طريق تحويل GTP المربوطة إلى الناتج المحلي الإجمالي المرتبط. ومع ذلك، تستعمل الكثير من GTPases كذلك بروتينات ملحقة والتي تعرف: بروتينات تنشيط GTPase أو GAPs لتسريع نشاط GTPase. هذا يقلل من العمر النشط للإشارات GTPases. تحتوي بعض GTPases على نشاط GTPase جوهري قليل أو معدوم، وتعتمد كليًا على بروتينات GAP من أجل التعطيل (مثل عامل ADP-ribosylation أو عائلة ARF لبروتينات ربط GTP الصغيرة).
المهام
كذلك، تحويل الإشارة استجابة لتنشيط مستقبلات سطح الخلية، بما في ذلك المستقبلات عبر الغشاء مثل تلك التي تتوسط الذوق والشم والرؤية.
علاوةً على ذلك، نقل الحويصلات داخل الخلية، والإفراز والامتصاص بوساطة الحويصلة، من خلال التحكم في GTPase لتجميع غلاف الحويصلة.
كذلك، تكون GTPases نشطة حينما تكون مرتبطة بـ GTP وغير نشطة حينما تكون مرتبطة بالناتج المحلي. في نموذج - محول الطاقة - المستجيب، تعمل إشارات GTPases كمحولات طاقة لتنظيم نشاط البروتينات المستجيبة. يعود هذا التبديل غير النشط إلى التغييرات والمنقلبات التوافقية في البروتين الذي يميز هذين الشكلين، وخاصةً في مناطق «التبديل» التي تكون في الحالة النشطة قادرة على القيام باتصالات بروتينية بروتينية مع البروتينات الشريكة التي تسعى بتغير وظيفة هذه المؤثرات.
كذلك، تعمل GTPases كجزيئات أو مؤقتات في الكثير من العمليات الخلوية الأساسية.
- التخليق الحيوي للبروتين (المعروف كذلك باسم الترجمة) في الريبوسوم.
- تنظيم خلية التمايز، انتشار، تقسيم والحركة.
- انتقال البروتينات عبر الأغشية.
تتضمن أمثلة هذه الأدوار:
البروتينات الصغيرة
إضافةً إلى ذلك، تعمل GTPases الصغيرة كمونومرات ولها وزن جزيئي يبلغ نحو 21 كيلودالتون والتي تتكون أساسًا من مجال GTPase. وتسمى كذلك بروتينات تنظيمية ملزمة للنيوكليوتيدات صغيرة أو أحادية الجوانين، «بروتينات ربط GTP صغيرة أو أحادية»، أو بروتينات G صغيرة أو أحادية، ولأن لها تماثلًا كبيرًا مع البروتين الذي تم تحديده لأول مرة، المسمى Ras ، يشار إليها كذلك باسم عائلة رأس GTPases الفائقة. تعمل GTPases الصغيرة بشكل عام كمفاتيح جزيئية ومحولات إشارة لمجموعة متنوعة من أحداث الإشارات الخلوية، وغالبًا ما تتضمن الأغشية أو الحويصلات أو الهيكل الخلوي. بحسب تسلسل الأحماض الأمينية الأولية وخصائصها الكيميائية الحيوية، يتم تقسيم الكثير من قواعد GTP الصغيرة لعائلة Ras الفائقة إلى خمس عائلات فرعية ذات وظائف مميزة: Ras و Rho (“Ras-homology”) و Rab و Arf و Ran . في حين يتم تنشيط الكثير من GTPases الصغيرة بواسطة GEFs الخاصة بهم استجابة للإشارات داخل الخلايا المنبثقة من مستقبلات سطح الخلية (خاصة مستقبلات عامل النمو)، يتم تنشيط GEFs التنظيمية للعديد من GTPases الصغيرة الأخرى استجابة لإشارات الخلية الجوهرية، وليس إشارات سطح الخلية (الخارجية).
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟