تأشيب جسمي
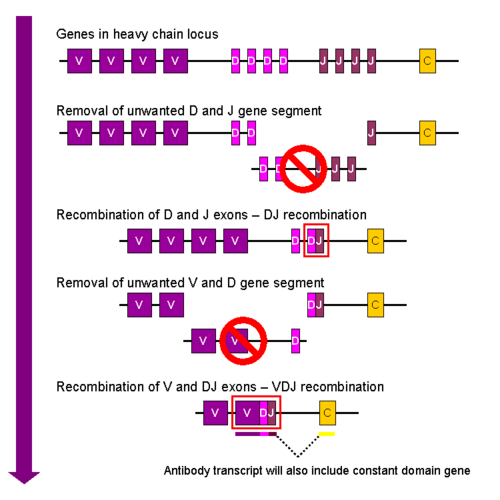
تعريفًا بالموضوع، التأشيب الجسمي هي آلية فريدة من نوعها من إعادة التركيب الجيني الذي يحدث فقط في تطوير الخلايا الليمفاوية من خلال المراحل النضج الأولى للخلايا البائية والخلايا التائية. هذه العملية تنتج جعبة متنوعة للغاية من الأجسام المضادة ومستقبلات الخلايا التائية التي توجد في الخلايا البائية والخلايا التائية على التوالي. هذه العملية هي السمة المميزة للنظام المناعة التكيفية وكان تطورها حدثا رئيسيا في تطور الفقاريات الفكية. وفيما يلي تفاصيل أوسع عن ذلك.
وفي السياق ذاته، هي آلية إعادة التركيب الجسدي التي تحدث فقط في تطوير الخلايا الليمفاوية خلال المراحل المبكرة من نضوج الخلايا التائية والبائية.ينتج عنه ذخيرة متنوعة للغاية من الأجسام المضادة / الغلوبولين المناعي ومستقبلات الخلايا التائية (TCRs) الموجودة في الخلايا البائية والخلايا التائية، على التوالي.هذه العملية هي السمة المميزة لجهاز المناعة التكيفي.
كذلك، يحدث إعادة التركيب V (D) J في الثدييات في الأعضاء اللمفاوية الأولية؛ (نخاع العظم للخلايا البائية والغدة الصعترية للخلايا التائية) وبطريقة عشوائية على وجه التقريب يعيد ترتيب المتغير (V)، وينضم (J)، وفي بعض الحالات، التنوع (D) شرائح الجين.تؤدي العملية في النهاية إلى تسلسلات جديدة للأحماض الأمينية في مناطق ارتباط المستضد من الغلوبولين المناعي و TCRs التي تسمح بالتعرف على المستضدات من جميع مسببات الأمراض على وجه التقريب بما في ذلك البكتيريا والفيروسات والطفيليات والديدان إلى جانب «الخلايا الذاتية المتغيرة» كما شوهد في السرطان.يمكن أن يكون التعرف كذلك حساسيًا بطبيعته (مثل حبوب اللقاح أو مسببات الحساسية الأخرى) أو قد يتطابق مع أنسجة المضيف ويؤدي إلى المناعة الذاتية.
كذلك، في سنة 1987، حصل سوسومو تونيغاوا على جائزة نوبل في علم وظائف الأعضاء أو الطب «لاكتشافه المبدأ الجيني لتوليد تنوع الأجسام المضادة».
السلسلة خفيفة
وفي هذا السياق، تعيد سلاسل كابا (κ) و (λ) لامدا من مواضع السلسلة الخفيفة للجلوبيولين المناعي ترتيبًا متشابهًا للغاية، باستثناء أن السلاسل الخفيفة تفتقر إلى المقطع D.بعبارة أخرى، تتضمن الخطوة الأولى لإعادة تركيب السلاسل الخفيفة ربط السلاسل V و J لإعطاء مركب VJ قبل إضافة جين السلسلة الثابتة أثناء النسخ الأولي.تؤدي ترجمة الرنا المرسال المقسم إما لسلسلة كابا أو لامدا إلى تكوين بروتين Ig κ أو السلسلة الخفيفة Ig λ .
علاوةً على ذلك، ينتج عن تجميع السلسلة الثقيلة Ig μ وإحدى السلاسل الخفيفة تكوين شكل مرتبط بالغشاء من الجلوبيولين المناعي IgM الذي يتم التعبير عنه على سطح الخلية البائية غير الناضجة.
خلفية
وفي السياق ذاته، تتكون جزيئات الأجسام المضادة البشرية (بما في ذلك مستقبلات الخلايا البائية) من سلاسل ثقيلة وخفيفة، تحتوي كل منها على مناطق ثابتة (C) ومتغيرة (V)، مشفرة وراثيًا في ثلاثة مواضع جينية:
ومن ناحية أخرى، موضع الغلوبولين المناعي (κ) (IGK) على الكروموسوم 2 ، الذي يحتوي على مقاطع الجينات لجزء من السلسلة الخفيفة للغلوبولين المناعي.
مناعيات
إضافةً إلى ذلك، تحتوي كل سلسلة ثقيلة أو جين سلسلة خفيفة على نسخ متعددة من ثلاثة أنواع مختلفة من المقاطع الجينية للمناطق المتغيرة من بروتينات الجسم المضاد.مثلًا، تحتوي منطقة السلسلة الثقيلة للجلوبيولين المناعي البشري على جزأين جيني ثابت (C μ و Cδ) و 44 مقطعًا جينيًا متغيرًا (V)، فضلًا عن 27 مقطعًا جينيًا متنوعًا (D) و 6 مقاطع جينية متصلة (J).تمتلك السلاسل الخفيفة كذلك مقطعين جيني ثابت (Cλ و Cκ) والكثير من مقاطع الجين V و J ، لكن لا تحتوي على مقاطع D جينية.تؤدي إعادة ترتيب الحمض النووي إلى انتقال نسخة واحدة من كل نوع من قطع الجينات إلى أي خلية لمفاوية معينة، مما يؤدي إلى إنتاج ذخيرة ضخمة من الأجسام المضادة؛ ما يقرب من 3 × 10^11 مجموعات ممكنة، على الرغم من إزالة بعضها بسبب التفاعل الذاتي.
في هذا الإطار، الموضع الثقيل للجلوبيولين المناعي (IGH @) على الكروموسوم 14 ، والذي يحتوي على المقاطع الجينية للسلسلة الثقيلة للجلوبيولين المناعي.
علاوةً على ذلك، يتم منع استجابة المناعة الذاتية عن طريق القضاء على الخلايا التي تتفاعل مع نفسها.يحدث هذا في الغدة الصعترية عن طريق اختبار الخلية ضد مجموعة من المستضدات الذاتية التي يتم التعبير عنها من خلال وظيفة منظم المناعة الذاتية (AIRE).يحتوي موضع السلسلة الخفيفة من الجلوبيولين المناعي لامدا على جينات مشفرة للبروتين يمكن فقدها مع إعادة ترتيبه.يعتمد هذا على آلية فسيولوجية وليس من العوامل الممرضة لسرطان الدم أو الأورام اللمفاوية.تستمر الخلية إذا قامت بإنشاء منتج ناجح لا يتفاعل مع نفسه، وإلا يتم تقليمها عن طريق موت الخلايا المبرمج.
وفي هذا الصدد، تتكون أغلب مستقبلات الخلايا التائية من سلسلة ألفا متغيرة وسلسلة بيتا.تتشابه جينات مستقبلات الخلايا التائية مع جينات الغلوبولين المناعي من حيث أنها تحتوي كذلك على أجزاء متعددة من الجينات V و D و J في سلاسل بيتا الخاصة بها (وشرائح الجين V و J في سلاسل ألفا الخاصة بها) والتي يتم إعادة ترتيبها أثناء تطور الخلايا الليمفاوية إلى تزويد تلك الخلية بمستقبل فريد للمستضد.مستقبل الخلايا التائية بهذا المعنى هو المكافئ التوبولوجي لجزء ربط مستضد من الجسم المضاد، وكلاهما جزء من عائلة الغلوبولين المناعي.
ومن جهة أخرى، موضع الجلوبيولين المناعي لامدا (λ) (IGL) على الكروموسوم 22 ، الذي يحتوي على المقاطع الجينية لبقية سلسلة الغلوبولين المناعي الخفيفة.
العملية
وفي السياق ذاته، تتم معالجة نهايات التشفير بشكل أكبر قبل ربطها من خلال الكثير من الأحداث التي تؤدي في النهاية إلى التنوع الوصلي.تبدأ المعالجة عندما يرتبط DNA-PK بكل نهاية DNA مكسورة ويقوم بتجنيد الكثير من البروتينات الأخرى بما في ذلك أرتيميس و XRCC4 و DNA ligase IV وسيرنونوس والكثير من بوليمرات الحمض النووي.يشكل DNA-PK مركبًا يؤدي إلى الفسفرة الذاتية، مما يؤدي إلى تنشيط أرتيميس.يتم فتح دبابيس الشعر الطرفية للترميز بواسطة نشاط أرتيميس.إذا تم فتحها في المركز، سينتج عن ذلك نهاية غير حادة للحمض النووي؛ ومع ذلك، في كثير من الحالات، يكون الفتح «خارج المركز» وينتج عنه بقاء قواعد إضافية على خصلة واحدة (نتوء).تُعرف هذه النيوكليوتيدات المتناوبة (P) بسبب الطبيعة المتناوبة للتسلسل الناتج عندما تحل إنزيمات إصلاح الحمض النووي المتراكمة.إن عملية فتح دبوس الشعر بواسطة أرتيميس هي خطوة حاسمة لإعادة التركيب V (D) J وهي معيبة في نموذج الفأر الذي يعاني من نقص المناعة الشديد (scid).
وفي السياق ذاته، يتم ربط نهايات الإشارة غير الحادة معًا لتشكيل قطعة دائرية من الحمض النووي تحتوي على جميع التسلسلات المتداخلة بين مقاطع التشفير المعروفة باسم مفصل الإشارة (على الرغم من كونها دائرية بطبيعتها، لا ينبغي الخلط بين هذا وبين البلازميد).بينما كان يُعتقد في الأصل أنه ضاع خلال الانقسامات الخلوية المتتالية، إلا أن هناك دليلًا على أن مفاصل الإشارة قد تدخل مرة أخرى في الجينوم وتؤدي إلى أمراض عن طريق تنشيط الجينات الورمية أو مقاطعة وظيفة الجين الكابت للورم.
كذلك، تؤدي كل أحداث المعالجة هذه إلى منطقة ارتباط بمولد الضد شديدة التباين، حتى عند إعادة تجميع نفس المقاطع الجينية.يسمح إعادة التركيب V (D) J بتوليد الغلوبولين المناعي ومستقبلات الخلايا التائية لمولدات المضادات التي لا يحتاج الكائن الحي ولا سلفه (أسلافه) إلى مواجهتها سابقًا، مما يسمح باستجابة مناعية تكيفية لمسببات الأمراض الجديدة التي تتطور أو تلك التي تتطور بشكل متكرر. التغيير (مثل الأنفلونزا الموسمية).ومع ذلك، فإن التحذير الرئيسي لهذه العملية هو أن تسلسل الحمض النووي يجب أن يظل في الإطار من أجل الحفاظ على تسلسل الأحماض الأمينية الصحيحة في منتج البروتين النهائي.إذا كان التسلسل الناتج خارج الإطار، فسيتم إيقاف تطور الخلية، ولن تستمر الخلية حتى النضج.لذلك فإن إعادة التركيب V (D) J هي عملية مكلفة للغاية ويجب أن تخضع (وهي) لتنظيم ومراقبة صارمة.
علاوةً على ذلك، فيما بعد، يقوم XRCC4 وسيرنوسيس و DNA-PK بمحاذاة نهايات الحمض النووي وتجنيد ديوكسينوكليوتيديل ترانسفيراز (TdT)، وهو بوليميريز DNA مستقل عن القالب يضيف نيوكليوتيدات غير مقولبة (N) إلى نهاية الترميز.تكون الإضافة عشوائية في الغالب، لكن TdT يُظهر تفضيلًا لنيوكليوتيدات G / C.كما هو الحال مع جميع بوليمرات الحمض النووي المعروفة، يضيف TdT النيوكليوتيدات إلى حبل واحد في اتجاه 5 'إلى 3'.
كذلك، أخيرًا، يمكن للنوكليازات الخارجية إزالة القواعد من نهايات التشفير (بما في ذلك أي نيوكليوتيدات P أو N قد تكون قد تكونت).تقوم بوليميرات الحمض النووي λ وμ بإدخال نيوكليوتيدات إضافية حسب الحاجة لجعل الطرفين متوافقين للانضمام.هذه عملية عشوائية، لذلك يمكن أن يحدث أي مزيج من إضافة نيوكليوتيدات P و N وإزالة الحالة الخارجية (أو لا يحدث أي شيء على الإطلاق).أخيرًا، يتم ربط نهايات التشفير المعالجة معًا بواسطة DNA ligase IV.
- انظر كذلك
- خلية تائية
- ثنائي الغليسريد
- رابط لتفعيل الخلايا التائية
- معزز التنشيط القائم على التيروزين المناعي
- خلية بائية
- خلية تائية غير بالغة
- خلية بائية غير بالغة
- غلوبيلوين
- مستضد
- الأضداد وحيدة النسيلة
- مستوقع
وعلى صعيد آخر، يبدأ إعادة التركيب V (D) J عندما يربط V (D) J ريكومبيناز (RAG1 من خلال نشاط) RSS الذي يحيط بمقطع جين الترميز (V أو D أو J) وينشئ شقًا أحادي السلسلة في الحمض النووي بين الأول قاعدة RSS (قبل هبتامير مباشرة) وقطاع الترميز.هذا محايد بشكل أساسي (لا حاجة للتحلل المائي ATP) وينتج عنه تكوين مجموعة هيدروكسيل حرة 3 'ومجموعة 5' فوسفات على نفس الخيط.يتم وضع مجموعة الهيدروكسيل التفاعلية بواسطة ريكومبيناز لمهاجمة رابطة فوسفات ثنائي الاستر من الخيط المعاكس، وتشكيل طرفي DNA: دبوس شعر (حلقة جذعية) على مقطع الترميز ونهاية حادة على قطعة الإشارة.النموذج الحالي هو أن خدش الحمض النووي وتكوين دبوس الشعر يحدث على كلا الخيطين في وقت واحد (أو على وجه التقريب) في مجمع يُعرف باسم مركز إعادة التركيب.
سلسلة ثقيلة
وفي هذا الصدد، في الخلية البائية النامية، يكون حدث إعادة التركيب الأول بين جزء واحد من الجين D و J من موضع السلسلة الثقيلة.يتم حذف أي DNA بين هذين الجزأين الجينيين.يتبع إعادة التركيب D-J هذا انضمام جزء واحد من الجين V ، من منطقة المنبع لمجمع DJ الذي تم تشكيله حديثا، مما يشكل مقطعا جينيا معاد تركيبه VDJ.يتم الآن حذف جميع أجزاء الجينات الأخرى بين مقاطع V و D من جينوم الخلية.يتم إنشاء النسخة الأولية (الحمض النووي الريبي غير المقسم) تحتوي على منطقة VDJ من السلسلة الثقيلة وكلا من سلاسل مو ودلتا الثابتة (C μ و Cδ).(مثلًا، يحتوي النص الأساسي على المقاطع: V-D-J-Cμ-Cδ).تتم معالجة RNA الأساسي لإضافة ذيل متعدد الأدينيلات (poly-A) بعد سلسلة C ولإزالة التسلسل بين مقطع VDJ وهذا الجزء الجيني الثابت.تؤدي ترجمة هذا الرنا المرسال إلى إنتاج بروتين IgM ثقيل السلسلة.
الإنزيمات والمكونات الرئيسية
في هذا الإطار، تتم عملية إعادة التركيب V (D) J بواسطة VDJ ريكومبيناز، وهي مجموعة متنوعة من الإنزيمات.الإنزيمات الرئيسية المعنية هي إعادة التركيب الجيني المنشط 1 و 2 (RAG)، وناقل ديوكسينوكليوتيديل الطرفي (TdT)، وارتميس نوكلياز، وهو عضو في مسار الانضمام غير المتماثل موجود في كل مكان (NHEJ) لإصلاح الحمض النووي.من المعروف أن الكثير من الإنزيمات الأخرى تشارك في العملية وتشمل بروتين كيناز المعتمد على الحمض النووي (DNA-PK)، والبروتين التكميلي 4 (XRCC4) لإصلاح الأشعة السينية، و DNA ligase IV ، وعامل الانضمام غير المتماثل 1 (NHEJ1)؛ المعروف كذلك باسم سرنونوس أو بارالوغ [XLF] مثل عامل XRCC-4، المكتشف مؤخرًا لـ XRCC4 و (XLF (PAXX ، وبوليميرات الحمض النووي λ وμ.بعض الإنزيمات المعنية خاصة بالخلايا الليمفاوية (مثلًا، RAG ، TdT)، بينما يوجد البعض الآخر في أنواع الخلايا الأخرى وحتى في كل مكان (مثلًا، مكونات NHEJ).
وعلى صعيد آخر، للحفاظ على خصوصية إعادة التركيب، يتعرف V (D) J ريكومبيناز على تسلسل إشارة إعادة التركيب (RSSs) الذي يحيط بالمتغير (V) والتنوع (D) والانضمام إلى (J) مقاطع الجينات.تتكون RSS من ثلاثة عناصر: هيبتامر من سبعة نيوكليوتيدات محفوظة، ومنطقة مباعدة من 12 أو 23 زوجًا قاعديًا في الطول، ونونامير من تسعة نيوكليوتيدات محفوظة.في حين أن غالبية RSSs تختلف في التسلسل، فإن متواليات هيبتامير ونونامير المتفق عليها هي CACAGTG و ACAAAAACC ، على التوالي؛ وعلى الرغم من عدم حفظ تسلسل منطقة المباعد بشكل جيد، إلا أن الطول محفوظ بدرجة عالية.يتوافق طول منطقة المباعد مع واحد على وجه التقريب (12 زوجًا أساسيًا) أو منعطفين (23 زوجًا أساسيًا) من حلزون الحمض النووي.باتباع ما يعرف بقاعدة 12/23، عادة ما تكون المقاطع الجينية التي سيتم إعادة تجميعها مجاورة لـ RSSs ذات أطوال مباعدة مختلفة (مثلًا، يحتوي أحدهما على "12RSS" والآخر به "23RSS").هذه ميزة مهمة في تنظيم إعادة التركيب V (D) J.
مستقبل الخلية التائية
من جانب آخر، أثناء تطور الخلايا التوتية، تخضع سلاسل مستقبلات الخلايا التائية (TCR) بشكل أساسي لنفس تسلسل أحداث إعادة التركيب المطلوبة كما هو موصوف بالنسبة للجلوبيولينات المناعية. تحدث إعادة التركيب من D إلى J أولاً في سلسلة-بيتا من TCR.يمكن أن تتضمن هذه العملية إما انضمام مقطع الجين Dβ1 إلى واحد من ستة مقاطع Jβ1 أو انضمام جزء الجين Dβ2 إلى واحد من ستة مقاطع Jβ2.يتبع إعادة تركيب DJ (على النحو الوارد أعلاه) مع إعادة ترتيب Vβ-إلى-DβJβ.يتم حذف جميع أجزاء الجينات بين مقاطع الجين Vβ-Dβ-Jβ في المجمع المُشكل حديثًا ويتم تصنيع النسخة الأولية التي تتضمن جين المجال الثابت (Vβ-Dβ-Jβ-كربون ألفا).يقوم نسخ mRNA بتقسيم أي تسلسل متداخل ويسمح بترجمة البروتين كامل الطول لسلسلة TCR β.
علاوةً على ذلك، يتبع إعادة ترتيب سلسلة ألفا (α) من TCR إعادة ترتيب السلسلة-بيتا، ويشبه إعادة ترتيب V إلى J الموصوف لسلاسل Ig الخفيفة (انظر أعلاه).ينتج عن تجميع السلاسل β- و α- تكوين αβ-TCR الذي يتم التعبير عنه في غالبية الخلايا التائية.
الآلية
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟