تشيب-إكسو
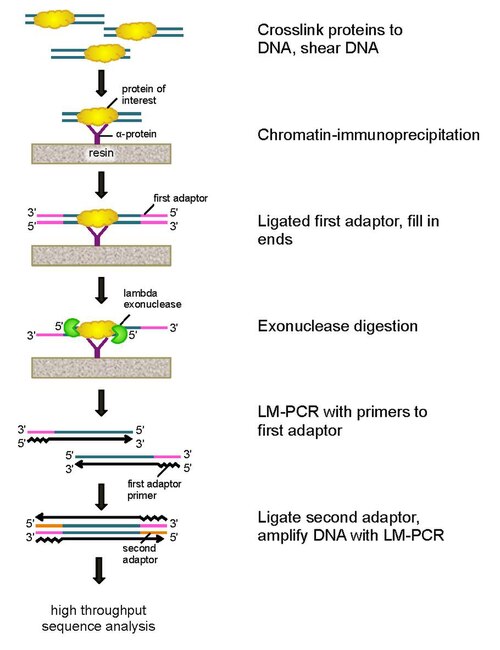
سير عمل رقاقة- EXO:
وفي هذا السياق، إن تشيب-اكسو هي طريقة تعتمد على الهيموغلوبين المناعي للكروماتين لرسم خرائط المواقع التي يرتبط فيها بروتين مهم (عامل النسخ) بالجينوم.
وفي هذا الصدد، يتم تحديد النيوكليوتيدات من النهايات المعالجة بالخلايا الخارجية باستخدام مزيج من تسلسل الحمض النووي والمصفوفات الدقيقة و PCR. ثم يتم تعيين هذه التسلسلات للجينوم لتحديد المواقع على الجينوم الذي يرتبط فيه البروتين.
كذلك، إنه تعديل لبروتوكول ChIP-seq ، مما يحسن دقة مواقع الربط من مئات أزواج القواعد إلى زوج أساسي واحد على وجه التقريب.
من جهة ثانية، وهي تستعمل استخدام نوكليازات خارجية لتحلل خيوط الحمض النووي المرتبط بالبروتين في اتجاه 5'-3 'إلى عدد صغير من النيوكليوتيدات في موقع ربط البروتين.
النظرية
من جهة ثانية، تم استخدام تقنيات Chromatin Immunoprec هطول (ChIP) منذ عام 1984, للكشف عن تفاعلات البروتين والحمض النووي.
إضافةً إلى ذلك، كانت هناك الكثير من الاختلافات في ChIP لتحسين جودة النتائج. أحد هذه التحسينات ، ChIP-on-chip.
علاوةً على ذلك، (ChIP-chip) يجمع بين ChIP وتكنولوجيا microarray. هذه التقنية لها حساسية وخصوصية محدودة ، خاصة في الجسم الحي حيث تكون المصفوفات الدقيقة مقيدة بآلاف البروتينات الموجودة في الحجرة النووية ، مما يؤدي إلى ارتفاع معدل الإيجابيات الخاطئة.
التطبيقات
وعلى صعيد آخر، غالبًا ما تم العثور على مواقع Reb1 في العناقيد وكان لهذه المجموعات إشغالًا أعلى بعشر مرات مما كان متوقعًا. تم العثور على مواقع ثانوية في مجموعات ~ 40 نقطة أساس من موقع ربط أساسي. أظهرت الزخارف الملزمة لـ Gal4 تفضيلًا قويًا لثلاثة من النيوكليوتيدات الأربعة ، مما يشير إلى تفاعل سلبي بين Gal4 والنوكليوتيدات المستبعدة. يدرك Phd1 ثلاثة أشكال مختلفة تشرح التقارير السابقة عن غموض فكرة الربط لـ Phd1. تم العثور على Rap1 للتعرف على أربعة أشكال.
وعلى صعيد آخر، تميل جينات البروتين الريبوزومي المرتبطة بهذا البروتين إلى استخدام عزر معين بتسلسل إجماع أقوى. غالبًا ما استعملت جينات أخرى مجموعات من زخارف إجماع أضعف ، ربما لتحقيق شغل مماثل. استعملت الأشكال الملزمة من CTCF أربع "وحدات". استعمل نصف مواقع CTCF المقيدة الوحدات 1 و 2 ، بينما استعمل الباقي مزيجًا من الأربعة. ويعتقد أن CTCF تستعمل أصابع الزنك للتعرف على مجموعات مختلفة من هذه الوحدات.
name="Rhee"
إضافةً إلى ذلك، قام كل من Rhee و Pugh بتحليل هيكل وتنظيم مركب ما قبل البدء (PIC) في جينومات Saccharomyces. باستخدام ChIP-exo ، تمكنوا ، من بين اكتشافات أخرى ، من تحديد الميزات الشبيهة بـ TATA بدقة في المروجين الذين تم الإبلاغ عن أنهم أقل من TATA.
ومن جهة أخرى، يقدم Rhee و Pugh ChIP-exo من خلال إجراء تحليلات على مجموعة صغيرة من عوامل النسخ: Reb1 و Gal4 و Phd1 و Rap1 في الخميرة و CTCF في الإنسان.
انظر كذلك
المزايا
ومن ناحية أخرى، نظرًا لوجود دقة أعلى وخلفية أقل ، هناك حاجة إلى عمق أقل للتسلسل عند استخدام ChIP-exo.
ومن ناحية أخرى، يمكن أن يؤدي تلوث أجزاء الحمض النووي غير المرتبطة بالبروتين إلى معدل مرتفع من الإيجابيات والسلبيات الكاذبة في تجارب رقاقة. لا تؤدي إضافة الإينوكليازات إلى العملية إلى تحسين دقة استدعاء موقع الارتباط فحسب ، بل تزيل تلوث DNA من المحلول قبل التسلسل.
من جانب آخر، لقد ثبت أن ChIP-exo يتخلى عن حل زوجي أساسي واحد في تحديد مواقع ربط البروتين. هذا على النقيض من ChIP-seq الذي يمكنه تحديد موقع ارتباط البروتين فقط بـ ± 300 زوج أساسي
من جانب آخر، من المرجح أن يتم الكشف عن البروتينات المرتبطة بشكل غير فعال بشظية النيوكليوتيد بواسطة ChIP-exo. وقد سمح ذلك ، مثلًا ، بالتعرف على المزيد من مواقع ربط عامل النسخ CTCF مما تم اكتشافه سابقًا.
بعد ذلك جاء تسلسل ChIP
إضافةً إلى ذلك، ثم يفرز نوكلياز لامدا من خيوط الحمض النووي المزدوج من نهاية ′5 حتى يتم حظر الهضم عند حدود التفاعل التساهمي بين البروتين والحمض النووي.
ومن ناحية أخرى، تعتمد تقنية ChIP الجديدة على نوكلياز لامدا الذي يتحلل فقط ، وجميع ، حمض نووي ريبوزي منقوص الأكسجين غير المحصور المزدوج المجدول في اتجاه 5′-3.
ومن جهة أخرى، باختصار ، يتم ربط بروتين مهم (هندسة برمز epitope يمكن أن يكون مفيدًا للتساقط المناعي) في الجسم الحي إلى مواقع الارتباط الطبيعية عبر الجينوم باستخدام الفورمالديهايد. يتم فيما بعد جمع الخلايا وفتحها وتقطيع الكروماتين وإذابته بواسطة الصوتنة.
علاوةً على ذلك، يتحلل أغلب الحمض النووي الملوث عن طريق إضافة نوكلياز خارجي أحادي السلسلة. بعد عكس الارتباط المتبادل ، يتم تمديد البادئات إلى محولات PCR لتشكيل DNA مزدوج مجدولة ، ويتم ربط المحول الثاني حتى 5 ′ لترسيم الموقع الدقيق لوقف الهضم الخارجي.
في هذا الإطار، ومع ذلك ، فإن الطبيعة غير المتجانسة لأجزاء الحمض النووي المنفصمة تُعيِّن مواقع الربط ضمن ± 300 زوج أساسي ، مما يحد من الخصوصية. ثانيًا ، يمثل تلوث الحمض النووي مشكلة خطيرة نظرًا لقلة عدد المواقع الوراثية المرتبطة بالبروتين المعني ، مما يجعل أي DNA جينومي غير محدد مصدرًا مهمًا للضوضاء في الخلفية.
من جانب آخر، لمعالجة هذه المشاكل ، قام كل من Rhee و Pugh بمراجعة فحص حماية nuclease الكلاسيكي لتطوير ChIP-exo.
إضافةً إلى ذلك، ثم يتم تضخيم المكتبة بواسطة PCR ، ويتم تحديد المنتجات عن طريق تسلسل الإنتاجية العالية. تسمح هذه الطريقة بدقة تصل إلى زوج أساسي واحد لأي موقع ربط بروتين داخل أي جينوم ، وهو دقة أعلى بكثير من إما رقاقة ChIP أو C⅝hIP-seq.
من جهة ثانية، يتم لاحقًا استخدام الجسم المضاد لاستئصال البروتين المناعي ، جنبًا إلى جنب مع DNA المتشابك. ثم يتم ربط محولات DNA PCR إلى النهايات ، والتي تعمل كنقطة تحضير لتوليف DNA للحبل الثاني بعد عملية الهضم النوكليزي.
(ChIP-seq) ، الذي يجمع بين ChIP والتسلسل عالي الإنتاجية.
المحددات
كذلك، إذا كان مركب البروتين DNA يحتوي على مواقع متعددة للربط المتبادل داخل حدث ربط واحد ، فيمكن أن يظهر كما لو كان هناك الكثير من أحداث الربط المميزة. ينتج هذا على الأرجح عن تشويه هذه البروتينات وربطها المتبادل في أحد مواقع الربط المتاحة في نفس الحدث. ثم يتوقف الإينوكلياز عند أحد المواقع المرتبطة ، اعتمادًا على الموقع الذي يرتبط فيه البروتين بالتبادل.
ومن ناحية أخرى، كما هو الحال مع أي طريقة قائمة على رقاقة ، يجب أن يكون الجسم المضاد المناسب للبروتين موضع الاهتمام متاحًا لاستخدام هذه التقنية.
المحددات
وفي هذا الصدد، كما هو الحال مع أي طريقة قائمة على رقاقة ، يجب أن يكون الجسم المضاد المناسب للبروتين موضع الاهتمام متاحًا لاستخدام هذه التقنية.
من جانب آخر، إذا كان مركب البروتين DNA يحتوي على مواقع متعددة للربط المتبادل داخل حدث ربط واحد ، فيمكن أن يظهر كما لو كان هناك الكثير من أحداث الربط المميزة. ينتج هذا على الأرجح عن تشويه هذه البروتينات وربطها المتبادل في أحد مواقع الربط المتاحة في نفس الحدث. ثم يتوقف الإينوكلياز عند أحد المواقع المرتبطة ، اعتمادًا على الموقع الذي يرتبط فيه البروتين بالتبادلname="ChIP-exo patent"
التطبيقات
وفي هذا الصدد، غالبًا ما تم العثور على مواقع Reb1 في العناقيد وكان لهذه المجموعات إشغالًا أعلى بعشر مرات مما كان متوقعًا. تم العثور على مواقع ثانوية في مجموعات ~ 40 نقطة أساس من موقع ربط أساسي. أظهرت الزخارف الملزمة لـ Gal4 تفضيلًا قويًا لثلاثة من النيوكليوتيدات الأربعة ، مما يشير إلى تفاعل سلبي بين Gal4 والنوكليوتيدات المستبعدة. يدرك Phd1 ثلاثة أشكال مختلفة تشرح التقارير السابقة عن غموض فكرة الربط لـ Phd1. تم العثور على Rap1 للتعرف على أربعة أشكال.
ومن جهة أخرى، تميل جينات البروتين الريبوزومي المرتبطة بهذا البروتين إلى استخدام عزر معين بتسلسل إجماع أقوى. غالبًا ما استعملت جينات أخرى مجموعات من زخارف إجماع أضعف ، ربما لتحقيق شغل مماثل. استعملت الأشكال الملزمة من CTCF أربع «وحدات». استعمل نصف مواقع CTCF المقيدة الوحدات 1 و 2 ، بينما استعمل الباقي مزيجًا من الأربعة. ويعتقد أن CTCF تستعمل أصابع الزنك للتعرف على مجموعات مختلفة من هذه الوحدات.name="Rhee"
وفي هذا السياق، قام كل من Rhee و Pugh بتحليل هيكل وتنظيم مركب ما قبل البدء (PIC) في جينومات Saccharomyces. باستخدام ChIP-exo ، تمكنوا ، من بين اكتشافات أخرى ، من تحديد الميزات الشبيهة بـ TATA بدقة في المروجين الذين تم الإبلاغ عن أنهم أقل من TATA.
وعلى صعيد آخر، يقدم Rhee و Pugh ChIP-exo من خلال إجراء تحليلات على مجموعة صغيرة من عوامل النسخ: Reb1 و Gal4 و Phd1 و Rap1 في الخميرة و CTCF في الإنسان.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟