تعديل ما فوق الجينوم
المحتويات
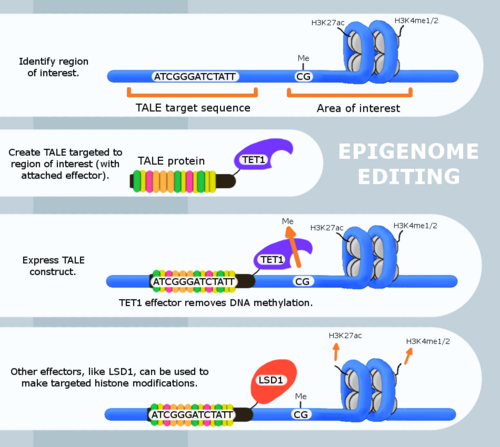
تعريفًا بالموضوع، تُعدّ هندسة ما فوق الجينوم أو تعديل ما فوق الجينوم نوعًا من الهندسة الوراثية، حيث يتم تعديل ما فوق الجينوم في مواقع محددة باستخدام جزيئات مُهندسة تستهدف تلك المواقع (بدلاً من تعديل الجينوم بأكمله). فبينما ينطوي تعديل الجينات على تغيير تسلسل الحمض النووي نفسه، يتضمن تعديل ما فوق الجينوم تعديل تسلسلات الحمض النووي وعرضها على البروتينات وعوامل ربط الحمض النووي الأخرى التي تؤثر على وظيفة الحمض النووي. ومن خلال "تعديل" خصائص الإبيجينوم بهذه الطريقة، يستطيع الباحثون تحديد الدور البيولوجي الدقيق للتعديل الفوق جينومي في الموقع المعني. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
علاوةً على ذلك، تتكون البروتينات المُهندسة المستعملة في تعديل الإبيجينوم من نطاق ارتباط بالحمض النووي يستهدف تسلسلات محددة، ونطاق مُؤثر يُعدِّل خصائص الإبيجينوم. في الوقت الحالي، تُستعمل ثلاث مجموعات رئيسية من بروتينات الارتباط بالحمض النووي بشكل أساسي في تعديل الإبيجينوم: بروتينات أصابع الزنك، والمؤثرات الشبيهة بمنشطات النسخ (TALEs)، وبروتينات Cas9 المُفتقرة للنيوكلياز (CRISPR).
المفهوم العام
البروتينات المستهدفة
وفي هذا الصدد، أتاحت مقارنة الخرائط فوق الجينية على مستوى الجينوم مع التعبير الجيني للباحثين تحديد أدوار تنشيطية أو تثبيطية لتعديلات محددة. وقد تم إثبات أهمية تسلسل الحمض النووي في تنظيم الجينوم فوق الجيني باستخدام أنماط الحمض النووي للتنبؤ بالتعديلات فوق الجينية. وقد أتت رؤى أعمق حول آليات علم فوق الجينات من خلال التحليلات الكيميائية الحيوية والبنيوية في المختبر. وباستخدام الكائنات النموذجية، تمكن الباحثون من وصف دور الكثير من عوامل الكروماتين من خلال دراسات تعطيل الجينات. ومع ذلك، فإن تعطيل مُعدِّل كروماتين كامل له تأثيرات هائلة على الجينوم بأكمله، وهو ما قد لا يُمثل بدقة وظيفته في سياق محدد. كمثال على ذلك، يحدث مثيلة الحمض النووي في المناطق المتكررة، والمحفزات، والمعززات، وأجسام الجينات. على الرغم من أن مثيلة الحمض النووي في محفزات الجينات ترتبط عادةً بتثبيط الجينات، إلا أن المثيلة في أجسام الجينات ترتبط بتنشيط الجينات، وقد تلعب مثيلة الحمض النووي كذلك دورًا في عملية تضفير الجينات. تُعدّ القدرة على استهداف مواقع مثيلة الحمض النووي وتعديلها بشكل مباشر أمرًا بالغ الأهمية لتحديد الوظيفة الدقيقة لمثيلة الحمض النووي في موقع مُحدد. ويُعتبر تعديل الإبيجينوم أداةً فعّالة تُتيح هذا النوع من التحليل. ولتعديل مثيلة الحمض النووي في مواقع مُحددة، وكذلك لتعديل الهيستونات، تمّ تكييف أنظمة تعديل الجينوم لتصبح أنظمة تعديل إبيجين. باختصار، يُمكن تحوير بروتينات توجيه الجينوم، ذات وظائف النيوكلياز المُهندسة أو الطبيعية لتعديل الجينات، وتكييفها لتصبح أنظمة توصيل بحتة. يُمكن دمج إنزيم أو نطاق مُعدِّل إبيجينيّ مع بروتين التوجيه، ويُمكن تغيير التعديلات الإبيجينية الموضعية عند استقطاب البروتين. واستثناءً لمثيلة الحمض النووي، قد يكون نطاق التوجيه نفسه كافيًا للتدخل في العمليات الإبيجينية الطبيعية، مما يؤدي إلى تعديل إبيجينيّ مُستهدف.
تحديد دور التعديلات اللاجينية بشكل مباشر
من جانب آخر، يُتيح التعديل فوق الجيني باستخدام آلية قابلة للتحفيز مجموعة واسعة من الاستخدامات المحتملة لدراسة التأثيرات فوق الجينية في مختلف الحالات. وقد استعمل أحد فرق البحث نظامًا ثنائيًا هجينًا ضوئيًا يدمج نطاق ربط الحمض النووي TALE المحدد بالتسلسل مع بروتين كريبتوكروم 2 الحساس للضوء ( CIB1 ). وبمجرد التعبير عنه في الخلايا، أصبح النظام قادرًا على تعديل تعديلات الهيستون بشكل قابل للتحفيز وتحديد وظيفتها في سياق محدد.
تحديد وظيفة مواقع المثيلة المحددة
وفي هذا السياق، من المهم فهم دور مواقع المثيلة المحددة في تنظيم التعبير الجيني. ولدراسة ذلك، استعمل فريق بحثي بروتينًا اندماجيًا من نوع TALE-TET1 لإزالة مثيلة موقع مثيلة CpG واحد. على الرغم من أن هذا النهج يتطلب الكثير من الضوابط لضمان الارتباط المحدد بالمواقع المستهدفة، إلا أن دراسة مُنفذة بشكل صحيح باستخدام هذا النهج يمكن أن تحدد الوظيفة البيولوجية لموقع مثيلة CpG محدد.
الهندسة الوظيفية
علاوةً على ذلك، قد يُتيح التنظيم المُوجَّه للجينات المرتبطة بالأمراض علاجاتٍ جديدةً للعديد من الأمراض، لا سيما في الحالات التي لم تُطوَّر فيها علاجات جينية مناسبة أو كانت غير ملائمة. ورغم أن العواقب عبر الأجيال وعلى مستوى السكان غير مفهومة تمامًا، إلا أنه قد يُصبح أداةً رئيسيةً لعلم الجينوم الوظيفي التطبيقي والطب الشخصي. وكما هو الحال مع تعديل الحمض النووي الريبوزي (RNA)، فإنه لا ينطوي على تغييرات جينية وما يصاحبها من مخاطر. وقد وُصِفَ مثالٌ على الاستخدام الوظيفي المُحتمل لتعديل الإبيجينوم في سنة 2021: تثبيط التعبير الجيني لـ Nav 1.7 عبر تقنية CRISPR-dCas9، والذي أظهر إمكانات علاجية في ثلاثة نماذج من الفئران المصابة بالألم المزمن.
في هذا الإطار، في عام 2022، قيّمت الأبحاث فائدته في خفض مستويات بروتين تاو، وتنظيم بروتين متورط في مرض هنتنغتون، واستهداف شكل وراثي من السمنة، ومتلازمة درافيت.
القيود
وفي هذا الصدد، تُعدّ خصوصية التسلسل بالغة الأهمية في تعديل الإبيجينوم، ويجب التحقق منها بدقة (يمكن القيام بذلك باستخدام ترسيب الكروماتين المناعي متبوعًا بتسلسل سانجر للتحقق من التسلسل المستهدف). من غير المعروف ما إذا كان اندماج TALE قد يؤثر على النشاط التحفيزي لمعدِّل الإبيجينوم. قد يكون هذا الأمر بالغ الأهمية، خاصةً في البروتينات المؤثرة التي تتطلب وحدات فرعية ومجمعات متعددة، مثل مُركَّب Polycomb الكابت. قد تعيق البروتينات المستعملة في تعديل الإبيجينوم كذلك الروابط والركائز في الموقع المستهدف. قد يتنافس بروتين TALE نفسه مع عوامل النسخ إذا استُهدفت جميعها لنفس التسلسل. فضلًا عن ذلك، قد تُعكس أنظمة إصلاح الحمض النووي التغييرات التي طرأت على الكروماتين وتمنع حدوث التغييرات المطلوبة. أخيرًا، عادةً ما تكون الإنزيمات المدمجة مع dCas9 قادرة على العمل بشكل مستقل عن بروتين dCas9 المدمج بها. عندما تُفرط الخلايا في التعبير عن هذه الاندماجات، تميل هذه الإنزيمات إلى تعديل مساحات واسعة من الجينوم، مما يُشكل نشاطًا خارج الهدف بشكلٍ ملحوظ. لذلك، من الضروري تحسين تركيبات الاندماج وآليات الاستهداف لضمان تحرير جينومي موثوق وقابل للتكرار.
- انظر كذلك
- تحرير الحمض النووي
- تحرير الحمض النووي الريبي
كريسبر-كاس
ومن ناحية أخرى، CRISPRoff هو بروتين اندماجي معطل من Cas9، يمكن استخدامه لكتم التعبير الجيني لـ "أغلب الجينات" بشكل وراثي، ويسمح بإجراء تعديلات قابلة للعكس.
وفي السياق ذاته، يسمح أحد المتغيرات في تقنية تحرير الإبيجينوم CRISPR (يُسمى FIRE-Cas9) بعكس التغييرات التي تم إجراؤها، في حال حدوث خطأ ما.
كذلك، يعمل نظام CRISPR-Cas كإنزيم نوكلياز مُوجِّه لمواقع محددة في الحمض النووي. في نظام CRISPR من النوع الثاني، الذي دُرِسَ جيدًا، يرتبط إنزيم Cas9 النووي بجزيء هجين مُكوَّن من tracrRNA و crRNA. يُشار إلى هذا الجزيء الهجين عادةً باسم الحمض النووي الريبوزي الدليل (gRNA). عندما يرتبط بروتين Cas9 بـ gRNA مُوجِّه لمنطقة محددة في الحمض النووي، يقوم Cas9 بقطع الحمض النووي في المواقع المستهدفة. مع ذلك، عند إدخال الطفرات النقطية D10A و H840A، يتولد إنزيم Cas9 غير نشط تحفيزيًا (dCas9) قادر على الارتباط بالحمض النووي ولكنه غير قادر على قطعه. استُخدم نظام dCas9 لإعادة البرمجة اللاجينية المُوجَّهة بهدف إدخال مثيلة الحمض النووي في مواقع محددة. من خلال دمج النطاق التحفيزي لإنزيم DNMT3a مع بروتين dCas9، يصبح مركب dCas9-DNMT3a قادرًا على تحقيق مثيلة الحمض النووي المستهدفة لمنطقة محددة بواسطة الحمض النووي الريبوزي الدليل الحالي. وبالمثل، تم دمج dCas9 مع النواة التحفيزية لإنزيم أسيتيل ترانسفيراز البشري p300. ويحفز مركب dCas9-p300 بنجاح عملية الأسيتلة المستهدفة لليسين 27 في الهيستون H3. وبدلاً من ذلك، يكفي بروتين dCas9 وحده للتدخل فعليًا في العمليات الطبيعية التي تحافظ على مثيلة الحمض النووي في الموقع المستهدف في الخلايا المنقسمة؛ مما يؤدي إلى إزالة مثيلة الحمض النووي المستهدفة. تتمثل الفائدة الرئيسية لهذا النهج في أنه خالٍ من الإنزيمات المعدلة للجينات، والتي قد تؤثر على العلامات الجينية على مسافات كبيرة وتعمل بشكل مستقل في جميع أنحاء الجينوم على الرغم من ارتباطها ببروتين dCas9 المستهدف، مما يؤدي غالبًا إلى آثار جانبية واسعة النطاق.
البروتينات المؤثرة شائعة الاستخدام
التطبيقات
إضافةً إلى ذلك، يحفز إنزيم TET1 إزالة مثيلة السيتوزين في مواقع CpG. وقد استُخدم هذا البروتين لتنشيط الجينات المُثبَّطة بواسطة مثيلة CpG، ولتحديد دور مواقع مثيلة CpG الفردية. من الشائع الاعتقاد بأن إزالة المثيلة المُوجَّهة تُحقق عادةً بشكل أفضل باستخدام dCas9 وحده (عن طريق التدخل المُوجَّه في آلية مثيلة الحمض النووي الطبيعية)، حيث أن إدخال dCas9-TET إلى الخلايا يؤدي إلى نشاط واسع النطاق خارج الهدف لإنزيم TET المُفرط التعبير. يحفز إنزيم LSD1 إزالة مثيلة H3K4me1 /2، مما يُسبب كذلك تأثيرًا غير مباشر لإزالة الأسيتيل من H3K27. يمكن استخدام هذا المُؤثِّر على الهيستونات في مناطق المُعزِّز، مما قد يُغيِّر من تعبير الجينات المُجاورة. CIB1 هو كريبتوكروم حساس للضوء، وهو مُدمج مع بروتين TALE. يحتوي بروتين ثانٍ على شريك تفاعل ( CRY2 ) مُدمج مع مُعدِّل للكروماتين /الحمض النووي (مثل SID4X ). يستطيع CRY2 التفاعل مع CIB1 عند تنشيط الكريبتوكروم بواسطة الإضاءة بالضوء الأزرق. يسمح هذا التفاعل لمُعدِّل الكروماتين بالعمل على الموقع المطلوب. وهذا يعني إمكانية إجراء التعديل بطريقة قابلة للتحفيز والعكس، مما يقلل من الآثار الجانبية طويلة الأمد التي قد تنجم عن التعديل اللاجيني التكويني.
دراسة وظيفة ونشاط المُحسِّن
وفي السياق ذاته، أظهرت دراسة مندنهال وآخرون (2013) إمكانية تعديل مناطق مُحسِّنات الجينات في الجينوم من خلال التعديل اللاجيني المُوجَّه. استعملت هذه الدراسة بروتينًا مُدمجًا من نوع TALE-LSD1 لاستهداف مُحسِّنات الجينات، بهدف إسكات هذه المُحسِّنات واستنتاج نشاطها والتحكم في الجينات. يسمح استهداف مُحسِّنات مُحدَّدة، متبوعًا بتقنية RT-qPCR المُحدَّدة للموقع، بتحديد الجينات المُتأثرة بالمُحسِّن المُسكت. بدلاً من ذلك، يسمح إسكات المُحسِّنات في المناطق الواقعة قبل الجينات بتغيير التعبير الجيني. يُمكن فيما بعد استخدام تقنية RT-qPCR لدراسة تأثير ذلك على التعبير الجيني. يُتيح هذا دراسة وظيفة المُحسِّن ونشاطه بالتفصيل.
TALE
وعلى صعيد آخر، يتعرف بروتين TALE (المؤثر الشبيه بمنشط النسخ) على تسلسلات DNA محددة بناءً على تركيب نطاق ارتباطه بالحمض النووي. وهذا يسمح للباحث ببناء بروتينات TALE مختلفة للتعرف على تسلسل DNA مستهدف عن طريق تعديل البنية البروتينية الأساسية لبروتين TALE. ثم يتم عادةً تأكيد خصوصية ارتباط هذا البروتين باستخدام تقنية الترسيب المناعي للكروماتين (ChIP) وتسلسل سانجر لقطعة DNA الناتجة. ولا يزال هذا التأكيد مطلوبًا في جميع أبحاث التعرف على تسلسل TALE. عند استخدام هذه البروتينات الرابطة للحمض النووي في تعديل الإبيجينوم، يتم ربطها ببروتين مؤثر. تشمل البروتينات المؤثرة التي تم استخدامها لهذا الغرض: إنزيم ديوكسيجيناز ميثيل سيتوزين 1 (TET1)، وإنزيم دي ميثيلاز 1A الخاص بالليسين (LSD1)، وبروتين ربط الكالسيوم والإنترغرين 1 (CIB1).
بروتينات أصابع الزنك
كذلك، تم استكشاف استخدام بروتينات اندماجية ذات أصابع زنك للتعرف على مواقع تعديل الإبيجينوم. قام مايدر وزملاؤه بتصميم بروتين ZF-TET1 لاستخدامه في إزالة مثيلة الحمض النووي. تعمل بروتينات أصابع الزنك هذه بشكل مشابه لبروتينات TALE، حيث إنها قادرة على الارتباط بمواقع محددة التسلسل على الحمض النووي بناءً على بنيتها البروتينية القابلة للتعديل. نجح تشين وزملاؤه في استخدام نطاق ربط الحمض النووي ذي أصابع الزنك المقترن ببروتين TET1 لتحفيز إزالة مثيلة الكثير من الجينات التي تم إسكاتها سابقًا. استعمل كونغولوفسكي وجيلتش بنجاح ترسيب مثيلة الحمض النووي الموجه بواسطة ZFP لإسكات الجينات، ولكن فُقدت مثيلة الحمض النووي والإسكات عند توقف إشارة التحفيز. يقترح الباحثون أنه لتحقيق تغييرات إبيجينية مستقرة، يجب أن يكون هناك إما ترسبات متعددة لمثيلة الحمض النووي لعلامات إبيجينية ذات صلة، أو محفزات طويلة الأمد. أظهر التعديل اللاجيني لبروتين الزنك إمكانية علاج الكثير من الأمراض التنكسية العصبية.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟