حجم الجسم وثراء النوع
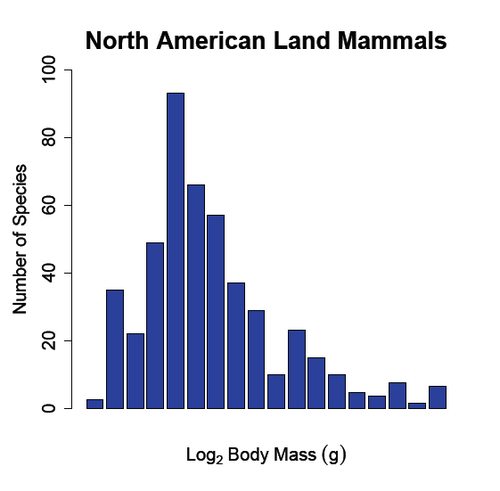
على سبيل التعريف، توزيع حجم الأجسام وثراء النوع هو نمط لوحظ في الطريقة التي تُوزع بها الأصانيف على المقاييس المكانية الكبيرة. بشكل عام، أعداد الأنواع التي تتمتع بجسم صغير تتخطى أعداد الأنواع ذات الأجسام الكبيرة بصورة كبيرة. بَحثَ علم دراسة النظم البيئية الشاسعة طويلًا لفهم الآليات التي تكمن وراء أنماط التنوع الحيوي، مثل النمط بين حجم الجسم وثراء النوع. وفيما يلي تفاصيل أوسع عن ذلك.
وفي هذا الصدد، كان هاتشينسون وماك آرثر هما أول من لاحظ هذا النمط لأول مرة (1959)، ومن الواضح أنه ينطبق بشكل جيد على مجموعة واسعة من الأصانيف: من الطيور والثدييات والحشرات والبكتيريا (مايو، 1978؛ براون ونيكوليتو، 1991) ورخويات أعماق البحار (ماكلين، 2004). ومع ذلك، يبقى انتشارها غير مؤكَد. تُركز أغلب الدراسات على توزيع الفتات التصنيفية للأنواع غير المتفاعلة إلى حدّ كبير مثل الطيور أو الثدييات؛ وهذا المقال مبني بشكل أساسي على هذه المعلومات.
استقلال مقياس النمط
من جانب آخر، شكل 2. توزيع تردد الثدييات في مقياسين مكانيين مختلفين. يظهر الشكل تحولًا من توزيع منحرف قليلًا جهة اليمين في مقياس الوحدة الأحيائية (أ) إلى توزيع احتمالي طبيعي على مستوى مجموعة الكائنات الحية (ب). يمتد المحور (س) من 0 إلى 20 على مقياس اللوغاريتم في كلا الرسمين. مُعاد رسمهما من براون ونيكوليتو (1991).
من جهة ثانية، في المقاييس المكانية الصغيرة (مثلًا إثنا عشر هكتار أو مجموعة كائنات محلية) ينحل نمط حجم الجسم وثراء الأنواع ويكون عدد الأنواع لكل فئة من أحجام الأجسام متماثلة على وجه التقريب (مما يعني أن هناك رقما متساويا من الأنواع ذات الأجسام الصغيرة والكبيرة في المجموعة (انظر رقم 2 ب)). وثق الباحثون هذا التحول عن طريق أخذ عينات للأنواع من مقاييس مكانية مختلفة؛ ففي المقاييس المكانية المتوسطة (مثلًا ألف هكتار أو وحدة أحيائية) يبدأ توزيع حجم الجسم وثراء الأنواع في التحول من الانحراف جهة اليمين (من عدد أقل للأنواع كبيرة الجسم) إلى توزيع احتمالي طبيعي. أخيرًا، عند مقارنة علماء دراسة النظم البيئية الشاسعة لتوزيع حجم الجسم وثراء الأنواع في القارات مقارنة لها في مجموعات الكائنات المحلية تختلف التوزيعات اختلافًا شاسعًا (هتشينسون وماك آرثر، 1959؛ براون ومورير، 1989؛ براون ونيكوليتو، 1991؛ باكر وكلت، 2000) (انظر الشكل 1 مقارنة شكل 2 ب).
معدلات الانتواع
وعلى صعيد آخر، تمتلك الكائنات الحية الصغيرة عمومًا زمنًا جيليًا أقصر، كما أنها سريعة البلوغ والتكاثر (ماي، 1978؛ ديني وآخرون، 2002؛ سافاج وآخرون، 2004). قد تعزز هذه السمات الانتواع عن طريق الانتقاء والطفرات المتزايدة كمقاييس التطور الجزيئي بمعدلات الأيض الأساسي (جيلولي وآخرون، 2005) وبالتالي بحجم الجسم. مثلًا، يمكن للبكتيريا أن تطور درجة مقاومة للمضادات الحيوية في فترة قصيرة جدًا. يُسهل هذا التطور الزمن الجيلي القصير وعلى نحو محتمل لن يكون ذلك ممكنًا للأنواع ذات الأعمار الأطول. وبالتالي، يمكن أن نفكر فيها بأن «الساعة التطورية تدق بشكل أسرع » (ماي، 1978) للكائنات الصغيرة. إذا كان ذلك حقيقيًا فإن الشرح البسيط لسبب وجود عدد أكبر من الأنواع الصغيرة على كوكب الأرض هو أنهم يتطورا بصورة أسرع. بالرغم من ذلك، في تحليل حديث أجراه كارديلو وزملاءه (2003) كشف أن حجم الجسم لم يؤثر في معدلات التطور في الثدييات الأسترالية. بشكل مشابه، فشلت دراسة استعملت الطيور لإثبات أن العلاقة بين حجم الأجسام والتطور هي علاقة عكسية (ني وآخرون، 1992).
أمثلة معاكسة
ومن جهة أخرى، لم تتبع جميع المجموعات الفرعية الجغرافية لمجموعات التصنيف هذا النمط الواسع، على النقيض، القواقع الأرضية بشمال غرب أوروبا تُظهر توزيعًا احتماليًا طبيعيًا (هاوسدورف، 2006). علاوةً على ذلك، فالثدييات الأرضية في جزر مدغشقر وغينيا الجديدة وأستراليا لا تُظهر الانحراف الصحيح لتوزيع حجم الجسم وثراء الأنواع (مورير وآخرون 1992). بالنظر إلى كمية المعلومات المحدودة غير المتطابقة فإنه من غير الممكن أن نحدد إذا ما كانت الظاهرة عالمية أو أنها ببساطة جديدة في بعض البيئات. قصور الإبلاغ في المجموعات الفرعية التصنيفية والجغرافية التي لا تتطابق مع النمط قد يكون مسؤولًا جزئيًا عن عدم الحسم.
مقدمة
وعلى صعيد آخر، وُثِق النمط بين حجم الجسم وثراء الأنواع للثدييات الأرضية عبر الكثير من القارات مثل أمريكا الشمالية وأمريكا الجنوبية وأوراسيا وأفريقيا (براون ومورير، 1989؛ بيكر وكيلت، 2000؛ مورير وآخرون 1992). على النحو التقليدي، فُحص النمط برسم عدد الأنواع على المحور (ص) ولوغاريتم للأساس 2 لكتلة جسم النوع (بالجرام) على المحور (س). ينتج عن ذلك توزيعا منحرفا جهة اليمين بشدة لحجم الجسم ب وضع متمركز بالقرب من الأنواع ذات الكتلة المتراوحة من 50-100 جرامًا. بالرغم من أن هذه العلاقة شديدة الوضوح في المقاييس المكانية الكبيرة، إلا أن النمط ينهار عندما تكون منطقة أخذ العينات صغيرة (هاتشينسون وماك آرثر، 1959؛ براون ومورر 1989؛ براون ونيكوليتو 1991؛ باكر وكيلت 2000)
آليات مُحتملة
وفي هذا الصدد، إذا أمكن اختيار عينة من مجموعة فرعية بشكل عشوائي من أحد تجمعات الأنواع القارية المعروفة من الثدييات، يمكن أن نتوقع أن توزيع حجم الأجسام وثراء الأنواع في هذه العينة يعكس بشكل تقريبي التوزيع للقارة كاملة. وبما أنها لا تعكس، وإذا افترضنا أن التوزيع المُلاحَظ للأنواع بين أحجام الأجسام ليس تحيزًا في اختيار العينات، فإن بعض التفاعلات البيئية لا بد وأن تتبع هذا النمط. تقترح التفسيرات البحثية أن معدلات الانتواع و/أو القدرة على الانتشار تختلف مع الحجم ويمكن أن تقود إلى المزيد من الكائنات الحية صغيرة الجسم (ماي، 1978).
معدلات الانقراض التفاضلية
وفي هذا السياق، من المتعارف عليه أن خطر الانقراض يرتبط بشكل مباشر بحجم تعداد النوع. التعدادات الصغير تميل إلى الانقراض أكثر من أصحاب التعدادات الكبرى (ماكارثر وويلسون، 1967). ولأن الأنواع الأكبر تتطلب موارد يومية أكثر فإنهم مجبرين على العيش في كثافات سكانية أقل، وبالتالي تقليل حجم التعداد في منطقة مُعينة والسماح لكل فرد بالحصول على الموارد الكافية له للبقاء. ومن أجل زيادة حجم التعداد وتجنب الانقراض، فإن الكائنات الكبيرة مُجبرة أن تمتلك نطاقات كبيرة (انظر توزع الأنواع). بالتالي، فإن انقراض الأنواع الكبيرة ذات النطاقات الصغيرة يصبح أمرًا حتميًا (مكارثر وويلسون، 1967؛ براون ومورير، 1989؛ براون ونيكوليتو، 1991). ينتج هذا عن حجم المساحة التي تحد العدد الكلي للحيوانات الكبيرة التي تستطيع التواجد في قارة، بينما حجم النطاق (وخطر الانقراض) يمنع الحيوانات الكبيرة من العيش في مساحة صغيرة. لا شك أن لهذه القيود آثار على أنماط ثراء الأنواع للكائنات ذات الجسم الصغير والكبير، لكن التفاصيل لم تُوضَح بعد.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟