حمض أميني غير مولد للبروتين
المحتويات
- النظائر السامة
- أحماض أمينية D
- 22 حمض أميني مولد للبروتين
- الأحماض الأمينية البريبايوتيك والكيمياء الحيوية البديلة
- غير ألفا
- التسمية
- الأحماض الغير أمينة
- دورها
- التعريف بالنفي
- السلسلة الجانبية المستقيمة
- أحماض أمينية مزدوجة
- دمج البروتين بعد المتعدية
- أحماض أمينية طبيعية ولكنها غير L-α
- كالكوجين
- بدون هيدروجين على α-carbon
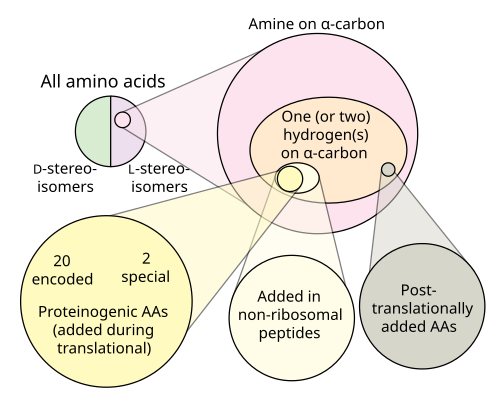
على سبيل التعريف، في الكيمياء الحيوية ، الأحماض الأمينية غير المشفرة أو غير البروتينية هي تلك الأحماض الأمينية غير المشفرة بشكل طبيعي أو الموجودة في الكود الجيني لأي كائن حي. على الرغم من استخدام 22 نوعًا من الأحماض الأمينية فقط (21 في حقيقيات النوى) من قبل الآلية الانتقالية لتجميع البروتينات ( الأحماض الأمينية البروتينية ) ، فمن المعروف أن أكثر من 140 من الأحماض الأمينية تحدث بشكل طبيعي في البروتينات وقد تحدث آلاف أخرى في الطبيعة أو يتم تصنيعها في المختبر. الكثير من الأحماض الأمينية غير البروتينية جديرة بالملاحظة لأنها كذلك ؛
وسيطة في التركيب الحيوي ،
تشكلت بعد متعدية في البروتينات ،
من جهة ثانية، موجودة في النيازك وفي تجارب البريبايوتيك (مثلًا تجربة ميلر أوري ).
مركبات دوائية طبيعية أو من صنع الإنسان ،
علاوةً على ذلك، تمتلك دورًا فسيولوجيًا (مثل مكونات جدران الخلايا البكتيرية والناقلات العصبية والسموم ) ،
النظائر السامة
كذلك، الكثير من الأحماض الأمينية غير البروتينية سامة بسبب قدرتها على محاكاة خصائص معينة للأحماض الأمينية البروتينية ، مثل الثياليسين . بعض الأحماض الأمينية غير البروتينية سامة للأعصاب عن طريق محاكاة الأحماض الأمينية المستعملة كناقلات عصبية (أي ليس للتخليق الحيوي للبروتين) ، مثلًا حمض كيسكواليك أو كانافانين أو حمض أزيتيدين -2 كربوكسيليك . يحتوي السيفالوسبورين C على العمود الفقري لحمض α-aminoadipic (homoglutamate) الذي يتوسطه جزء من السيفالوسبورين. البنسيلامين هو حمض أميني علاجي ، طريقة عمله غير معروفة.يمكن أن تشتمل السموم الزرقاء الموجودة بشكل طبيعي كذلك على أحماض أمينية غير بروتينية. Microcystin و nodularin ، مثلًا، على حد سواء المستمدة من ADDA ، وهو حمض أميني β.
أحماض أمينية D
في الحيوانات ، بعض الأحماض الأمينية D هي نواقل عصبية.
وعلى صعيد آخر، تحتوي بعض الأحماض الأمينية على عكس chirality المطلقة ، والمواد الكيميائية التي لا تتوفر من آلات الترجمة / النسخ الريبوزومية العادية. تتشكل أغلب جدران الخلايا البكتيرية بواسطة الببتيدوغليكان ، وهو بوليمر مكون من سكريات أمينية متشابكة مع ببتيدات قليلة الببتيدات قصيرة تربط بين بعضها البعض. قليل الببتيد مركب غير ريبوسومي ويحتوي على الكثير من الخصائص المميزة بما في ذلك الأحماض الأمينية D ، بشكل عام D- ألانين و D- الجلوتامات. خصوصية أخرى هي أن الأول يتم فصله عن طريق إنزيمات ملزمة لـ PLP (مشفرة بواسطة alr أو homologue dadX ) ، في حين يتم فصل الأخير عن طريق إنزيم مستقل عامل مساعد ( murI ). بعض المتغيرات موجودة في Thermotoga spp. يوجد D-lysine وفي بعض البكتيريا المقاومة للفانكومايسين D-serine موجود (جين vanT ).
22 حمض أميني مولد للبروتين
- أكثر من 80 من الأحماض الأمينية يتم إنشاؤها بطريقة حيوية بتركيزات عالية
- يتم إنتاج نحو 900 عن طريق المسارات الطبيعية
- تم وضع أكثر من 118 من الأحماض الأمينية المصنعة هندسياً في البروتين
وفي هذا السياق، تتداخل هذه المجموعات ، لكنها ليست متطابقة. جميع الأحماض الأمينية المكونة للبروتين وعددها 22 تم تصنيعها حيويًا بواسطة الكائنات الحية ، بعضها وليس كلها ، غير حيوي (موجود في تجارب البريبايوتك والنيازك). يتم دمج بعض الأحماض الأمينية الطبيعية ، مثل النورليوسين ، بشكل انتقالي في بروتينات بسبب خيانة عملية تكوين البروتين. الكثير من الأحماض الأمينية ، مثل الأورنيثين ، عبارة عن وسيطة أيضية يتم إنتاجها بطريقة بيولوجية ، ولكنها غير مدمجة في البروتينات. يؤدي التعديل اللاحق للترجمة لبقايا الأحماض الأمينية في البروتينات إلى تكوين الكثير من الأحماض الأمينية البروتينية ، ولكن غير البروتينية. توجد الأحماض الأمينية الأخرى فقط في الخلطات اللاأحيائية (مثل α-methylnorvaline). تم إدخال أكثر من 30 من الأحماض الأمينية غير الطبيعية بشكل انتقالي في البروتين في الأنظمة الهندسية ، ومع ذلك فهي ليست حيوية.
الأحماض الأمينية البريبايوتيك والكيمياء الحيوية البديلة
كذلك، في النيازك وفي تجارب البريبايوتك (مثلًا تجربة Miller – Urey ) تم العثور على الكثير من الأحماض الأمينية أكثر من عشرين حمضًا أمينيًا قياسيًا ، والعديد منها بتركيزات أعلى من تلك القياسية: تم التخمين أنه إذا ظهرت الحياة القائمة على الأحماض الأمينية بالتوازي في مكان آخر في الكون ، فلا أكثر من 75٪ من الأحماض الأمينية ستكون مشتركة. الشذوذ الأكثر وضوحا هو نقص حمض أمينوبوتريك.
غير ألفا
كذلك، توجد بعض الأحماض الأمينية غير ألفا في الكائنات الحية. في هذه الهياكل ، نزحت مجموعة الأمين أبعد من نهاية حمض الكربوكسيل لجزيء الأحماض الأمينية. وهكذا فإن الحمض الأميني يحتوي على مجموعة أمين مرتبطة بالكربون الثاني بعيدًا ، وحمض أميني يحتوي عليها في الثالث. تشمل الأمثلة- alanine وGABA و δ- aminolevulinic acid .تم ربط سبب استخدام الأحماض الأمينية ألفا في البروتينات بترددها في النيازك وتجارب البريبايوتك. تكهنات أولية حول الخصائص الضارة للأحماض الأمينية بيتا من حيث التركيب الثانوي، تبينت أنها غير صحيحة.
التسمية
وعلى صعيد آخر، فضلًا عن نظام الترقيم IUPAC للتمييز بين مختلف أنواع الكربون في جزيء عضوي ، عن طريق التعيين التسلسلي لرقم لكل كربون ، بما في ذلك تلك التي تشكل مجموعة كربوكسيلية ، يمكن كذلك تسمية الكربون على طول السلسلة الجانبية للأحماض الأمينية بأحرف يونانية ، حيث أن الكربون ألفا هو الكربون اللولبي المركزي الذي يمتلك مجموعة كربوكسيل ، وسلسلة جانبية ، وفي الأحماض الأمينية ألفا ، مجموعة أمينية - لا يتم حساب الكربون في المجموعات الكربوكسيلية. (وبالتالي ، فإن أسماء IUPAC للعديد من الأحماض الأمينية غير البروتينية تبدأ بـ 2-amino- وتنتهي في -ic acid . )
الأحماض الغير أمينة
ومن جهة أخرى، يتم اشتقاق الأوزموليت والساركوزين والجليسين بيتين من الأحماض الأمينية ، ولكن لها أمين ثانوي ورباعي على التوالي.
وفي هذا السياق، التورين هو حمض أميني سلفونيك وليس من الأحماض الأمينية الكربوكسيلية ، ومع ذلك فإنه يعتبر أحيانًا مثل الكميات المطلوبة لقمع auxotroph في كائنات معينة (مثل القطط) أقرب إلى تلك الموجودة في «الأحماض الأمينية الأساسية» (ضمور الأحماض الأمينية) من الفيتامينات (العامل المساعد auxotrophy).
دورها
ومن ناحية أخرى، تحدث الأورنيثين والسيترولين في دورة اليوريا ، وهي جزء من هدم الأحماض الأمينية (انظر أدناه).
إضافةً إلى ذلك، فضلًا عن التمثيل الغذائي الأولي ، فإن الكثير من الأحماض الأمينية غير البروتينية هي سلائف أو الإنتاج النهائي في التمثيل الغذائي الثانوي لصنع مركبات صغيرة أو ببتيدات غير ريبوسومية (مثل بعض السموم ).
وفي السياق ذاته، في الخلايا ، وخاصة ذاتية التغذية ، تم العثور على الكثير من الأحماض الأمينية غير البروتينية كمواد وسيطة أيضية. ومع ذلك ، على الرغم من المرونة التحفيزية للأنزيمات المرتبطة بـ PLP ، يتم تصنيع الكثير من الأحماض الأمينية كأحماض كيتو (مثلًا 4-ميثيل 2-أوكسوبنتانوات إلى لوسين) ويتم تربيتها في الخطوة الأخيرة ، وبالتالي الحفاظ على عدد الأحماض الأمينية غير البروتينية وسيطة منخفضة إلى حد ما.
التعريف بالنفي
20 من الأحماض الأمينية القياسية
من جانب آخر، من الناحية التقنية، أي مركب عضوي مع أمين (-NH 2) و حمض الكربوكسيلية (-COOH) مجموعة وظيفية هي الأحماض الأمينية. والأحماض الأمينية المكونة للبروتينات هي مجموعة فرعية صغيرة من هذه المجموعة التي تمتلك ذرة الكربون المركزية (α- أو 2-) تحمل مجموعة الأمينية، مجموعة الكربوكسيل، و سلسلة جانبية وlevo α الهيدروجين التشكل ، باستثناء الجلايسين ، وهو achiral ، والبرولين ، التي تعتبر مجموعتها الأمينية أمينات ثانوية وبالتالي يشار إليها كثيرًا باسم حمض إيمينو لأسباب تقليدية .
وفي السياق ذاته، يشفر الكود الجيني 20 من الأحماض الأمينية القياسية لإدماجها في البروتينات أثناء الترجمة. ومع ذلك ، هناك نوعان إضافيان من الأحماض الأمينية البروتينية: سيلينوسيستين وبيروليزين . لا تحتوي هذه الأحماض الأمينية الغير قياسية على كودون مخصص ، ولكن تتم إضافتها بدلاً من كودون التوقف عند وجود تسلسل محدد ، كودون UGA وعنصر SECIS للسيلينوسيستين . تسلسل UAG PYLIS المصب للبيروليزين. جميع الأحماض الأمينية الأخرى تسمى «غير مولدة للبروتين»هناك مجموعات مختلفة من الأحماض الأمينية:
السلسلة الجانبية المستقيمة
إضافةً إلى ذلك، تم وصف الكود الجيني على أنه حادث متجمد وأسباب وجود حمض أميني قياسي واحد فقط بسلسلة مستقيمة (ألانين) يمكن ببساطة أن يكون التكرار مع الفالين والليوسين والإيزولوسين. ومع ذلك ، تم الإبلاغ عن أن الأحماض الأمينية ذات السلاسل المستقيمة تشكل حلزونات ألفا أكثر استقرارًا.
أحماض أمينية مزدوجة
في هذا الإطار، مجموعة فرعية من الأحماض الأمينية L-α غامضة فيما يتعلق بأي من الطرفين هو α-carbon. في البروتينات يمكن لبقايا السيستين أن تشكل رابطة ثاني كبريتيد مع بقايا سيستين أخرى ، وبالتالي تشابك البروتين. يشكل سيستين متشابك جزيء سيستين . يتم إنتاج السيستين والميثيونين عموما sulfurylation مباشرة، ولكن في بعض الأنواع التي يمكن أن تنتج عن طريق transsulfuration ، حيث تنشيط homoserine أو السيرين وتنصهر ل السيستين أو الحمض الاميني تشكيل سيستاتيونين . مركب مشابه هو اللانثيونين ، والذي يمكن رؤيته على أنه جزيئين ألانين مرتبطين عبر رابطة ثيوثير ويوجد في كائنات مختلفة. وبالمثل ، فإن حمض djenkolic ، وهو سم نباتي من حبوب جنكول ، يتكون من سيستين متصلتين بواسطة مجموعة ميثيلين. يستعمل حمض ديامينوبيمليك كجسر في الببتيدوغليكان ويستعمل كمقدمة لليسين (عن طريق نزع الكربوكسيل).
دمج البروتين بعد المتعدية
إضافةً إلى ذلك، على الرغم من عدم تشفيرها بواسطة الشفرة الجينية كأحماض أمينية بروتينية ، إلا أن بعض الأحماض الأمينية غير القياسية توجد مع ذلك في البروتينات. تتشكل هذه عن طريق تعديل لاحق متعدية للسلاسل الجانبية للأحماض الأمينية القياسية الموجودة في البروتين الهدف. غالبًا ما تكون هذه التعديلات ضرورية لوظيفة البروتين أو تنظيمه ؛ مثلًا، في غاما carboxyglutamate و كرسلة من الغلوتامات تسمح ملزمة أفضل من الكاتيونات الكالسيوم ، وفي الهيدروكسي برولين في الهيدروكسيل من البرولين أمر بالغ الأهمية للحفاظ على الأنسجة الضامة . مثال آخر هو تكوين hypusine في عامل بدء الترجمة عامل بدء ترجمة حقيقيات النوى أ5 ، من خلال تعديل بقايا ليسين. يمكن أن تحدد مثل هذه التعديلات كذلك توطين البروتين ، مثلًا ، يمكن أن تؤدي إضافة مجموعات طويلة كارهة للماء إلى ارتباط البروتين بغشاء فوسفوليبيد . هناك بعض الأدلة الأولية على أن حمض الأمينومالونيك قد يكون موجودًا ، ربما عن طريق سوء الدمج ، في البروتين.
أحماض أمينية طبيعية ولكنها غير L-α
وفي هذا الصدد، أغلب الأحماض الأمينية الطبيعية عبارة عن أحماض أمينية ألفا في شكل L ، ولكن توجد بعض الاستثناءات.
كالكوجين
من جهة ثانية، سيرين, homoserine, O-ميثيل-homoserine و O-إيثيل-homoserine تمتلك hydroxymethyl ، هيدروكسيثيل, O-ميثيل-hydroxymethyl و O-ميثيل-هيدروكسي إيثيل سلسلة جانبية. في حين السيستين, الحمض الأميني ، ميثيونين و ethionine تمتلك ثيول حكمه. على selenol حكمه هي selenocysteine, selenohomocysteine, selenomethionine و selenoethionine.
ومن ناحية أخرى، Hydroxyglycine ، وهو حمض أميني به سلسلة جانبية هيدروكسيل ، غير مستقل للغاية.
إضافةً إلى ذلك، الأحماض الأمينية مع chalcogen أسفل كما وجدت في الطبيعة: الكثير من الأنواع مثل الرشاشية الدخناء, Aspergillus terreus و Penicillium chrysogenum في غياب الكبريت قادرة على إنتاج ودمج إلى البروتين tellurocysteine و telluromethionine.
بدون هيدروجين على α-carbon
علاوةً على ذلك، تحتوي جميع الأحماض الأمينية البروتينية على هيدروجين واحد على الأقل في الكربون ألفا. يحتوي الجلايسين على اثنين من الهيدروجين ، وجميع الأنواع الأخرى بها هيدروجين وسلسلة جانبية واحدة. استبدال الهيدروجين المتبقي ببديل أكبر ، مثل مجموعة الميثل ، يشوه العمود الفقري للبروتين.
من جانب آخر، في بعض الفطريات ألفا الأمينية isobutyric حمض ينتج تمهيدا الببتيدات ، وبعضها يحمل خصائص المضادات الحيوية. هذا المركب يشبه ألانين, ولكن يمتلك مجموعة الميثيل إضافية على α-الكربون بدلا من الهيدروجين. ولذلك achiral. مركب آخر مشابه ألانين دون α-الهيدروجين هو dehydroalanineالتي تمتلك الميثيلين sidechain. وهو واحد من عدة طبيعيا dehydroamino الأحماض.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟