خلية جذعية كثيرة القدرة مستحثة
المحتويات
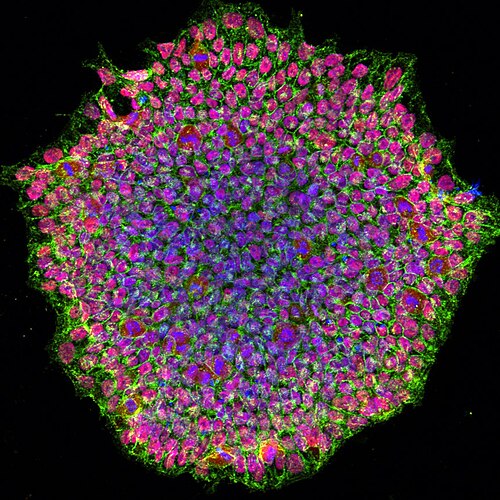
بدايةً، الخلايا الجذعية كثيرة القدرة المستحثة واختصارا (إپسك : iPSC) هي نوع من الخلايا الجذعية كثيرة القدرة التي يمكن توليدها مباشرة من خلايا جسدية . كان شينيا ياماناكا وكازوتوشي تاكاهاشي أول من راد الأبحاث حول تقنية الإپسك في كيوتو باليابان، وأثبتا معا في 2006 أن إضافة أربع جينات متخصصة هي ( و و وMyc) تُرمِّز عوامل نسخ تسمى معا عوامل ياماناكا، يمكنها تحويل الخلايا الجسدية إلى خلايا جذعية كثيرة القدرة. حصل شينيا ياماناكا على جائزة نوبل عام 2012 مع جون غوردون "لاكتشافهما أن الخلايا البالغة (المتمايزة) يمكن Reprogramming لتصبح كثيرة القدرة."
وفي هذا الصدد، نظرا لإمكانية توليد الإپسكات مباشرة من الأنسجة البالغة -فهذا لا يعني أن بالإمكان الاستغناء عن استخدام الأجنة فحسب - بل بالإمكان توليدها بطريقة تطابق خلايا المريض كذلك، أي بإمكان كل مريض أن يحصل على سلالة خلية جذعية كثيرة القدرة خاصة به. يمكن أن تُستعمل هذا المخزونات غير المحدودة من الخلايا الذاتية في توليد أعضاء للزراعة من دون خطر رفض جهاز المناعة لها. رغم أن تقنية الإپسكات غير متطورة لحد الآن لدرجة تُعتبَر فيها الزراعات العلاجية آمنة، إلا أنها تُستعمل بسهولة في أبحاث اكتشافات العقاقير حسب الأفراد، ولفهم أسس الأمراض التي تختلف أعراضها حسب المريض.
كذلك، الخلايا الجذعية كثيرة القدرة لها تطبيقات واعدة في مجال طب التجديد. لأن بإمكانها التضاعف بشكل غير محدود، كما يمكنها التمايز لأي نوع من أنواع الخلايا في الجسم (مثل العصبونات، خلايا القلب، البنكرياس والكبد) وتمثل مصدرا واحدا للخلايا التي يمكن استعمالها لاستبدال الخلايا المتضررة أو المفقودة أو المريضة. أشهر الخلايا الجذعية كثيرة القدرة هي الخلايا الجذعية الجنينية، لكن بما أن توليدها واستخلاصها يتطلب تدمير (أو على الأقل التلاعب) بجنين مرحلة ما قبل الانغراس، فإن ذلك سبب جدلا كبيرا حول استخدامها. يمكن الآن الحصول على سلالات الخلايا الجذعية الجنينة المطابقة للمريض باستخدام نقل نواة الخلية الجسدية .
جيل من الأرومات الليفية البشرية
وفي هذا السياق، أُبلغ عن إنتاج الإپسكات البشرية في نوفمبر 2007 بواسطة فريقي بحث مستقلين: فريق ياماناكا من جامعة كيوتو الذي كان أول من ابتكر طريقة إنتاج الإپسكات، وفريق جيمس ثومسون من جامعة ويسكونسن-ماديسون الذي كان أول من استخلص الخلايا الجذعية الجنينية البشرية. باستخدام نفس النهج المستعمل في إعادة برمجة الخلايا الفأرية، تمكن فريق ياماناكا من تحويل الأرومات الليفية إلى إپسكات باستخدام نفس الجينات الأربعة الأساسية (Oct4 وSox2 وcMyc وKlf4) واستخدام الفيروسات الراجعة لإدراجها، في حين استعمل ثومسون وزملاؤه مجموعة مختلفة من العوامل: Oct4 وSox2 وNanog وLin28 مع استخدام الفيروسات البطيئة لإدراجها.
الجينات المستخدمة في إنتاج الإپسكات
علاوةً على ذلك، توليد الخلايا كثيرة القدرة المستحثة يعتمد بشكل أساسي على عوامل نسخ تُستعمل للاستحثاث. تم إثبات أن Oct-4 وبعض النواتج من (Sox1 وSox2 وSox3 وSox15) هي عوامل نسخ منظمة حاسمة في عملية الاستحثاث وأن غيابها يجعل الاستحثاث مستحيلا. وتم إثبات أن بعض الجينات الأخرى منها: بعض أفراد (Klf1 وKlf2 وKlf4 وKlf5)، وعائلة Myc (c-myc وL-myc وN-myc) ونانوغ وLIN28 تزيد في فعالية الاستحثاث.
وعلى صعيد آخر، GLIS1: هو عامل نسخ يمكن استخدامه مع OCT4 وSOX2 وKlf4 لاستحثاث كثرة القدرة. ويمنح ميزات عديدة عندما يُستعمل بدل C-myc منها أنه أكثر فاعلية في إعادة البرمجة ولا خطر في تسببه في السرطان.
ومن جهة أخرى، Oct-4 ويسمى كذلك (Pou5f1) هو أحد أفراد عائلة (ومنه جاءت التسمية Oct اختصارا لـoctamer) ويلعب دورا حاسما في المحافظة على كثرة القدرة. يؤدي غياب Oct-4 في الخلايا التي يُفترض أنها تُعبر عنه مثل القسيم الأريمي والخلايا الجذعية الجنينية إلى التمايز التلقائي إلى أرومة مغذية، وتواجد Oct-4 يسمح بنشوء كثرة القدرة وإمكانية التمايز إلى الخلايا الجذعية الجنينية. فشلت عدة جينات أخرى من عائلة Oct بما في ذلك أقرب الأقرباء لـOct-4 وهما Oct1 وOct6 في إحداث الاستحثاث وهذا يثبت أن Oct-4 حصريا من يمكنه إحداث عملية الاستحثاث. مع ذلك، أظهر فريق بقيادة هانز شولر (الذي اكتشف Oct4 سابقا في سنة 1989) أن التعبير المفرط عن Oct4 أثناء إعادة البرمجة يسبب تغيرات فوق جينية تقلل من جودة الإپسكات. مقارنة بـ OSKM (الحروف الأولى من Oct4 وSox2 وKlf4 وc-Myc) تولد إعادة البرمجة باستخدام SKM (Sox2 وKlf4 وc-Myc) إپسكات لها قدرة نمو مماثلة للخلايا الجذعية الجنينية، بسبب قدرتها على توليد "فئران كليا من الإپسك" عبر .
- انظر كذلك
- خلية جذعية مستحثة
- علاج بالخلايا الجذعية
- ملاحظات
من جهة ثانية، عائلة Myc: هي عائلة من عوامل النسخ وهي جينات ورمية بدئية لها دور في السرطان. أثبت فريق ياماناكا وفريق يانيش أن العامل c-myc له دور في توليد الإپسكات الفأرية، وأثبت فريق ياماناكا أن له دور في توليد الإپسكات البشرية. مع ذلك، استخدام فريقي ياماناكا وثومسون لجينات عائلة myc لاستحثاث الإپسكات مقلق عند التفكير في استخدامها كعلاجات سريرية لأن 25% من الفئران التي زُرِعت فيها الإپسكات المولدة باستخدام c-myc طورت أوراما مسخية قاتلة. تم تحديد أن N-Myc وMYCL1 بإمكانهما إحداث الاستحثاث بنفس الفاعلية عند استبدال c-myc بأحدهما.
وعلى صعيد آخر، نانوغ: في الخلايا الجذعية الجنينية، نانوغ ضروري لتحفيز كثرة القدرة جنبا إلى جنب مع Oct4 وSox2، لذلك كان إبلاغ ياماناكا أن نانوغ غير ضروري للاستحثاث مفاجئ. رغم ذلك أفاد فريق ثومسون أن بالإمكان توليد الإپسكات باستخدام نانوغ كأحد العوامل.
من جهة ثانية، عائلة Klf: هي عائلة من عوامل النسخ. اكتُشِف Klf4 في البداية بواسطة فريق ياماناكا، وأكد فريق يانيش أنه عامل نسخ بقدوره إنتاج الإپسكات الفأرية، وأكد فريق ياماناكا أن بإمكانه إنتاج الإپسكات البشرية. مع ذلك، أبلغ فريق ثومسون أن Klf4 لم يكن ضروريا لتوليد الإپسكات البشرية، بل في الواقع فشل في توليدها. تم إثبات أن Klf4 وKlf2 عاملان قادران فعلا على توليد الإپسكات، وأن الجينات Klf1 وKLF5 ذات الصلة قادرة كذلك على توليدها لكن بفعالية منخفضة.
وفي السياق ذاته، LIN28: هو بروتين مرتبط بالرنا الرسول يُعبر عنه في الخلايا الجذعية الجنينية والخلايا السرطانية الجنينية المرتبطة بالتمايز والتكاثر. أثبت ثومسون وزملاؤه أن العامل LIN28 يمكنه توليد الإپسكات حين يكون في توليفة مع OCT4 وSOX2 ونانوغ.
علاوةً على ذلك، عائلة Sox: هي عائلة من عوامل النسخ لها دور في الحفاظ على كثرة القدرة مثل Oct-4، لكن لها أدوار في الخلايا الجذعية متعددة القدرة ووحيدة القدرة كذلك وذلك خلافا لـOct-4 الذي يعبر عنه حصريا في الخلايا الجذعية كثيرة القدرة. في حين أن Sox2 كان الجين الذي استُخدم في البداية للاستحثاث بواسطة فرق ياماناكا ويانيش وثومسون، استعمل باحثون آخرون لاحقا عوامل نسخ أخرى من عائلة Sox ووجدوا أنها تُحدِث الاستحثاث كذلك. أنتج Sox1 إپسكاتٍ ذات فعالية مماثلة لتلك التي أنتجها Sox2، وأنتجت الجينات Sox3 وSOX15 وSOX18 إپسكاتٍ كذلك لكن بفعالية منخفضة. قام فيليتشكو وزملاؤه بهندسة عامل إعادة برمجة خيمري Sox2-17 تمكن من تحسين توليد الإپسكات لدى الفئران، البشر، القرود، الخنازير والبقر.
الإنتاج
ومن ناحية أخرى، اشتُق هذا الجيل الثاني من الإپسكات من أرومات ليفية فأرية عبر التعبير المتواسط بالفيروسات الراجعة عن نفس عوامل النسخ الأربعة (Oct4 وSox2 وcMyc وKlf4). لكن بدل استخدام Fbx15 لانتقاء وعزل الخلايا كثيرة القدرة، قام الباحثون باستخدام وهو جين مهم وظيفيا للخلايا الجذعية الجنينية. باستخدام هذا النهج المختلف، أنتج الباحثون إپسِكاتٍ كانت مماثلة وظيفيا للخلايا الجذعية الجنينية.
وفي السياق ذاته، بعد إدراج جميع العوامل (الجينات) الأربعة والعشرين، ظهرت مستعمرات شبيهة بالإسِكات قامت بإعادة تنشيط الجين المخبر ومن سمات هذه المستعمرات أن بإمكانها التكاثر والانقسام بشكل غير محدود. لتحديد الجينات الضرورية لإعادة البرمجة هذه، قام الباحثان بإزالة جين واحد في كل مرة من مجموع الجينات الأربعة والعشرين. بهذه الطريقة تمكنا من تحديد أربعة عوامل: Oct4 وSox2 وcMyc وKlf4 كان كل واحد منها ضروريا وكانت كافية معا لإنتاج مستعمرات شبيهة بالإسِكات يتم انتقاؤها بواسطة إعادة تنشيط Fbx15.
وفي هذا الصدد، في يونيو 2007، نشرت ثلاث فرق بحثية منفصلة هي: فريق ياماناكا، فريق مشترك بين جامعة كاليفورنيا (لوس أنجلوس) وجامعة هارفرد وفريق من معهد ماساتشوستس للتكنولوجيا دراسات حسنت إلى حدّ كبير منهج إعادة البرمجة وأدت إلى إنتاج إپسِكاتٍ لا يمكن تمييزها عن الإسِكات. على خلاف الجيل الأول من الإپسكات، أنتج الجيل الثاني من الإپسكات فئران خيمرية تمكنت من البقاء على قيد الحياة، وساهمت في الخط الجنسي للفأر، وبالتالي حققت "المعيار الذهبي" للخلايا الجذعية كثيرة القدرة.
الجيل الأول (فأر)
الخلايا الجذعية كثيرة القدرة المستحثة البشرية
وفي هذا السياق، تُنتج الإپسكات عادة عبر إدراج نواتج مجموعة محددة من الجينات المرتبطة بكثرة القدرة تسمى "عوامل إعادة البرمجة" إلى نوع معين من الخلايا. المجموعة الأصلية من عوامل إعادة البرمجة (وتسمى كذلك بعوامل ياماناكا) هي عوامل النسخ: Oct4 وSox2 وKlf4 وcMyc. في حين أن هذه التوليفة من عوامل النسخ هي أكثر توليفة مألوفة في إنتاج الإپسكات، يمكن استبدال كل عامل منها وظيفيا بعوامل نسخ، جزيئات رنا ميكروي، جزيئات صغيرة ذات صلة به، أو حتى جينات غير ذات صلة مثل محددات السلالة. من الواضح كذلك أن العوامل الداعمة للانقسام المنصف مثل C-MYC/L-MYC أو المثبطة لنقاط تفتيش دورة الخلية مثل بي53 هي وسائل لإنشاء حالة خلوية مطاوعة من أجل إعادة برمجة الخلايا إلى إپسكات.
الجيل الثاني (فأر)
وفي هذا السياق، إنتاج الإپسكات عملية بطيئة وغير فعالة في العادة، وتستغرق 1-2 أسبوع عند استخدام خلايا الفئران و3-4 أسابيع عند استخدام الخلايا البشرية، مع فعالية تقدر بـ 0.01–0.1%. مع ذلك، تم إحراز تقدمات معتبرة في تحسين فعالية وزمن إنتاج الإپسكات. عند إضافة عوامل إعادة البرمجة، تبدأ الخلايا في تشكيل مستعمرات تماثل مستعمرات الخلايا الجذعية كثيرة القدرة، فيما بعد تُستخلص هذه الخلايا حسب شكلها، الوظائف التي تحدد نموها، أو حسب تعبيرها عن العلامات السطحية أو الجينات المخبرة.
وفي هذا السياق، أُنتجت الخلايا الجذعية كثيرة القدرة المستحثة أول مرة بواسطة شينيا ياماناكا وكازوتوشي تاكاهاشي في جامعة كيوتو باليابان عام 2006. حيث افترضا أن الجينات المهمة لوظيفة الخلية الجذعية الجنينية (إسِك : ESC) يمكن أن تَستحِث الحالة الجنينية في الخلايا البالغة. واختارا أربعة وعشرين جينا تم تحديدها سابقا على أنها مهمة للخلايا الجذعية الجنينية واستعملا فيروسات راجعة لإدراج هذه الجينات في الأرومة الليفة الخاصة بالفئران. تمت هندست الأرومات الليفية بحيث أن أيّ خلية تعيد تنشيط الجين Fbx15 الخاص بالإسِكات يمكن عزلها باستخدام الانتقاء المضاد حيوي.
جيل من أنواع خلوية أخرى
وفي هذا السياق، الإعتبارات التي تؤخذ في الحسبان عند اختيار نوع الخلية المراد إعادة برمجته (الخلايا البادئة) هي: (مثلًا: تحتوي خلايا الجلد على طفرات أكثر بسبب التعرض للأشعة فوق البنفسجية)، الوقت اللازم لتكاثر الخلايا البادئة، وقدرتها على التمايز إلى نوع معين من الخلايا.
من جهة ثانية، يتطلب الحصول على الأرومات الليفية لإنتاج الإپسكات القيام بخزعة الجلد، وكان هنالك سعي نحو استخدام أنواع خلوية يكون الحصول عليها أكثر سهولة. في 2008، تم إنتاج الإپسكات من الخلايا الكيراتينية البشرية التي يمكن الحصول عليها من نتف شعرة واحدة. في 2010، اشتُقت الإپسكات من خلايا الدم المحيطية، وفي سنة 2012 اشتُقت من الخلايا الظهارية الكلوية المتواجدة في البول.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟