سوط (أحياء)
المحتويات
- فلاجيلا ومناقشة التصميم الذكي
- محرك
- السياط والبكتيريا
- النقل
- مخططات ترتيب فلاجيلار
- وظيفة السياط
- التطور والوقوع
- أنواع
- آلية
- الهيكل الداخلي
- عتيق
- مزلق: سوط يتدحرج على الركيزة
- فلاجيلا مقابل أهداب
- التصنيف
- الهيكل والتكوين
- uniflagellated: على سبيل المثال ، معظم Opisthokonta
- سوط بانتونيماتيك: مع صفين من الشعر
- pleurokont: خلايا ذات سوط يتم إدخالها جانبياً
- المجسم
- تطور
- مع المقاييس: على سبيل المثال ، Prasinophyceae
- المصطلح
- إيزوديناميكي: الضرب بالسوط بنفس الأنماط
بدايةً، السَّوط (ج.: سياط) بنية سطحية لخلايا حقيقيات النوى أو بدائيات النوى تساعدها على الحركة في الوسط السائل أو على سطح وسط جامد. توجد فروق هامة بين السياط عند حقيقيات النوى وبدائيات النوى من حيث تركيبها البروتيني وآلية الدفع والبنية، حيث ثخن السوط عند البكتيريا من 10 إلى 20 نانومتر، ولذلك لا يمكن رؤيته بواسطة المجهر الضوئي، وطوله 3-15 ميكرون، بينما قد يصل سُمك السوط عند حقيقيات النوى إلى 200 نم وطوله إلى 200 ميكرون. وتتشابه بنية السياط والأهداب عند حقيقيات النوى، وقد تختلف بالوظيفة أو الطول. ونتناول فيما يلي مزيدًا من التفاصيل.
علاوةً على ذلك، النطفة ، وهي مثال على خلية حقيقية النواة تستعمل سوطها للتحرك نحو الجهاز التناسلي الأنثوي وضمنه، والملويات البوابية مثال على بكتيريا ذات سياط متعددة تساعدها على الحركة عبر المخاط للوصول إلى ظهارة جهاز الهضم.
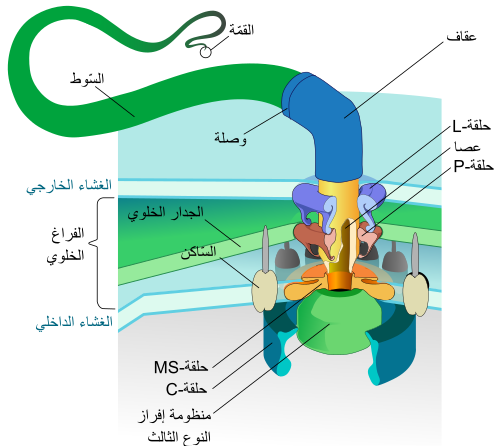
وفي هذا الصدد، السوط يكون مزروعا في جدار الخلية وله تركيبة مماثلة تماما للمحرك الكهربائي في مستوى المقاييس النانونية؛ فهو مكون من عدة أنواع من جزيئات البروتينات لكل منها وظيفة تجعل السوط قادرا على الدوران (انظر الشكل) .
كذلك، ففي عالم البكتيريا يطلق على البكتيريا التي تمتلك سياطا بأنها متحركة.
وفي هذا الصدد، تتكون من مواد بروتينية، ويسمى هذا الآحين (البروتين) فلاجيلين ويكون على شكل هدب أو سوط. وتقوم بمساعدة البكتيريا وغيرها من الخلايا على الحركة.
ومن ناحية أخرى، و تعتبر السياط من الصفات المميزة للبكتيريا والتي يمكن استخدامها في عملية التصنيف.
فلاجيلا ومناقشة التصميم الذكي
من جانب آخر، جادل بعض المؤلفين بأن الأسواط لا يمكن أن تتطور، بافتراض أنها لا تستطيع العمل بشكل صحيح إلا عندما تكون جميع البروتينات في مكانها. وبعبارة أخرى، فإن الجهاز السوطي «معقد بشكل غير قابل للاختزال». ومع ذلك، يمكن حذف الكثير من البروتينات أو تحويرها ولا يزال الجلد يعمل، وإن كان في بعض الأحيان بكفاءة منخفضة. علاوةً على ذلك، يتنوع تكوين الأسواط بشكل مدهش عبر البكتيريا، حيث توجد الكثير من البروتينات فقط في بعض الأنواع، ولكن ليس في البعض الآخر. ومن ثم، فمن الواضح أن الجهاز السوطي مرن جدًا من الناحية التطورية وقادرًا تمامًا على فقدان أو اكتساب مكونات البروتين. مثلًا، تم العثور على عدد من الطفرات التي تزيد من حركية الإشريكية القولونية. دليل إضافي على تطور الأسواط البكتيرية يتضمن وجود سوط أثري، وأشكال وسيطة من الأسواط وأنماط من التشابه بين متواليات البروتين السوطي، بما في ذلك ملاحظة أن جميع البروتينات السوطية الأساسية على وجه التقريب قد عرفت تماثلات مع بروتينات غير سوطية . علاوة على ذلك، تم تحديد الكثير من العمليات على أنها تلعب أدوارًا مهمة في تطور السوط، بما في ذلك التجميع الذاتي للوحدات الفرعية المتكررة البسيطة، والازدواجية الجينية مع الاختلاف اللاحق، وتجنيد عناصر من أنظمة أخرى («bricolage الجزيئي») وإعادة التركيب.
محرك
علاوةً على ذلك، يتم تشغيل السوط البكتيري بواسطة محرك دوار (مجمع Mot) يتكون من البروتين، الموجود عند نقطة تثبيت السوط على غشاء الخلية الداخلي. يتم تشغيل المحرك بواسطة القوة المحركة للبروتون، أي عن طريق تدفق البروتونات (أيونات الهيدروجين) عبر غشاء الخلية البكتيرية بسبب تدرج تركيز تم إعداده بواسطة عملية التمثيل الغذائي للخلية (أنواع Vibrio لها نوعان من السوط، الجانبي والقطبي، ويتم تشغيل بعضها بواسطة مضخة أيونات الصوديوم بدلاً من مضخة البروتون ).ينقل الجزء المتحرك البروتونات عبر الغشاء، ويتم قلبه في هذه العملية. يمكن أن يعمل الدوار وحده من 6000 إلى 17000 دورة في الدقيقة، ولكن مع الخيوط السوطية المرفقة عادة ما تصل فقط إلى 200 إلى 1000 دورة في الدقيقة. يمكن تغيير اتجاه الدوران بواسطة مفتاح المحرك السوطي بشكل فوري على وجه التقريب، بسبب تغيير طفيف في موضع البروتين، FliG ، في الدوار. السوط ذو كفاءة عالية في استخدام الطاقة ويستعمل القليل جدًا من الطاقة. لا تزال الآلية الدقيقة لتوليد عزم الدوران غير مفهومة جيدًا. نظرًا لعدم وجود مفتاح تشغيل وإيقاف للمحرك السوطي، يتم استخدام البروتين epsE كقابض ميكانيكي لفصل المحرك عن الدوار، وبالتالي إيقاف السوط والسماح للبكتيريا بالبقاء في مكان واحد.
وفي هذا السياق، يناسب الشكل الأسطواني للأسواط حركة الكائنات المجهرية؛ تعمل هذه الكائنات الحية بعدد رينولدز المنخفض، حيث تكون لزوجة المياه المحيطة أكثر أهمية من كتلتها أو قصورها.
علاوةً على ذلك، تختلف سرعة دوران الأسواط بحسب شدة القوة الدافعة للبروتون، مما يسمح بأشكال معينة من التحكم في السرعة، كما يسمح لبعض أنواع البكتيريا بالحصول على سرعات ملحوظة تتناسب مع حجمها؛ يصل بعضها إلى 60 خلية في الثانية على وجه التقريب. بهذه السرعة، تستغرق البكتيريا نحو 245 يومًا لتغطي مسافة كيلومتر واحد؛ على الرغم من أن هذا قد يبدو بطيئًا، إلا أن المنظور يتغير عندما يتم تقديم مفهوم المقياس. بالمقارنة مع أشكال الحياة المجهرية، فهي سريعة جدًا بالفعل عند التعبير عنها من حيث عدد أطوال الجسم في الثانية. مثلًا، يبلغ طول الفهد قرابة 25 طولًا للجسم في الثانية.
مزيد من المعلومات: الحركة الدوارة في الأنظمة الحية
كذلك، من خلال استخدام سياط، و كولاي هي قادرة على التحرك بسرعة نحو جاذبة وبعيدا عن المواد الطاردة، عن طريقالمشي العشوائي منحازة، مع «يعمل» و «السقوط» التي أحدثتها الدورية لها السوط عكس اتجاه عقارب الساعة وعقارب الساعة، على التوالي. اتجاهي الدوران غير متطابقين (فيما يتعلق بحركة السوط) ويتم تحديدهما بواسطة مفتاح جزيئي.
السياط والبكتيريا
في هذا الإطار، وقد يوجد على خلية البكتيريا سوت واحد فقط وفي جهة واحدة فقط وفي هذه الحالة تسمى أُحادِيُّ السَّوط
في الخلية البكتيرية توجد السياط بأنماط متعددة:
- انظر كذلك
- الأهداب
- الخيوط السوطية
- الميكروب
- بروتين تشغيل محرك فلاجيلار
إضافةً إلى ذلك، فقد تحيط السياط بالخلية من كل اتجاه وفي هذه الحالة تسمى مُحيطِيَّةُ السِّياط
وفي هذا الصدد، أو قد تكون السياط متجمعة في مكان واحد من الخلية البكتيرية وتوصف بهذه الحالة بأنها عُفْرَيَّةِ السِّياط
من جهة ثانية، وقد يتصل بخلية البكتيريا سوت واحد فقط على اتجاهين مختلفين وفي هذه الخلية تسمى مُتَقابِلُ السِّياطِ
النقل
وفي هذا الصدد، النقل داخل السوط ، العملية التي يتم من خلالها نقل الوحدات الفرعية المحورية ، والمستقبلات عبر الغشاء ، والبروتينات الأخرى لأعلى ولأسفل على طول السوط ، ضرورية لأداء السوط بشكل صحيح ، في كل من الحركة ونقل الإشارة.
مخططات ترتيب فلاجيلار
وفي السياق ذاته، على النقيض من ذلك، تحتوي اللولبيات على سوط ينشأ من أقطاب متقابلة للخلية، وتقع داخل الفضاء المحيطي كما يتضح من كسر الغشاء الخارجي ومؤخرًا بواسطة الفحص المجهري الإلكتروني . يؤدي دوران الخيوط بالنسبة لجسم الخلية إلى تحرك البكتيريا بأكملها للأمام في حركة تشبه المفتاح، حتى من خلال مادة لزجة بدرجة كافية لمنع مرور البكتيريا ذات الجلد الطبيعي.
ومن جهة أخرى، في أشكال معينة كبيرة من السلينوموناس ، يتم تنظيم أكثر من 30 سوطًا فرديًا خارج جسم الخلية، حيث يتم التواء حلزونيًا حول بعضها البعض لتشكيل بنية سميكة (يمكن رؤيتها بسهولة بواسطة المجهر الضوئي) تسمى «حافظة».
من جانب آخر، تمتلك البكتيريا البرمائية سوطًا واحدًا على كل من الطرفين المتقابلين (يعمل سوط واحد فقط في كل مرة، مما يسمح للبكتيريا بعكس مسارها بسرعة عن طريق تبديل السوط النشط).
كذلك، فلاجيللا عبارة عن حلزونات أعسر، ويتم تجميعها وتدويرها معًا فقط عند الدوران عكس اتجاه عقارب الساعة. عندما تنعكس بعض الدوارات في الاتجاه، تنفصل السوط وتبدأ الخلية في «الانقلاب». حتى لو كانت جميع الأسواط تدور في اتجاه عقارب الساعة، فمن المحتمل ألا تشكل حزمة، بسبب أسباب هندسية، وكذلك لأسباب هيدروديناميكية. قد يحدث مثل هذا «التقلب» في بعض الأحيان، مما يؤدي إلى تحطم الخلية على ما يبدو في مكانها، مما يؤدي إلى إعادة توجيه الخلية. يتم منع دوران السوط في اتجاه عقارب الساعة بواسطة مركبات كيميائية مواتية للخلية (مثل الطعام)، ولكن المحرك شديد التكيف مع هذا. لذلك، عند التحرك في اتجاه مواتٍ، يزداد تركيز الجاذب الكيميائي ويتم قمع «السقوط» باستمرار؛ ومع ذلك، عندما يكون اتجاه حركة الخلية غير مواتٍ (مثلًا، بعيدًا عن جاذب كيميائي)، لا يتم قمع الانهيارات وتحدث كثيرًا، مع احتمال إعادة توجيه الخلية في الاتجاه الصحيح.
من جانب آخر، في بعض Vibrio spp. (بشكل خاص Vibrio parahaemolyticus ) والبكتيريا البروتينية ذات الصلة مثل Aeromonas ، يتعايش نظامان سوطيان، باستخدام مجموعات مختلفة من الجينات وتدرجات أيونية مختلفة للطاقة. يتم التعبير عن الأسواط القطبية بشكل أساسي وتوفر الحركة في سائل الكتلة، في حين يتم التعبير عن السوط الجانبي عندما يواجه السوط القطبي مقاومة كبيرة للغاية. توفر هذه الحشود الحركية على الأسطح أو في السوائل اللزجة.
من جهة ثانية، يؤدي الدوران بعكس اتجاه عقارب الساعة لسوط قطبي أحادي إلى دفع الخلية إلى الأمام مع تأخر السوط خلفها، تمامًا مثل المفتاح الذي يتحرك داخل الفلين. في الواقع، الماء على النطاق المجهري شديد اللزوجة، ويختلف تمامًا عن تجربتنا اليومية للمياه.
علاوةً على ذلك، تحتوي البكتيريا أحادية الشعر على سوط واحد (مثلًا، ضمة الكوليرا).
ومن ناحية أخرى، للبكتيريا peritrichous سوط بارزة في جميع الاتجاهات (مثلًا، E. coli).
وفي هذا السياق، تحتوي البكتيريا Lophotrichous على الكثير من الأسواط الموجودة في نفس المكان على الأسطح البكتيرية والتي تعمل في تناسق لدفع البكتيريا في اتجاه واحد. في كثير من الحالات، تكون قواعد الأسواط المتعددة محاطة بمنطقة متخصصة من غشاء الخلية، تسمى العضية القطبية .
وفي هذا الصدد، الأنواع المختلفة من البكتيريا لها أعداد وترتيبات مختلفة من الأسواط.
وظيفة السياط
ومن ناحية أخرى، تساعد الخلية على الحركة حيث تدفعها للانتقال. فهي مثلًا توجد في النطفة، كما توجد لدى الخلية البكتيرية.
التطور والوقوع
وفي هذا السياق، سياط حقيقية النواة أو أهداب، وربما سمة الأجداد، وعلى نطاق واسع في جميع الفئات على وجه التقريب من حقيقيات النوى، كشرط الدائمة نسبيا، أو كمرحلة دورة الحياة سوطي (مثلًا، zoids ، الأمشاج ، الأبواغ الحيوانية السابحة ، والتي يمكن أن تنتج باستمرار أو ليس).
وفي هذا السياق، لا توجد الأسواط أو الأهداب تمامًا في بعض المجموعات ، ربما بسبب الخسارة بدلاً من كونها حالة بدائية. وقعت فقدان أهداب في الطحالب الحمراء ، وبعض الطحالب الخضراء (طحالب زيغنيمية)، وعاريات البذور باستثناء السيكاسيات و الجنكة ، كاسيات ، pennate الدياتومات ، وبعض apicomplexans ، بعض amoebozoans ، في الحيوانات المنوية من بعض metazoans ، والفطريات (باستثناء chytrids).
كذلك، وجدت على الحالة الأولى إما في خلايا متخصصة من الكائنات متعددة الخلايا (مثلًا، choanocytes من الإسفنج أو مهدبة ظهائر منmetazoans)، كما هو الحال في ciliates والكثير من حقيقيات النوى مع «حالة سوطية» (أو «monadoidمستوى التنظيم»، انظر فلاجيلاتا ، مجموعة اصطناعية).
من جهة ثانية، توجد مراحل دورة حياة سوطي في الكثير من المجموعات، مثلًا، الكثير من الطحالب الخضراء (الأبواغ الحيوانية السابحة والأمشاج الذكرية)، الطحلبيات (الأمشاج الذكرية)، البتيريدوفيت (الأمشاج الذكور)، وبعض عاريات البذور (السيكاسيات و الجنكة ، والأمشاج الذكرية)، تتمحور الدياتومات (الأمشاج الذكور)، الطحالب البني (الأبواغ الحيوانية السابحة والأمشاج)، الفطريات البيضية (الأبواغ الحيوانية السابحة assexual والأمشاج)، hyphochytrids (الأبواغ الحيوانية السابحة)، labyrinthulomycetes (الأبواغ الحيوانية السابحة)، وبعض apicomplexans (الأمشاج)، وبعض الراديولاريا (ربما الأمشاج)، المنخريات (الأمشاج)، plasmodiophoromycetes (الأبواغ الحيوانية السابحة والأمشاج)، myxogastrids (الأبواغ الحيوانية السابحة)، metazoans (الأمشاج الذكور)، وحيدة الخلية الفطريات (الأبواغ الحيوانية السابحة والأمشاج).
أنواع
كذلك، تم حتى الآن تمييز ثلاثة أنواع من الأسواط: البكتيرية، البدائية، وحقيقية النواة.
الاختلافات الرئيسية بين هذه الأنواع الثلاثة هي:
ومن جهة أخرى، تتشابه الأسواط الأثرية (الأركيلا) بشكل سطحي مع الأسواط البكتيرية، ولكنها تختلف في كثير من التفاصيل وتعتبر غير متجانسة.
من جهة ثانية، سوط حقيقيات النوى - تلك الخاصة بالخلايا الحيوانية، والنباتية، والخلايا الأولية - هي نتوءات خلوية معقدة تتقلب ذهابًا وإيابًا. يتم تصنيف سوط حقيقيات النوى جنبًا إلى جنب مع أهداب متحركة حقيقية النواة على أنها undulipodia للتأكيد على دورها الملحقالمتموج في الوظيفة الخلوية أو الحركة. الأهداب الأولية غير قابلة للحركة، وليست نواة؛ لديهم محور عصبي 9 + 0 مختلف هيكليًا بدلاً من محور عصبي 9 + 2 الموجود في كل من السوط والأهداب المتحركة.
من جهة ثانية، الأسواط البكتيرية عبارة عن خيوط حلزونية، لكل منهامحرك دوار في قاعدتها يمكن أن تدور في اتجاه عقارب الساعة أو عكس اتجاه عقارب الساعة أنها توفر نوعين من عدة أنواع من الحركة البكتيرية.
جرثومي
آلية
إضافةً إلى ذلك، يمتد كل من الأنابيب الدقيقة الخارجية التسعة المزدوجة زوجًا من أذرع داينين (ذراع «داخلي» و «خارجي») إلى الأنابيب الدقيقة المجاورة ؛ هذه تنتج القوة من خلال التحلل المائي ATP. يحتوي المحوار السوطي كذلك على مكبرات صوت شعاعية ، ومجمعات متعددة الببتيد تمتد من كل من المضاعفات التسعة للأنابيب الخارجية نحو الزوج المركزي ، مع «رأس» المتحدث مواجهًا للداخل. يُعتقد أن المتحدث الشعاعي متورط في تنظيم حركة السوط ، على الرغم من أن وظيفته وطريقة عمله لم يتم فهمهما بعد.
الهيكل الداخلي
وعلى صعيد آخر، السوط حقيقيات النوى عبارة عن حزمة من تسعة أزواجمدمجة من مضاعفات الأنابيب الدقيقة المحيطة بنبيبيين مركزيين منفردين. البنية المسماة "9 + 2" هي سمة من سمات جوهر سوط حقيقيات النوى المسمى محور عصبي .يوجد في قاعدة سوط حقيقيات النوى جسم قاعدي ، «الجفن» أو الجسيم الحركي ، وهو مركز تنظيم الأنابيب الدقيقة للأنابيب الدقيقة السوطية ويبلغ طوله نحو 500 نانومتر. الأجسام القاعدية متطابقة هيكليا مع المريكزات .يتم تغليف السوط داخل غشاء البلازما للخلية ، بحيث يمكن الوصول إلى الجزء الداخلي من السوط من خلال سيتوبلازمالخلية .
ومن جهة أخرى، إلى جانب الجسم المحوري والجسم القاعدي ، الثابت نسبيًا في التشكل ، فإن الهياكل الداخلية الأخرى للجهاز السوطي هي منطقة الانتقال (حيث يلتقي الجسم المحوري والجسم القاعدي) ونظام الجذر (الهياكل الدقيقة أو الليفية التي تمتد من الأجسام القاعدية إلى السيتوبلازم)، أكثر تنوعًا وفائدة كمؤشرات على العلاقات التطورية لحقيقيات النوى. الهياكل الأخرى ، الأكثر شيوعًا ، هي قضيب paraflagellar (أو paraxonemal)، والألياف R ، والألياف S. السطحية ، انظر أدناه للتراكيب.
عتيق
وفي هذا الصدد، الأسواط البكتيرية أكثر سمكًا من الأركيلا، والخيوط البكتيرية بها «أنبوب» مجوف كبير بالداخل بحيث يمكن للوحدات الفرعية السوطية أن تتدفق إلى داخل الشعيرة وتضاف عند الطرف ؛ الأركيلوم رقيق جدًا (12-15 نانومتر) للسماح بذلك.
وفي السياق ذاته، مزودة بمحركات سياط البكتيرية عن طريق تدفق H +أيونات (أو أحيانا نا + الأيونات)؛ يكاد يكون من المؤكد على وجه التقريب أن السوط الأثري مدعوم من ATP . وعزم الدوران لم يتم التعرف -generating الحركية التي القوى دوران السوط archaeal.
في هذا الإطار، إن البدائية التي يمتلكها بعض الأرخبيل تشبه بشكل سطحي السوط البكتيري. في الثمانينيات، كان يُعتقد أنهم متماثلون على أساس التشكل والسلوك الإجمالي. يتكون كل من الأسواط والأركيلا من خيوط تمتد خارج الخلية وتدور لدفع الخلية. السوط الأثري له هيكل فريد يفتقر إلى قناة مركزية.على غرار البلينات البكتيرية من النوع الرابع، فإن السوطات الأثرية (الأركايلينات) مصنوعة من ببتيدات الإشارة من الفئة 3 وتتم معالجتها بواسطة إنزيم يشبه الببتيداز من النوع الرابع. وعادة ما يتم تعديل archaellins بإضافة المرتبطة N glycans والتي هي ضرورية لتجميع السليم أو وظيفة.
علاوةً على ذلك، تشترك الكثير من مكونات الأسواط البكتيرية في تشابه التسلسل مع مكونات أنظمة الإفراز من النوع الثالث، لكن مكونات الأسواط البكتيرية والعرقية لا تشترك في أي تشابه في التسلسل. بدلاً من ذلك، تشترك بعض مكونات الأركيلا في التسلسل والتشابه المورفولوجي مع مكوناتالنوع الرابع من الشعيرات، والتي يتم تجميعها من خلال عمل أنظمة إفراز النوع الثاني (لا تتسق تسمية أنظمة إفراز البروتين والبروتين).
حقيقيات النوى
كذلك، تنمو الأسواط البكتيرية عن طريق إضافة وحدات فرعية من السوط في الطرف ؛ تنمو الأسواط الأثرية عن طريق إضافة وحدات فرعية إلى القاعدة.
في هذا الإطار، ويمكن لهذه الخلافات يعني أن سياط البكتيرية وarchaella يمكن أن يكون حالة كلاسيكية من البيولوجي القياس، أو تطور متقاربة ، وليس التماثل . ومع ذلك ، بالمقارنة مع عقود من الدراسة التيحظيت بتغطية إعلامية جيدة للأسواط البكتيرية (مثلًا بواسطة هوارد بيرج)، لم تظهر الأركيلا إلا مؤخرًا بدأت في جذب الاهتمام العلمي.
ومن ناحية أخرى، في حين أن الخلايا البكتيرية غالبًا ما تحتوي على الكثير من الخيوط السوطية، والتي يدور كل منها بشكل مستقل، فإن السوط البدائي يتكون من حزمة من الكثير من الخيوط التي تدور كتجمع واحد.
وفي هذا السياق، كشفت الاكتشافات في التسعينيات عن الكثير من الاختلافات التفصيلية بين الأسواط البدائية والبكتيرية. وتشمل هذه:
مزلق: سوط يتدحرج على الركيزة
كذلك، ديناميكية غير متجانسة: سوط ذو أنماط مختلفة من الضرب (عادة مع سوط يعمل في التقاط الطعام والآخر يعمل في الانزلاق أو التثبيت أو الدفع أو «التوجيه»)
فلاجيلا مقابل أهداب
ومن جهة أخرى، تولد أنماط الضرب المنتظمة لأهداب حقيقية النواة والأسواط حركة على المستوى الخلوي. تتراوح الأمثلة من دفع الخلايا المفردة مثل سباحة الحيوانات المنوية إلى نقل السائل على طول طبقة ثابتة من الخلايا كما هو الحال في الجهاز التنفسي .
وفي هذا السياق، نمط الضرب من «سوط» و «سيلوم» حقيقيات النوى ، وهو تمييز تقليدي قبل معرفة بنية الاثنين.
ومن ناحية أخرى، على الرغم من أن أهداب وسوط حقيقيات النوى متماثلان في النهاية ، إلا أنهما يُصنفان أحيانًا حسب نمط حركتهما ، وهو تقليد يعود إلى ما قبل معرفة هياكلها. في حالة السوط ، غالبًا ما تكون الحركة مستوية وشبيهة بالموجة ، بينما تؤدي الأهداب المتحركة غالبًا حركة ثلاثية الأبعاد أكثر تعقيدًا بضربة طاقة واسترداد. شكل تقليدي آخر للتمييز هو عدد 9 + 2 عضيات على الخلية.
التصنيف
سوط عظمي: مع صف واحد من الشعر
وعلى صعيد آخر، الشعر ثنائي الجزء: ذو منطقتين. يحدث فيCryptophyceae ، Prasinophyceae ، وبعض سوطيات متغايرة
وعلى صعيد آخر، يتم استخدام عدد من المصطلحات المتعلقة بالسوط أو الأهداب لوصف حقيقيات النوى. وفقًا السطحية الموجودة ، قد يكون الأسواط:
ومن جهة أخرى، ذات الشعر القاسي (= الشعر الأنبوبي ، الريترونيمات ، الضرع بالمعنى الضيق)، مقسم إلى:
وعلى صعيد آخر، شعر ثلاثي (= سترامينيبيلوس): ذو ثلاث مناطق (قاعدة ، عمود أنبوبي ، وشعر طرفي واحد أو أكثر). يحدث في أغلبHeterokonta
ومن ناحية أخرى، ذات الشعر الناعم (= الشعر غير الأنبوبي أو البسيط): يحدث في Euglenophyceae ، Dinoflagellata ، بعض Haptophyceae (Pavlovales)
إضافةً إلى ذلك، السوط المصع (= سوط أملس ، لا كرونماتي): بدون شعر ، مثلًا ، في Opisthokonta
وعلى صعيد آخر، سوط مشعر (= بهرج ، وميض ، سوط الجنبة): مع الشعر (= mastigonemes sensu lato)، مقسم إلى:
الهيكل والتكوين
كذلك، يتكون السوط البكتيري من بروتين فلاجيلين. شكله عبارة عن أنبوب مجوف بسمك 20 نانومتر. إنه حلزوني وله منحنى حاد خارج الغشاء الخارجي؛ يسمح هذا «الخطاف» لمحور اللولب بالإشارة بعيدًا عن الخلية مباشرةً. يمتد عمود بين الخطاف والجسم القاعدي، ويمر عبر حلقات البروتين في غشاء الخلية التي تعمل كمحامل. الكائنات موجبة الجرام لها اثنتان من حلقات الجسم القاعدية هذه، واحدة في طبقة الببتيدوغليكان والأخرى في غشاء البلازما.الكائنات سالبة الجرام لها أربع حلقات من هذا القبيل: الحلقة L ترتبط بـعديدات السكاريد الدهنية، ترتبط الحلقة Pبطبقة الببتيدوغليكان، والحلقة M مضمنة في غشاء البلازما، والحلقة S متصلة مباشرة بغشاء البلازما. ينتهي الخيط ببروتين متدرج.
في هذا الإطار، الخيط السوطي هو المسمار اللولبي الطويل الذي يدفع البكتيريا عند تدويرها بواسطة المحرك، من خلال الخطاف. في أغلب البكتيريا التي تمت دراستها، بما في ذلك الإشريكية القولونية سالبة الجرام ، السالمونيلا التيفية، Caulobacter crescentus ، و Vibrio alginolyticus ، يتكون الخيط من 11 خيطًا أوليًا متوازيًا على وجه التقريب مع محور الشعيرة. كل خيوط أولية عبارة عن سلسلة من سلاسل البروتين الترادفية. ومع ذلك، تحتوي العطيفة الصائميةعلى سبعة خيوط أولية.
في هذا الإطار، يمتلك الجسم القاعدي الكثير من السمات المشتركة مع بعض أنواع المسام الإفرازية، مثل «السدادة» المجوفة التي تشبه القضيب في مراكزها الممتدة عبر غشاء البلازما. تقدم أوجه التشابه بين الأسواط البكتيرية وبنى النظام الإفرازي البكتيري والبروتينات أدلة علمية تدعم النظرية القائلة بأن الأسواط البكتيرية تطورت من نظام الإفراز من النوع الثالث.
uniflagellated: على سبيل المثال ، معظم Opisthokonta
subakrokont: خلايا ذات سوط مُدرج تحت السوط
- triflagellated: مثلًا ، الأمشاج لبعض فورامينيفيرا
- quadriflagellated: مثلًا ، بعض Prasinophyceae ، Collodictyonidae
- octoflagellated: مثلًا ، بعض Diplomonada ، بعض Prasinophyceae
akrokont: خلايا مع سوط يتم إدخالها بشكل قمي
ومن ناحية أخرى، opisthokont: الخلايا ذات السوط الذي تم إدخاله في الخلف ، مثلًا ، في Opisthokonta (Vischer ، 1945). في Haptophyceae ، يتم إدخال الأسواط بشكل جانبي إلى النهاية ، ولكن يتم توجيهها للخلف أثناء السباحة السريعة.
كذلك، biflagellated: مثلًا، كل دواميات السياط، الأمشاج من طحالب كارية ، أغلب النباتات الطحلبية وبعض metazoans
بحسب مكان إدخال السوط:
من جهة ثانية، multiflagellated: مثلًا ، Opalinata ، Ciliophora ، Stephanopogon ، Parabasalida ، Hemimastigophora ، Caryoblastea ، Multicilia ، الأمشاج (أو zoids) من Oedogoniales (Chlorophyta)، وبعض النباتاتpteridophytes وبعض عاريات البذور
سوط بانتونيماتيك: مع صفين من الشعر
في هذا الإطار، acronematic: سوط بشعر واحد أو ضرع طرفي أو شعر سوطي (مثلًا ، bodonids)؛ يستعمل بعض المؤلفين هذا المصطلح كمرادف للجلد
pleurokont: خلايا ذات سوط يتم إدخالها جانبياً
حسب نمط الضرب:
المجسم
من جانب آخر، أثناء تجميع السوط، تمر مكونات السوط عبر النوى المجوفة للجسم القاعدي والخيوط الناشئة. أثناء التجميع، تضاف مكونات البروتين عند الطرف السوطي بدلاً من القاعدة. في المختبر ، تتجمع الخيوط السوطية تلقائيًا في محلول يحتوي على سوط نقي كبروتين وحيد.
تطور
من جانب آخر، تشترك 10 مكونات بروتينية على الأقل في السوط البكتيري في البروتينات المتماثلة مع نظام الإفراز من النوع الثالث (T3SS)، ومن ثم من المحتمل أن أحدهما قد تطور عن الآخر. نظرًا لأن T3SS يحتوي على عدد مماثل من المكونات مثل الجهاز السوطي (نحو 25 بروتينًا)، فمن الصعب تحديد أي واحد تم تطويره أولاً. ومع ذلك، يبدو أن النظام السوطي يشتمل على المزيد من البروتينات بشكل عام، بما في ذلك الكثير من المنظمين والمرافقين، ومن ثم فقد قيل أن الأسواط تطورت من T3SS. ومع ذلك، فقد تم اقتراح أن السوط ربما يكون قد تطور أولاً أو أن الهيكلين قد تطور بشكل متوازٍ. حاجة الكائنات الحية وحيدة الخلية المبكرة إلى الحركة يدعم (التنقل) أنه سيتم اختيار الأسواط الأكثر حركة من خلال التطور أولاً، ولكن يمكن اعتبار T3SS المتطور من السوط «تطورًا اختزاليًا»، ولا يتلقى أي دعم طوبولوجي من الأشجارالتطورية . الفرضية القائلة بأن الهيكلين تطورتا بشكل منفصل عن سلف مشترك تفسر أوجه التشابه بين البروتينات بين الهيكلين، إلى جانب تنوعها الوظيفي.
مع المقاييس: على سبيل المثال ، Prasinophyceae
وفي هذا الصدد، بحسب عدد الأسواط ، قد تكون الخلايا (تذكر أن بعض المؤلفين يستعملون «مهدب» بدلاً من «جلد»:
- مع أشواك: مثلًا ، بعض الطحالب البنية
- مع غشاء متموجة: مثلًا، بعض ذوات منشأ الحركة ، وبعض parabasalids
- مع خرطوم (نتوء يشبه الجذع للخلية): مثلًا ، apusomonads ، بعض bodonids
المصطلح
علاوةً على ذلك، بهدف التأكيد على التمييز بين الأسواط البكتيرية والأهدابحقيقية النواة والأسواط ، حاول بعض المؤلفين استبدال اسم هاتين البُنى حقيقية النواة بـ " undulipodia " (مثلًا ، جميع الأوراق التي كتبها Margulis منذ السبعينيات) أو "cilia" لكليهما (مثلًا ، Hülsmann ، 1992 ؛ Adl et al. 2012 ؛ أغلب أوراق Cavalier-Smith)، والحفاظ على «الأسواط» للبنية البكتيرية. ومع ذلك ، فإن الاستخدام التمييزي لمصطلحي «أهداب» و «سوط» لحقيقيات النوى المعتمدين في هذه المقالة لا يزال شائعًا (مثلًا ، أندرسن وآخرون ، 1991 ؛ ليدبيتر وآخرون ، 2000).
إيزوديناميكي: الضرب بالسوط بنفس الأنماط
من جهة ثانية، heterokont: مصطلح قدمه لوثر (1899) للإشارة إلى Xanthophyceae ، بسبب زوج من الأسواط ذات الطول غير المتكافئ. لقد اتخذ معنى محددًا في الإشارة إلى الخلايا ذات السوط الأمامي من سترامينيبلوس (مع أضلاع الضرع الثلاثية ، في صف واحد أو صفين) وسوط خلفي عادة ما يكون أملس. كما أنها تستعمل للإشارة إلى الصنف Heterokonta
وعلى صعيد آخر، stephanokont: الخلايا ذات تاج السوط بالقرب من نهايتها الأمامية ، مثلًا ، الأمشاج وجراثيم Oedogoniales ، جراثيم بعض Bryopsidales . المصطلح الذي قدمه Blackman & Tansley (1902) للإشارة إلى Oedogoniales
تركيب السوط الأساسي
المصطلحات الأخرى المتعلقة بنوع السوط:
وفي السياق ذاته، anisokont: الخلايا مع سياط من عدم المساواة في طول، مثلًا، بعض من الطحالب وPrasinophyceae
في هذا الإطار، akont: خلايا بدون أسواط. كما كان يستعمل للإشارة إلى مجموعات تصنيفية، كما Aconta أو Akonta: وطحالب زيغنيمية والعصوية (أولتمان، 1904)، أوRhodophyceae (كريستنسن، 1962)
ومن جهة أخرى، isokont: خلايا ذات أسواط متساوية الطول. كما تم استخدامه سابقًا للإشارة إلى الكلوروفيتا
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟