سينثاز بيتا-كيتوأسيل-ACP
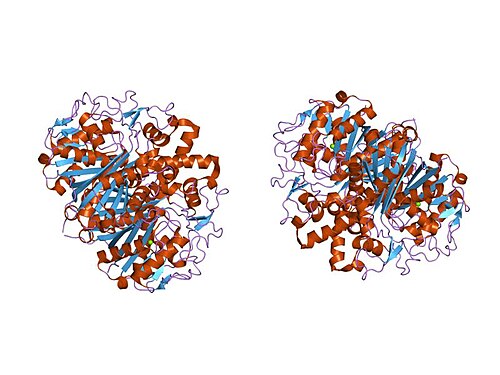
في البداية، في البيولوجيا الجزيئية ، بيتا-كيتوأسيل-ACP سينثاز هو إنزيم يشارك في تخليق الأحماض الدهنية في الجسم . يتعامل عادةً مع مالونيل-CoA كمصدر للكربون لإطالة أنواع الأسيل المرتبطة بـالبروتين حامل الأسيل ACP ، مما يؤدي إلى تكوين أنواع بيتا-كيتوأسيل مرتبطة بـ ACP مثل أسيتوأسيتيل-ACP . وفيما يلي تفاصيل أوسع عن ذلك.
ومن جهة أخرى، سينثاز بيتا كيتوأسيل-ACP هو عبارة عن إنزيم محفوظ للغاية يوجد في جميع أشكال الحياة على الأرض على وجه التقريب كمجال في سينسيز الأحماض الدهنية (FAS). يوجد سينسيز الأحماض الدهنية في نوعين ، مسمى على نحو مناسب من النوع الأول والثاني. في الحيوانات والفطريات وحقيقيات النوى السفلية ، تشكل تركيبات بيتا كيتوأسيل-ACP أحد المجالات التحفيزية للبروتينات الكبيرة متعددة الوظائف (النوع الأول) ، بينما في أغلب بدائيات النوى وكذلك في البلاستيدات والميتوكوندريا ، تكون تركيبات بيتا كيتوأسيل-ACP عبارة عن سلاسل بروتينية منفصلة تتكون عادةً من النوع الثاني. يحفز بيتا- كيتوأسيل-ACPI سينثاز III ، ربما الأكثر شهرة بين عائلة الإنزيمات هذه ، تكاثف كلايسين بين أسيتيل-CoA ومالونيل-ACP . توضح الصورة أدناه كيفية احتواء مساعد الأنزيم-أ في الموقع النشط كركيزة من سينثاز III.
ACP هو بروتين حامل الأسيل:
وفي السياق ذاته، تم العثور على سينسيز بيتا-كيتوأسيل-ACP كمكون في عدد من الأنظمة الأنزيمية ، بما في ذلك إنزيم الحمض الدهني (FAS) ؛ سينثاس حمض 6 ميثيساليسيليك متعدد الوظائف (MSAS) من سلالة البنسليوم ، والذي يشارك في التخليق الحيوي لمضاد حيوي متعدد الكيتيدات ؛ أنظمة إنزيم بوليكيتيد المضاد الحيوي سينثاز ؛ بروتين Emericella nidulans متعدد الوظائف (دبليو أيه) ، الذي يشارك في التخليق الحيوي للصباغ الأخضر كونيدال ؛ عقدة بروتين عقدة ريزوبيوم ، والتي من المحتمل أن تعمل بمثابة سينسيز بيتا كيتواسيل في تخليق سلسلة عقدة الأسيل الدهنية لعامل العقدة ؛ وبروتين الميتوكوندريا في الخميرة CEM1.
من جهة ثانية، تحفز تركيبات سينثاز بيتا-كيتوأسيل- أيه سي بي I ، و II فقط تفاعلات أسيل-ACP مع مالونيل-ACP. المركب المركب الأول والثاني قادران على إنتاج سلسلة طويلة من ACPs (بروتين حامل الأسيل). كلاهما فعال حتى أسيل-ACPs ذو 14 سلسلة كربون ، وعند هذه النقطة يكون سينثاز بيتا-كيتواسيل- إيه سي بي II هو الخيار الأكثر كفاءة لمزيد من إضافات الكربون. يحفز النوع الأول تركيب الأحماض الدهنية جميع التفاعلات اللازمة لتكوين حمض البالمتيك ، وهي وظيفة ضرورية في الحيوانات لعمليات التمثيل الغذائي ، والتي تتضمن إحداها تكوين السفينغوزينات (العمليات الهضمية).
الأهمية السريرية
ومن جهة أخرى، هذه الأنواع من الأدوية وثيقة الصلة بالموضوع. مثلًا ، كان "واي. بستيس" العامل الرئيسي في طاعون جستنيان ، والموت الأسود ، والطاعون الحديث. حتى خلال السنوات الخمس الماضية ، شهدت كل من الصين وبيرو ومدغشقر تفشي عدوى بكتيريا واي. بستيس Y. pestis . إذا لم يتم علاجه في غضون 24 ساعة ، فإنه عادة ما يؤدي إلى الوفاة. علاوة على ذلك ، هناك قلق من إمكانية استخدامه الآن كسلاح حرب بيولوجية محتمل.
كذلك، لسوء الحظ فإن الكثير من الأدوية التي تستهدف مركبات بيتا-كيتوأسيل-سينثاز في بدائيات النواة تحمل الكثير من الآثار الجانبية . بالنظر إلى أوجه التشابه بين التركيبات الكيتونية لبدائيات النواة وتلك الموجودة في الميتوكوندريا ، فإن هذه الأنواع من الأدوية تميل كذلك إلى العمل عن غير قصد (أعراض جانبية) على تركيبات الميتوكوندريا ، مما يؤدي إلى الكثير من العواقب البيولوجية للبشر.
من جهة ثانية، الأنواع المختلفة من تركيبات بيتا-كيتوأسيل-ACP في النوع الثاني من تخليق الأحماض الدهنية FAS ، التي تسمى تركيبات FabB و FabF و FabH. يحفز FabH تفاعل كيتوأسيل سنثاز الجوهري مع مالونيل- ACP و أسيتيل-CoA. كما تحفز FabB و FabF التفاعلات الأخرى ذات الصلة. نظرًا لأن وظيفتها ضرورية للوظيفة البيولوجية المناسبة المحيطة بتخليق البروتين الدهني والفوسفوليبيد وعديد من السكاريد الدهني ، فقد أصبحوا هدفًا في تطوير الأدوية المضادة للبكتيريا. من أجل التكيف مع بيئتها ، تقوم البكتيريا بتغيير تكوين الفوسفوليبيد لأغشيتها. وبالتالي قد يكون تثبيط هذا المسار نقطة قوة في تعطيل تكاثر البكتيريا . من خلال دراسة اليرسينيا الطاعونية ، التي تسبب الطاعون الدبلي والالتهاب الرئوي وتسمم الدم ، أظهر الباحثون أن FabB و FabF و FabH يمكن نظريًا تثبيطها بواسطة نفس الدواء بسبب أوجه التشابه في مواقع الارتباط الخاصة بهم. ومع ذلك لم يتم تطوير هذا الدواء بعد. سيرولين ، وهو جزيء يبدو أنه يثبط عن طريق محاكاة "حالة انتقال التكثيف" يمكنه فقط تثبيط B أو F ، ولكن ليس H. جزيء آخر ، وهو ثيولاكتومايسين thiolactomycin ، الذي يشابه مالونيل- ACP في الموقع النشط ، يمكنه فقط تثبيط FabB. وأخيرًا يمكن استخدام بلاتنسيميسين كذلك للمضادات الحيوية بسبب تثبيطه لـ FabF.
الوظيفة البيولوجية
ومن ناحية أخرى، تتمثل الوظيفة الرئيسية لـ بيتا-كيتوأسيل-ACP سينثاز في إنتاج الأحماض الدهنية بأطوال مختلفة لاستخدامها من قبل الكائن الحي. وتشمل هذه الاستخدامات تخزين الطاقة وإنشاء أغشية الخلايا . يمكن كذلك استخدام الأحماض الدهنية في تصنيع البروستاجلاندين ، والفوسفوليبيد ، والفيتامينات ، من بين أشياء أخرى كثيرة. علاوة على ذلك ، يستعمل حمض البالمتيك ، الذي يتم تكوينه بواسطة بيتا كيتوأسيل سينثاز على النوع الأول لتركيب أحماض دهنية ، في عدد من الإمكانات البيولوجية. وهو مقدمة لكل من الأحماض الدهنية والبالميتوليك. يمكن استخدام البالميتوليك لاحقًا لإنشاء عدد من الأحماض الدهنية الأخرى. يستعمل حمض البالمتيك كذلك في تصنيع السفينجوزينات التي تلعب دورًا في أغشية الخلايا.
البنية
علاوةً على ذلك، في الحيوانات وفي بدائيات النوى ، بيتا-كيتوأسيل-ACP سينثاز هو مجال على النوع الأول لتركيب الأحماض الدهنية ، وهو مركب إنزيمي كبير يحتوي على مجالات متعددة لتحفيز تفاعلات مختلفة متعددة. بشكل مشابه ، تم العثور على سينثاز بيتا-كيتواسيل- أيه سي بي في النباتات من النوع تخليق الأحماض الدهنية II ؛ لاحظ أنه تم توثيق التركيبات في النباتات بحيث تحتوي على مجموعة من خصائص الركيزة . يشير وجود تركيبات كيتوأسيل مماثلة موجودة في جميع الكائنات الحية إلى سلف مشترك . أظهر الفحص الإضافي لتخليق بيتا كيتواسيل- إيه سي بي الأول والثاني للإشريكية القولونية أن كلاهما متماثل ، لكن سينثاز II أكبر قليلاً. ومع ذلك ، على الرغم من أن كلاهما يشارك في استقلاب الأحماض الدهنية ، إلا أنهما يمتلكان كذلك بنية أولية شديدة التباين. في سينثاز II ، تتكون كل وحدة فرعية من ورقة مطوية بيتا خماسية الجديلة محاطة بعدة حلزونات ألفا ، كما هو موضح في الصورة على اليسار. المواقع النشطة قريبة نسبيًا ، متباعدة فقط بمسافة 25 أنجستروم ، وتتكون في الغالب من جيب كاره للماء . اقترحت بعض التجارب كذلك وجود "أنفاق نقل الأحماض الدهنية" داخل مجال سينسيز بيتا-كيتوأسيل- ACP والتي تؤدي إلى واحد من الكثير من "تجاويف الأحماض الدهنية" ، والتي تعمل أساسًا كموقع نشط.
وفي هذا السياق، يحتوي سينثاز بيتا-كيتواسيل على مجالين من البروتين . يقع الموقع النشط بين المجالات N- وC- النهايتين . يحتوي مجال النهاية N- على أغلب الهياكل المشاركة في تكوين ديمر وأيضًا موقع سيستاين النشط . تساهم الأطراف الباقية من كلا المجالين في ربط الركيزة والتحفيز
الآلية
كذلك، آلية بيتا-كيلوأسيل-سينثاز هي موضوع نقاش بين الكيميائيين. يتفق الكثيرون على أن Cys171 من الموقع النشط يهاجم كربونيل أسيتيل- ACP ، ومثل أغلب الإنزيمات ، يثبّت الوسيط مع الأطراف الأخرى في الموقع النشط. يتم التخلص من ACP في وقت لاحق ، ويقوم بإخراج His311 في هذه العملية. ثم يتم تجديد ثيوستر مع السيستين في الموقع النشط. يؤدي نزع الكربوكسيل عن مالونيل-CoA الموجود كذلك في الموقع النشط إلى إنشاء انولات ، والذي تم تثبيته بواسطة His311 و His345. يتحول أنولات إلى كاربأنيون يهاجم ثيواستر من مجمع إنزيم الأسيتيل. تتكهن بعض المصادر بأن جزيء الماء المنشط يكون موجودا كذلك في الموقع النشط كوسيلة لترطيب ثاني أكسيد الكربون المنطلق أو لمهاجمة الكربون C3 لـ مالونيل-CoA . هناك آلية مقترحة أخرى تنظر في إنشاء حالة انتقال رباعي السطوح . تأتي القوة الدافعة للتفاعل من نزع الكربوكسيل من مالونيل-ACP ؛ تأتي الطاقة الملتقطة في هذه الرابطة تقنيًا من ATP ، وهو ما يستعمل في البداية لكربوكسيلات أسيتيل-CoA لتحويلها إلي مالونيل-CoA.
التطبيقات الصناعية
وفي هذا الصدد، تشمل الجهود الأخيرة في الهندسة الحيوية هندسة بروتينات تخليق الأحماض الدهنية FAS ، والتي تشمل مجالات سينثاز- بيتا-كيتواسيل-ACP ، من أجل تفضيل توليف سلاسل الكربون المتفرعة كمصدر للطاقة المتجددة . تحتوي سلاسل الكربون المتفرعة على قدر أكبر من الطاقة ويمكن استخدامها في درجات الحرارة الباردة بسبب انخفاض نقطة التجمد لها. باستخدام الإشريكية كولي E. coli ككائن مفضل ، استبدل المهندسون مجال FabH الداخلي على FAS ، والذي يفضل السلاسل غير المتفرعة ، مع إصدارات FabH التي تفضل التفرع نظرًا لخصوصية ركائزها العالية لـجزيئات أسيل-ACP المتفرعة.
- أنظر كذلك
- إنزيم أكسيد النيتريك سينثاز البطاني
- سينثاز بوليكيتيد
- سينثاز بيتا-كيتواسيل- إيه سي بي I
- سينثاز بيتا-كيتواسيل- إيه سي بي II
- سينثاز بيتا-كيتواسيل- أيه سي بي III
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟