شجرة المحتد
المحتويات
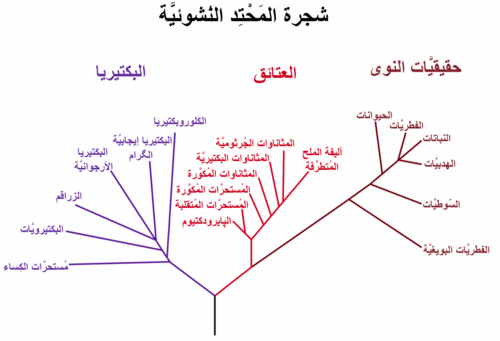
بدايةً، شجرة المَحْتِد أو شجرة التطور شجرة تُظهر العلاقات التطورية بين مختلف الأنواع الحيوية أو مختلف الكيانات الحية التي يعتقد بأنها تمتلك أصلاً مشتركاً. تمثل كل عقدة مع تفرعاتها في شجرة المحتد السلف المشترك الأحدث most recent common ancestor لما يتفرع عنه، وأطوال الفروع تمثل تقديرات زمنية. كل عقدة تدعى وحدة أصنوفية taxonomic unit. العقد الداخلية تدعى عادة عقد أصنوفية افتراضية (HTUs) لأنها لا يمكن ملاحظتها بشكل مباشر. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
بناء شجرة تطور السلالات
- يمكن تقييم أساليب بناء الأشجار على أساس عدة معايير:
- الكفاءة (كم من الوقت يستغرق حساب الإجابة؟ وكم الذاكرة التي تحتاجها؟)
- الطاقة (هل تستعمل البيانات استخداماً جيداً، أم تُهدر المعلومات؟)
وفي هذا السياق، قابلية الدحض (هل تنبهنا عندما يكون استخدامها غير مجدٍ؟ أي عند انتهاك الافتراضات؟)
وعلى صعيد آخر، الاتساق (هل سنحصل على نفس الإجابة مراراً وتكراراً إن حصلنا في كل مرة على بيانات مختلفة لنفس النموذج؟)
من جهة ثانية، تُنشأ أشجار تطور السلالات المكونة من عدد غير بديهي من تسلسل المدخلات باستخدام أساليب علم تطور السلالات الحسابي. تعتبر أساليب مصفوفة المسافة، مثل الارتباط المتجاور أو طريقة UPGMA، التي تحسب المسافة الجينية من تراصف السلسلة المتعدد أبسط الطرق من ناحية التنفيذ. ولكنها لا تستند على نموذج تطوري. تقوم الكثير من أساليب تراصف التسلسل، كبرنامج كلوستال مثلاً، بإنشاء أشجار تطور السلالات باستخدام الخوارزميات الأكثر بساطة (أي تلك المستندة إلى المسافة) لإنشاء هذه الأشجار. وهناك طريقة أخرى بسيطة لحساب شجرة تطور السلالات، والتي تدعى الاقتصاد الأقصى أو Maximum Parismony. ولكنها تشتمل على نموذجٍ ضمني للتطور. تستعمل الأساليب الأكثر تقدماً معيار الأمثلية لتقدير الاحتمال، غالباً عن طريق استدلال بايزي، وتطبق نموذجاً واضحاً للتطور لتقدير شجرة تطور السلالات. إن تحديد شجرة التطور المثلى باستخدام الكثير من هذه التقنيات هو مسألة NP صعبة. لذلك تُستعمل طرق الاستثمال والحدس المهني جنباً إلى جنب مع وظائف تصحيح الشجرة لتحديد إن كانت الشجرة جيدة ومناسبة للبيانات.
علاوةً على ذلك، حصلت تقنيات بناء أشجار التطور على اهتمام علماء الرياضيات. وبالإمكان كذلك بناء الأشجار باستخدام نظرية T.
وفي السياق ذاته، القوة (هل تتعامل بشكل جيد مع الانتهاكات التي تتعارض مع افتراضات النموذج الأساسي؟)
أنواع خاصة من أشجار تطور السلالات
إضافةً إلى ذلك، وهناك شبكة تطور السلالات، والتي لا تعني بالضرورة شجرة تطور، بل هي رسم بياني أكثر عمومية، أو رسم بياني لا حلقي موجه في الشبكات ذات الجذور. وتُستعمل للتغلب على بعض القيود الملازمة للأشجار.
كذلك، إن الرسم الشجري هو اسم عام للشجرة، سواء أكانت شجرة سلالات تطورية أم لا، وبالتالي هو اسم عامٌ كذلك للتمثيل البياني لشجرة تطور السلالات.
كذلك، يمثل مخطط النسل نمطاً تفرعياً فحسب. أي أن امتدادات فروعه لا تمثل زمناً أو مقداراً نسبياً من تغير سمة ما، كما أن العقد الداخلية لا تمثل أسلافاً.
وفي هذا الصدد، يُعد مخطط المغزل (والذي يُسمى غالباً رسم روميوجرام على اسم عالم الحفريات الأمريكي ألفريد رومر) تمثيلاً لتطور ووفرة الأصناف المختلفة عبر الزمن، ولكنه ليس شجرة تطورية. أما Dahlgrenogram فهو رسم بياني يمثل مقطعاً عرضياً من شجرة تطور السلالات.
علاوةً على ذلك، أما الـ phylogram، فهي عبارة عن شجرة تطور السلالات التي تملك امتدادات فرعية تتناسب مع مقدار تغير سمة ما. والكرونوغرام عبارة عن شجرة تطور السلالات التي تمثل الزمن بوضوح خلال امتداداتها الفرعية.
الشجرة ذات الجذر (الأصل) المشترك
ومن جهة أخرى، الشجرة ذات الأصل المشترك (انظر الرسومات في الأعلى) هي شجرة موجّهة ذات نقطة التقاء فريدة -الجذر- والتي تقابل السلف المشترك الأوّل الذي (عادةً ما يتم اعتباره) الأصل المشترك الأحدث لجميع الكيانات الحيّة الموجودة على فروع وأوراق الشجرة التطوريّة. لا تملك عقدة الأصل المشترك عقدة أصلية، ولكنها بمثابة الأصل لجميع العقد الأخرى في الشجرة التطوّريّة. وبالتالي فإنّ الجذر هو عقدة من الدرجة 2 بينما العقد الداخلية الأخرى لديها درجة لا تقل عن 3 (حيث تشير «درجة» هنا إلى العدد الإجمالي للخطوط الواردة والصادرة للعقدة).
وعلى صعيد آخر، تتمثّل الطريقة الأكثر شيوعًا لوضع الجذر (الأصل) للشجرة التطوّريّة باستخدام مجموعة خارجية غير مثيرة للجدل بمعنى أن تكون قريبة بدرجة كافية للسماح بالاستدلال عن طريق بيانات السمات أو التسلسل الجزيئي، ولكن بالمقابل بعيدة بدرجة كافية لتكون مجموعة خارجية واضحة.
التاريخ
ومن جهة أخرى، مصطلح phylogenetic «متعلق بتَطَوُّرِ السُّلاَلاَت»، أو phylogeny «علمُ تَطَوُّرِ السُّلاَلاَت»، مشتق من الكلمتين اليونانيتين القديمتين φῦλονالتي تلفظ (phûlon)، بمعنى «العرق، والنسب»، و γένεσις التي تلفظ (génesis)، بمعنى «الأصل، المصدر».
في هذا الإطار، نشأت فكرة "شجرة الحياة" من المفاهيم القديمة للتعاقب السلّمي للكائنات الحيّة من الأشكال السفلى للحياة إلى الأشكال العليا (كما في سلسلة الكينونة العظمى، أو سلسلة الوجود). تتضمن التصوّرات المبكّرة لشجرة الحياة «المتفرّعة» كذلك «مخططًا قديمًا» يوضّح العلاقات الجيولوجية بين النباتات والحيوانات تمّ وضعه من قبل إدوارد هيتشكوك في كتابه الجيولوجيا البسيطة (الذي نشر في طبعته الأولى: 1840).
الأنواع
وفي هذا الصدد، قام تشارلز داروين (1859) كذلك بوضع واحد من الرسوم التوضيحية الأولى ودَعَمَ مفهوم «شجرة التطوّر» وذلك في كتابه «أصل الأنواع». لا يزال علماء الأحياء التطوّرية -بعد أكثر من قرن من الزمان على نشر الكتاب- يستعملون المخطّطات الشجريّة لتصوير التطوّر، لأنّها تنقل المفهوم القائل بأنّ التكاثر يحدث من خلال التقسيم التكيفي وشبه العشوائي للسلالات بفعّاليّة عالية. أصبح تصنيف الأنواع أقل جموداً وأكثر ديناميكية مع مرور الزمن.
شجرة التطور بلا جذر (أصل) مشترك
في هذا الإطار، توضّح الأشجار التي لا تحوي على جذر (أصل) مشترك العلاقة بين العقد دون وضع افتراضات حول نسبها. فهذا النوع من أشجار التطور لا يتطلّب أن يكون الأصل معروفًا أو مستنتجًا. يمكن دائمًا أن تنتج الأشجار التي لا تحوي أصلاً مشتركاً عن الأشجار ذات الأصل المشترك بحذف الأصل. لكن، وعلى النقيض من ذلك، فإنّ استنباط الأصل لشجرة لا تملك أصلاً مشتركاً يتطلّب بعض الوسائل لتحديده. ويتمّ ذلك عادةً عن طريق تضمين مجموعة خارجيّة في بيانات الإدخال وبذلك يكون الأصل بين المجموعة الخارجية وباقي الأصناف الموجودة في الشجرة بالضرورة، أو عن طريق تقديم افتراضات إضافيّة حول المعدّلات النسبية للتطور في كلّ فرع، مثل التطبيق فرضيّة الساعة الجزيئية.
حدود تحليل تطور السلالات
كذلك، وهناك كذلك مشاكلٌ عند إجراء تحليل على نوع واحد من السمات، مثل مورثة أو بروتين واحد، أو عند التحليل المورفولوجي. ويحدث ذلك لأن أشجار تطور السلالات التي يتم بناؤها من مصدر بيانات آخر غير ذي صلة تختلف غالباً عن الأولى. وبالتالي هناك حاجة ماسة إلى أخذ الحيطة والحذر عند استنتاج علاقات تطور السلالات بين الأنواع. وينطبق ذلك بدرجة كبيرة على المواد الوراثية التي تخضع لنقل الجينات الجانبي وتخليق توافقات جينية جديدة، فقد تمتلك الأنماط الفردانية المختلفة تواريخَ مختلفة كذلك. في هذه الأنواع من التحليل، تكون الشجرة الناتجة عن تحليل نسبي لجين واحد بمثابة إحصاء وتقديرٍ لتاريخ تطور الجينات (أي شجرة الجينات) وليست لتاريخ تطور الأصناف (أي شجرة الأنواع) التي تم أخذ عينات منها. لكن من الناحية المثالية، يجب أن يكون كلاهما قريباً جداً من الآخر. ولهذا السبب، تستعمل دراسات تطور السلالات عموماً مجموعة من الجينات التي تأتي من مصادر جينية مختلفة (مثلًا: من الميتوكوندريا أو البلاستيد مقابل الجينوم النووي)، أو الجينات التي من المتوقع أن تتطور في ظل أنظمة انتقائية مختلفة، وبالتالي فمن غير المرجح أن ينتج تجانس التقويم والشكل (تنادد خاطئ) عن الانتقاء الطبيعي.
من جهة ثانية، قد توفر الأشجار التطورية، والمنتجة على أساس الجينات المتسلسلة أو البيانات الجينية في أنواع مختلفة، رؤية تطورية. لكن لهذه التحليلات حدود أو قيود مهمة. وهناك أمر بالغ الأهمية، وهو كون هذه الأشجار التطورية المتولدة غير صحيحة بالضرورة –فهي لا تمثل بالضرورة التاريخ التطوري للأصانيف المشمولة بدقة بالغة. وكما هو الحال مع أي نتيجة علمية، فهي قابلة للدحض من خلال إجراء مزيد من الدراسات (مثلًا: جمع بيانات إضافية وتحليل البيانات الموجودة باستخدام أساليب محسنة). وربما تكون البيانات التي نستند إليها مشوشة. فقد يحدث اختلاطٌ في التحليل نتيجة إعادة التركيب الجيني أو نقل الجينات الأفقي أو التهجين بين الأنواع التي لم تكن قريبة على شجرة التطور قبل حدوث التهجين. وقد يحدث هذا الاختلاط بسبب التطور التقاربي أو التسلسل المحفوظ.
- اقرأ كذلك
- هابلوغروب L0
- هابلوغروب L1 الميتوكوندرية
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟