صلاحية (أحياء)
المحتويات
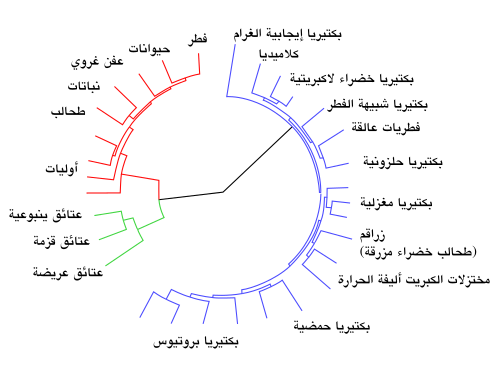
على سبيل التعريف، الصلاحية أو اللياقة هي مفهوم مركزي في علم الأحياء التطوري. ويمكن تعريفها من حيث النمط الظاهري أو النمط الجيني في بيئة معينة. وفي كِلْتا الحالتين، الصلاحية تشير إلى القدرة على النجاة والتكاثر، وهي تساوي معدل مساهمة الفرد لتجميعة الجينات للجيل اللاحق. إن كان لللألائل المختلفة للجين تأثير على الصلاحية، فإن تواترات الألائل ستتغير عبر الأجيال. فالألائل التي تعزز الصلاحية يزيد شيوعها، ويقل شيوع تلك التي تحط من الصلاحية، وهذا ما يُعرف بالاصطفاء الطبيعي. ونتناول فيما يلي مزيدًا من التفاصيل.
إضافةً إلى ذلك، يكفي في حالة التكاثر اللاجنسي ربط الصلاحية بالأنماط الجينية. أمّا في حالة التكاثر الجنسي يتم خلط الأنماط الجينية كل جيل. يمكن في هذه الحالة تعيين قيم الصلاحية للأليلات عن طريق حساب المتوسط من خلال التصورات الوراثية المحتملة. يميل الانتقاء الطبيعي إلى جعل الأليلات ذات الصلاحية الأعلى أكثر شيوعًا مع مرور الوقت مما يثبت التطور حسب نظرية داروين.
وفي هذا السياق، تتجلى صلاحية الكائن الحي في نمطه الظاهري. النمط الظاهري يتأثر بالبيئة وأيضاً بالجينات. صلاحية نمط ظاهري معين قد تتغير مع تغير البيئة. الأفراد المتطابقون بالنمط الجيني لا تكون صلاحيتهم بالضرورة متساوية. ولكن بما أن صلاحية النمط الجيني هي مقدار متوسط، فإنها تعكس نتائج التكاثر لكل الأفراد أصحاب ذاك النمط الجيني في بيئة أو مجموعة بيئات معينة.
وفي هذا السياق، يمكن استخدام مصطلح (الصلاحية الداروينية) لتوضيح الفرق بينها وبين اللياقة البدنية. اللياقة البدنية لا تتضمن مقاييس للنجاة أو لمدة البقاء على قيد الحياة، يُفضل تفسير عبارة هربرت سبنسر المعروفة «البقاء للأصلح» على أنها: «نجاة واستمرار النموذج (الظاهري أو الجيني) الذي سيترك أكبر عدد من النسخ لنفسه في الأجيال المتعاقبة».
في هذا الإطار، تختلف الصلاحية الشاملة عن الصلاحية الفردية بأنها تراعي قدرة أليل في فرد واحد على تعزيز البقاء و / أو تكاثر الأفراد الآخرين الذين يتشاركون بهذا الأليل بشكل أفضل من الأفراد ذوي أليل مختلف. يعتبر اصطفاء القرابة إحدى آليات الصلاحية الشاملة.
الصلاحية نزعة طبيعية
إضافةً إلى ذلك، غالبًا ما تُعرف الصلاحية على أنها ميول طبيعية وليس العدد الفعلي للذرية. مثلًا وبحسب ماينارد سميث: «الصلاحية هي خاصية لمجموعة من الأفراد وليس لفرد واحد مثلًا: نسختين متجانستين من الأليل A في موضع معين. وهكذا فإن عبارة (العدد المتوقع للنسل) تعني العدد الوسطي وليس العدد الذي ينتجه فرد واحد. إذا أصيب أول طفل بشري يحمل جينًا يسمح له بالطيران في الهواء بصاعقة برق وهو في عربة الأطفال، فإن هذا لا يُثبت أنّ النمط الوراثي الجديد لا يملك صلاحية، ولكن هذا الطفل كان سيئ الحظ».
من جهة ثانية، وبدلاً من ذلك: «الصلاحية للفرد - وجود نظام معين x من الأنماط الظاهرية - هو الاحتمال (s(x الذي يمثل اعتبار هذين الفردين من بين المجموعة المختارة كأبوين في الجيل القادم».
,
كذلك، وبالتالي فإن التغير في النمط الجيني A يعتمد إلى حدّ كبير على الفرق بين صلاحيته وصلاحية النمط الجيني B. بافتراض أن A أكثر صلاحية من B، وبتحديد معامل الانتقاء s بواسطة:
الصلاحية المطلقة
من جهة ثانية، يتم تعريف الصلاحية المطلقة (W) للنمط الجيني على أنها التغير النسبي في وفرة هذا النمط الجيني خلال جيل واحد بسبب الانتقاء. مثلًا: إذا كان (n(t يمثل وفرة النمط الجيني في الجيل t ضمن عدد كبير جدًا من الكائنات (بحيث لا يوجد انحراف جيني) وبإهمال التغيير في وفرة النمط الوراثي بسبب الطفرات يكون:
إضافةً إلى ذلك، تشير الصلاحية المطلقة الأكبر من الـ 1 إلى النمو في وفرة هذا النمط الجيني، وتشير الصلاحية المطلقة الأصغر من الـ 1 إلى انخفاضه.
.
,
ω ̅=ω_A p+ω_B (1-p)
ومن جهة أخرى، يتبع التغيير في ترددات النمط الجيني بسبب الانتقاء مباشرة تعريف الصلاحية النسبية:
.
وفي هذا الصدد، غالبًا ما يتم في الحالة الخاصة التي لا يوجد فيها سوى نوعان من النمط الجيني ضمن الدراسة (مثلًا: وجود أليل متحول جديد) كتابة التغير في تواتر النمط الجيني بشكل مختلف.
وعلى صعيد آخر، لنفترض أنَّ اثنين من النمط الجيني A و B يملكان صلاحية ω_A و ω_B وتواترات p و 1-p على التوالي، هذا يعني أنَّ:
وبذلك يكون:
من جانب آخر، وبالتالي فإن تواتر النمط الوراثي سينخفض أو يزداد اعتمادًا على ما إذا كانت صلاحيته أقل أو أكبر من متوسط الصلاحية.
- يمكن استخدام الصلاحية المطلقة لحساب الصلاحية النسبية، بحيث:
- .
- (لقد استعملنا هنا N(t+1)=W ̅N(t) بحيث W ̅ هي الصلاحية المطلقة في الكائنات)
- هذا يعني أنه w/w ̅=W/W ̅، أو بطريقة أخرى أنَّ الصلاحية النسبية تتناسب مع W/W ̅.
علاوةً على ذلك، حيث تمثل w ̅ الصلاحية النسبية المتوسطة في الكائنات (مع إهمال التغييرات في التكرار بسبب الانحراف الجيني والطفرات). تشير الصلاحية النسبية فقط إلى التغير في انتشار الأنماط الجينية المختلفة بالنسبة لبعضها البعض، وبالتالي فإن المهم هو قيمها بالنسبة إلى بعضها البعض، يمكن أن تكون الصلاحية النسبية أي رقم غير سالب بما في ذلك 0. من السهل في أغلب الأحيان اختيار نوع وراثي واحد كمرجع وتعيين صلاحيته النسبية مساوية للواحد. يتم استخدام الصلاحية النسبية في نماذج رايت - فيشر القياسية ونماذج موران لعلم الوراثة السكانية.
ومن ناحية أخرى، لا يمكن حساب الصلاحية المطلقة من الصلاحية النسبية وحدها، لأن الصلاحية النسبية لا تحتوي على معلومات حول التغييرات في وفرة الكائنات الكلية (N(t.
الصلاحية النسبية
وفي هذا السياق، بينما تحدد الصلاحية المطلقة التغييرات في وفرة النمط الجيني، تحدد الصلاحية النسبية (w) التغييرات في تواتر النمط الجيني. إذا كان (N(t هو إجمالي حجم الكائنات في الجيل t وكان تواتر النمط الجيني المتعلق به هو p(t)=n(t)/N(t) عندها:
الحمل الجيني
إضافةً إلى ذلك، يقيس الحمل الجيني متوسط الصلاحية لمجموعة من الأفراد سواء بالنسبة للنمط الجيني النظري للصلاحية المثلى أو بالنسبة إلى النمط الجيني الأكثر ملاءمة والموجود مسبقًا في الكائنات.
وفي السياق ذاته، قد يزداد الحمل الجيني عند حدوث طفرات ضارة أو هجرة أو زواج أقارب أو تجاوز متوسط الصلاحية. وقد يزداد الحمل الوراثي كذلك عندما تقوم الطفرات المفيدة بزيادة الحد الأقصى من الصلاحية مقارنةً بالطفرات الأخرى، يعرف ذلك باسم الحمل البديل أو تكلفة الانتقاء.
علاوةً على ذلك، ليكن لدينا عدد n من الانماط الجينية (A1 . . . . . An) والتي تملك صلاحية (P1 . . . . . . Pn) على التوالي. وبإهمال الانتقاء القائم على التواتر يمكن حساب الحمل الجيني (L) كالتالي:
انظر كذلك
نجاح تناسلي
التاريخ
وفي هذا الصدد، صاغ عالم الاجتماع البريطاني هربرت سبنسر عبارة «البقاء للأصلح» في كتابه الذي حمل عنوان (مبادئ علم الأحياء) في عام 1864 والذي وصف من خلاله ما أطلق عليه تشارلز داروين الانتقاء الطبيعي.
إضافةً إلى ذلك، كان عالم الأحياء البريطاني جون هالدين أول من قام بتحديد قيمة الصلاحية من حيث الاصطناع التطوري الحديث لعلم الوراثة الداروينية والمندلية بدءًا من بحثه في سنة 1924 الذي حمل عنوان «النظرية الرياضية للانتقاء الطبيعي والاصطناعي». كانت الدراسة التالية مقدمة لمفهوم الصلاحية الشاملة وقد قام بها عالم الأحياء البريطاني ويليام دونالد هاملتون في سنة 1964 في بحثه عن التطور الوراثي للسلوك الاجتماعي.
نماذج من الصلاحية: اللاجنسيين
وعلى صعيد آخر، من أجل تجنب تعقيدات الجنس وإعادة التركيب فإننا نركز اهتمامنا مبدئيًا على الكائنات اللاجنسية اللذين ليس لديهم إعادة تركيب جيني. ويمكن من خلال ذلك ربط الصلاحية مباشرة مع الأنماط الجينية بدلاً من القلق بشأن الأليلات الفردية. هناك مقياسان شائعان لقياس الصلاحية هما: الصلاحية المطلقة والصلاحية النسبية.
ω_A=(1+s)ω_B
من جهة ثانية، حيث يتم التقريب الأخير لـ s《1. وبعبارة أخرى: يزداد تواتر النمط الجيني الأصلح على شكل دالة لوجستية.
نحصل على:
∆p=(ω-ω ̅)/ω ̅ p=s/(1+sp) p(1-p)≈sp(1-P)
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟