طلائعيات
المحتويات
- حقبة الطلائع القديمة والوسطى
- الدورات الحيوية الجيولوجية الكيميائية
- دورة الحياة والتكاثر
- الطلائعيات الكهفية
- تنوع الموائل
- السجل الأحفوري
- الدورات الجنسية في الطلائعيات المسببة للأمراض
- المحللات
- تعريفها
- الإدراك الحسي
- السوطيات القشية
- التنوع
- التغذية البلعمية
- المجموعات اليتيمة
- التنظيم الأسموزي
- حقبة الحياة الوسطى
- التغذية المختلطة
- المستهلكات
- الطلائعيات السناخية
- علم أحياء الطلائعيات
- بيئة الطلائعيات
- المنتجات الأولية
- حقبة الحياة القديمة
- النواتح
- التكاثر اللاجنسي
- الطلائعيات اللمسية وكريبتستا
- الأهمية الاقتصادية
- التنفس
- حقبة الطلائع الحديثة
- التكاثر الجنسي
- الطلائعيات الجذرية
- الدورات الجنسية الأساسية
- المتعايشات الداخلية
- الأنواع الشائعة
- عديمات الشكل
- حقبة الحياة الحديثة
- التغذية
- التصنيف المبكر
- التغذية التناضحية
- الطفيليات ومسببات الأمراض
- نهاية الثنائية حيوان-نبات
- التطورات في المجهر الإلكتروني وعلم الوراثة الجزيئي
- البلاستيدات العتيقة
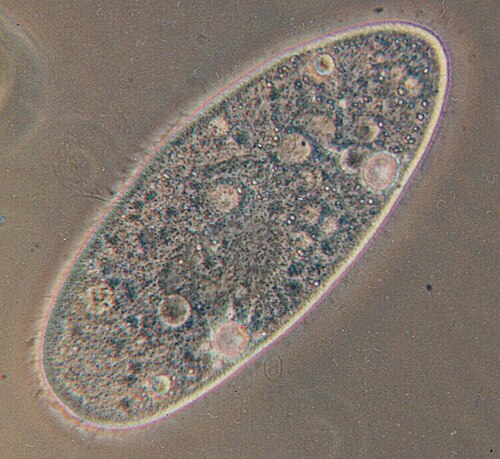
قبل الخوض في التفاصيل، الطلائعيات أو الأوّليات أو الأَوَّلاَنِيَّات مجموعة غير متجانسة (متغايرة) من الكائنات الحية حقيقية النوى، لكن لا يمكن تصنيفها ضمن مملكة الحيوانات ولا النباتات ولا حتى الفطريات، لا تُشكل الطلائعيات مجموعة طبيعية أو فرعًا حيويًا، بل هي مجموعة شبه عرقية تضم جميع سلالات آخر سلف مشترك حقيقي النواة، باستثناء النباتات الأرضية، والحيوانات، والفطريات. أول من تحدث عن الطلائعيات مجموعة مستقلة كان العالم أرنست هيكل. بشكل عَام لا تتشارك مجموعة الطلائعيات بأمور كثيرة منها البنية البسيطة نسبيًا (غالبًا وحيدة الخلية، أو متعددة الخلية دون تمايز خلوي أو أنسجة متخصصة) لذلك يعدّها البعض كأنها الحاوية لكل ما لا يمكن وضعه في أي من الممالك الأخرى. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
وفي السياق ذاته، من ضمن هذه المجموعة يبدو أن الإشنيات الخضراء والطحالب الحمراء وثيقة الصلة بالنباتات الأخرى، لذلك فإن الكثير من المؤلفين عاملوهم على أنهم من ضمن المملكة النباتية بالرغم من بنيتهم البسيطة. مع هذا فإن الطحالب البنية لها تاريخ تطوري مستقل.
من جهة ثانية، تقليديا تقسم الطلائعيات حسب التشابهات مع الممالك الأعلى. القسم الأول: الأوليات الشبيهة بالحيوانات تكون غالبا وحيدة الخلية، متحركة، وتتغذى بالبلعمة، مع وجود استثناءات. القسم الثاني: الطحالب الشبيهة بالنباتات التي تستعمل الضوء في عملية البناء الضوئي. وهي تتضمن بنى وحيدة الخلية يمكن اعتبارها كذلك أوليات، مثل يوغلينا وبراميسيوم بورساريا التي تحتوي صانعات خضراء و في أن أغلب العضاء الآخريين من الإشنيات غير متحركة، وبعضها متعدد الخلايا مختلف الأحجام.
ومن جهة أخرى، تُشكل الطلائعيات مجتمعة كتلة حيوية تبلغ ضعف كتلة الحيوانات. تُظهر أنواعًا مختلفة من التغذية (مثل التغذية الضوئية، أو البلعمة، أو التغذية الاسموزية)، وقد تجمعها أحيانًا (في التغذية المختلطة). وتقدم الطلائعيات تكيفات فريدة لا تتوفر في الحيوانات متعددة الخلايا، أو الفطريات، أو النباتات الأرضية. يُطلق على دراسة الطلائعيات مصطلح علم الطلائعيات.
علاوةً على ذلك، تاريخيًا، كانت الطلائعيات تُصنف مملكة تصنيفية منفصلة تُعرف باسم الطلائعيات. ومع ظهور علم الوراثة العرقي ودراسات المجهر الإلكتروني، هُجِر تدريجيًا استخدام اسم "الطلائعيات" أصنوفة رسمية. في التصنيفات الحديثة، تنتشر الطلائعيات عبر عدة فروع حيوية حقيقية النواة تُسمى مجموعات عليا، مثل النباتات الأصلية (التي تضم الكائنات ذاتية التغذية الضوئية بما في ذلك النباتات الأرضية)، ومجموعة سار الرئيسية، ومجموعة خاقيات (التي تشمل الفطريات والحيوانات)، والأميبيات، والطلائعيات الكهفية.
حقبة الطلائع القديمة والوسطى
ومن جهة أخرى، نشأت حقيقيات النواة الحديثة أو "مجموعة التاج" من آخر سلف مشترك حقيقي النواة (LECA) وظهرت بين 1600 و2400 مليون سنة مضت، خلال حقبتي الطلائع القديمة والطلائع الوسطى. ومع ذلك، فإن السجل الأحفوري خلال هذه الفترة نادر وتُهيمن عليه حقيقيات النواة "المجموعة الأساسية"، وهي سلالات منقرضة سبقت آخر سلف مشترك حقيقي النواة. عرضت هذه السلالات سمات حقيقية النواة مبكرة مثل أغشية الخلايا المرنة وزخارف الجدار الخلوي المعقدة، والتي تتطلب نظاماً داخلياً غشائياً مرناً، لكنها افتقرت إلى الستيرولات المتقدمة لحقيقيات النواة مجموعة التاج (مثل الكوليسترول)، وبدلاً من ذلك أنتجت بروتوستيرولات أبسط تتطلب كمية أقل من الأكسجين أثناء التخليق الحيوي. أمثلة على ذلك: تراكي هستريتشوسفارا وليوسفايريديا التي يعود تاريخها إلى 1100 مليون سنة مضت، وساتكا التي يعود تاريخها إلى 1300 مليون سنة مضت، وتابانيا وشوييو سفاريديوم التي يعود تاريخها إلى 1600 مليون سنة مضت، وغريبايا التي يعود تاريخها إلى 1800-1900 مليون سنة مضت، وفاليريا التي تتراوح من 1650 إلى 700 مليون سنة مضت.
علاوةً على ذلك، حققت حقيقيات النواة مجموعة التاج تنوعاً شكلياً وبيئياً كبيراً قبل 1000 مليون سنة مضت، مع طحالب متعددة الخلايا قادرة على التكاثر الجنسي وطلائعيات وحيدة الخلية تُظهر البلعمة والحركة الحديثة. من المرجح أن ستيرولاتها المتقدمة ولكن مكلفة الأيض قد وفرت الكثير من المزايا التطورية بسبب زيادة مرونة الغشاء، بما في ذلك المرونة للصدمة الأسموزية خلال دورات الجفاف وإعادة الترطيب، ودرجات الحرارة القصوى، والتعرض للأشعة فوق البنفسجية، والحماية ضد مستويات الأكسجين المتغيرة. سمحت هذه التكيفات لحقيقيات النواة مجموعة التاج باستعمار بيئات متنوعة وقاسية (مثل المسطحات الطينية، والأنهار، والشواطئ المضطربة، واليابسة). في المقابل، احتلت حقيقيات النواة المجموعة الأساسية المياه البحرية منخفضة الأكسجين ككائنات لا هوائية. تُعتبر أقدم أحافير حقيقيات النواة مجموعة التاج المؤكدة هي رافاتازميا وراماثالوس، وكلاهما يُعتقد أنهما من الطحالب الحمراء، ويعود تاريخهما إلى 1600 مليون سنة مضت.
الدورات الحيوية الجيولوجية الكيميائية
تاريخ التصنيف
وفي هذا السياق، تُؤثر الطلائعيات البحرية بشكل أساسي على الدورات البيوجيوكيميائية، وخاصة دورة الكربون. كعوالق نباتية، تُثبت الكربون بقدر ما تُثبته جميع النباتات الأرضية مجتمعة. تُساهم طلائعيات التربة، وخاصة الأميبا القشرية، في دورة السيليكا بقدر ما تُساهم به أشجار الغابات من خلال التمعدن الحيوي لأصدافها.
دورة الحياة والتكاثر
ومن ناحية أخرى، تُظهر الطلائعيات نطاقاً واسعاً من دورات الحياة والاستراتيجيات التي تتضمن مراحل متعددة ذات أشكال مختلفة، مما مكنها من الازدهار في أغلب البيئات. ومع ذلك، فإن أغلب المعرفة المتعلقة بدورات حياة الطلائعيات تخص الكائنات الحية النموذجية والطفيليات المهمة. تمثل الطلائعيات حرة المعيشة غير المستزرعة الغالبية العظمى، ولكن المعرفة حول دورات حياتها لا تزال مجزأة.
الطلائعيات الكهفية
كذلك، فوق المونيات هي شعبة من الأوليات اللاهوائية تمامًا أو قليلة الأوكسجين، وأغلبها سوطيات. وبعضها متعايشات معوية للحيوانات مثل النمل الأبيض، وبعضها الآخر حر المعيشة، والبعض الآخر طفيلي. وتضم ثلاث فروع حيوية رئيسية: الشعريات، ذوات الجسيم القاعدي، ومونيات لاهوائية. تشمل الشعريات (أكثر من 140 نوعًا) المتضاعفات، ذات النواتين (مثل الجياردية)، وعدة مجموعات أصغر من الطلائعيات حرة المعيشة، والتعايشية، والطفيلية (مثل كاربيديموناس، الريتورتمونادات). ذوات الجسيم القاعدي (أكثر من 460 نوعًا) هي مجموعة متنوعة من الكائنات اللاهوائية، أغلبها داخلية المعيشة، وتتراوح من الطفيليات الصغيرة (مثل المشعرة) إلى المتعايشات المعوية العملاقة ذات الأعداد الكبيرة من السياط والنوى الموجودة في النمل الأبيض والصراصير آكلات الخشب. تشمل المونيات اللاهوائية (نحو 140 نوعًا) الأكسيمونيات اللاهوائية وداخلية المعيشة، ذات الميتوكوندريا المعدلة (أو المفقودة تمامًا)، ونوعين من السوطيات حرة المعيشة قليلة الأوكسجين آكلات البكتيريا وهما تريماستيكس وباراتريماستيكس، ذات الشكل النموذجي للطلائعيات الكهفية. يوجد نوعان من السوطيات اللاهوائية وُصِفَت حديثًا وذات بنية خلوية فريدة، وهما بارثيلونا وسكولوموناس، وهما مرتبطان ارتباطًا وثيقًا بالشعريات.
في هذا الإطار، الطلائعيات الكهفية هي مجموعة تضم طلائعيات متنوعة، أغلبها سوطيات، وتتراوح بين مفترسات هوائية ولاهوائية إلى كائنات ذاتية التغذية ضوئيًا وغيرية التغذية. يشير الاسم الشائع "الطلائعيات الكهفية" إلى السمة المشتركة المتمثلة في وجود أخدود بطني في الخلية يستعمل للتغذية بالترشيح، والذي يعتبر سمة أسلافية موجودة في آخر سلف مشترك حقيقي النواة. تتألف الطلائعيات الكهفية من ثلاث فروع حيوية: الديسكوبا، الفوق المونيات، والملاويموناديدا، وتضم كل منها "طلائعيات كهفية نموذجية" وهي سوطيات حرة المعيشة بلعمية التغذية ذات الأخدود البطني المميز. وبحسب أغلب التحليلات التطورية، تعد هذه المجموعة شبه عرقية، مع بعض التحليلات التي تضع جذر شجرة حقيقيات النوى داخل الفوق المونيات.
وفي السياق ذاته، تضم الديسكوبا ثلاث مجموعات رئيسية: الجاكوبانية، الحنادر، واللجفاوات الراشحة. الجاكوبانية هي مجموعة صغيرة (نحو 20 نوعًا) من السوطيات غيرية التغذية حرة المعيشة، ذات هدبين، وتتغذى بشكل أساسي على البكتيريا عن طريق التغذية بالترشيح؛ أغلبها كائنات هوائية مائية، مع بعض الأنواع اللاهوائية، وتوجد في المياه البحرية أو قليلة الملوحة أو العذبة. وهي معروفة بشكل خاص بجينوماتها الميتوكوندرية الشبيهة بالبكتيريا. الحنادر هي مجموعة غنية (أكثر من 2000 نوع) من السوطيات ذات أنماط حياة مختلفة جدًا، بما في ذلك: السوطيات حرة المعيشة غيرية التغذية (أوسموزية وبلعمية التغذية) وذاتية التغذية ضوئيًا (مثل اليوجلينوفايتس، ذات البلاستيدات الخضراء التي نشأت من الطحالب الخضراء)؛ ذوات منشأ الحركة حرة المعيشة والطفيلية (مثل المثقبية)؛ السيمبيونتيدات اللاهوائية في أعماق البحار؛ والديبلونيميدات المراوغة. اللجفاوات الراشحة (قرابة 150 نوعًا) هي مجموعة من الأميبا، والسوطيات، والأميبا السوطية ذات دورات حياة معقدة، ومن بينها بعض الفطريات الغروية (الأكراسيدات). تُعد الفرعين الحيويان الحنادر واللجفاوات الراشحة سلالات شقيقة، موحدة تحت اسم مضلعات قرصية، في إشارة إلى أعرافها الميتوكوندرية ذات الشكل القرصي. يُعد نوع تسوكوباموناس غلوبوسا سوطيًا حر المعيشة لم يُحدد موقعه الدقيق داخل الديسكوبا بعد، ولكنه على الأرجح أكثر ارتباطًا بالمضلعات القرصية منه بالجاكوبانية.
ومن جهة أخرى، الملاويمونادات (الملاويموناديدا) هي مجموعة صغيرة (ثلاثة أنواع) من السوطيات آكلات البكتيريا التي تتغذى بالترشيح في المياه العذبة أو البحرية، ذات مظهر نموذجي للطلائعيات الكهفية، وتشبه إلى حد كبير الجاكوبانية وبعض فوق المونيات، ولكنها ليست قريبة عرقيا من أي منهما في أغلب التحليلات.
تنوع الموائل
وعلى صعيد آخر، تُعد الطلائعيات وفيرة ومتنوعة في جميع الموائل على وجه التقريب. تساهم 4 غيغاطن (Gt) في الكتلة الحيوية للأرض – ضعف كتلة الحيوانات (2 غيغاطن)، ولكن أقل من 1% من الإجمالي. تُشكل الطلائعيات والحيوانات والعتائق (7 غيغاطن) والفطريات (12 غيغاطن) معاً أقل من 10% من الكتلة الحيوية العالمية، بينما تهيمن النباتات (450 غيغاطن) والبكتيريا (70 غيغاطن). إن تنوع الطلائعيات، كما جرى الكشف عنه من خلال مسوحات الحمض النووي البيئي، هائل في كل بيئة جرى أخذ عينات منها، ولكنه غير موصوف إلى حد كبير. يبدو أن أغنى مجتمعات الطلائعيات توجد في التربة، تليها الموائل المحيطية وأخيراً موائل المياه العذبة، كجزء من العوالق في الغالب. تتميز مجتمعات الطلائعيات في المياه العذبة بتنوع "بيتا" أعلى (أي أنها غير متجانسة إلى حدّ كبير بين العينات) من مجتمعات التربة والعوالق البحرية. يمكن أن يكون التنوع العالي نتيجة للديناميكية الهيدرولوجية في استقطاب الكائنات الحية من موائل مختلفة من خلال الفيضانات الشديدة. تُعد مجتمعات الطلائعيات التي تعيش في التربة الأغنى بيئياً، وقد يرجع ذلك إلى التوزيع المعقد والديناميكي للغاية للمياه في الرواسب، مما يخلق ظروفاً بيئية غير متجانسة للغاية. تُعزز البيئة المتغيرة باستمرار نشاط جزء واحد فقط من المجتمع في كل مرة، بينما يظل الباقي غير نشط؛ تُعزز هذه الظاهرة التنوع الميكروبي العالي في بدائيات النوى وكذلك في الطلائعيات.
السجل الأحفوري
وفي السياق ذاته، قبل وجود النباتات الأرضية والحيوانات والفطريات، كانت جميع حقيقيات النواة من الطلائعيات. ونتيجة لذلك، فإن السجل الأحفوري المبكر للطلائعيات يعادل السجل المبكر للحياة حقيقية النواة. يُمثل السجل الأحفوري للطلائعيات بشكل رئيسي بالطلائعيات ذات الأغطية القابلة للتحجر، مثل المثقبات، والشعوعيات، والأميبا القشرية، والدياتومات، فضلًا عن الطحالب متعددة الخلايا.
الدورات الجنسية في الطلائعيات المسببة للأمراض
من جانب آخر، تميل الطلائعيات المسببة للأمراض إلى امتلاك دورات حياة معقدة للغاية تتضمن أشكالاً متعددة من الكائن الحي، بعضها يتكاثر جنسياً والبعض الآخر لاجنسياً. تُعرف المراحل التي تتغذى وتتكاثر داخل المضيف عموماً باسم الأتروفة (من الكلمة اليونانية "تروفوس" Trophos وتعني "تغذية" و"زويا" Zoia وتعني "حيوانات")، لكن أسماء كل مرحلة تختلف باختلاف مجموعة الطلائعيات. مثلًا:
إضافةً إلى ذلك، في معقدات القمة: تُطلق البوغية أحادية المجموعة الصبغية داخل المضيف، وتخترق خلية المضيف، وتبدأ العدوى وتتحول إلى ميرونت (كيس نسيجي دائري أو بيضاوي، مُغلّف داخل النسيج) ينمو وينقسم لاجنسياً إلى الكثير من الأُقْسومَات (وهو انشطار تقطيعي يسمى التقسم)؛ تستمر كل أُقْسومَة في العدوى بالتكاثر. في النهاية، تتمايز الأُقْسومَات (تَوالُدٌ تَعَرُّسِيّ) إلى خلايا أمشاج أنثوية (سَليفُ العِرْسِ الكبير) وذكورية (عِرْسِيَّةٌ مِكْرَوِيَّة) تولد الأمشاج، والتي تندمج بدورها (التناسل البوغي) لتكوين بويضة مخصبة ثنائية المجموعة الصبغية تنمو لتصبح كيس بوغي. ثم يخضع الكيس البوغي للانقسام الاختزالي لتكوين أبواغ تنقل العدوى.
كذلك، على الرغم من خضوعها للتكاثر الجنسي، فإنه من غير الواضح مدى تكرار التبادل الجيني بين السلالات المختلفة من الطلائعيات المسببة للأمراض، حيث قد تكون أغلب المجموعات عبارة عن سلالات مستنسخة نادراً ما تتبادل الجينات مع الأعضاء الآخرين من نوعها.
من جهة ثانية، في الطحالب المخاطية: تدخل الأبواغ الحيوانية الأولية ثنائية المجموعة الصبغية المضيف، تتكيس، وتخترق الخلايا كجبلة مجردة وحيدة النواة أو متصورة. داخل الخلايا، تنمو الجبلة المجردة إلى كيس بوغي مائي متعدد النواة، والذي ينقسم فيما بعد إلى أبواغ حيوانية ثانوية تصيب المزيد من الخلايا. تتكاثر هذه الأبواغ لتكون أبواغاً كامنة سميكة الجدران تبدأ الانقسام الاختزالي وتنقسم إلى أبواغ كامنة ثنائية النواة؛ تُفقد إحدى النواتين، وتفقس الأبواغ كأبواغ حيوانية أولية.
من جانب آخر، تخضع بعض مسببات الأمراض الطلائعية للتكاثر اللاجنسي في مجموعة واسعة من الكائنات الحية - التي تعمل كمضيفات ثانوية أو وسيطة - ولكنها لا تستطيع التكاثر الجنسي إلا في المضيف الأساسي أو النهائي (مثلًا، المقوسة الغوندية في السنوريات مثل القطط المنزلية). البعض الآخر، مثل الليشمانيا، قادر على إجراء الالتحام الزوجي في الناقل الثانوي. في معقدات القمة، يُعد التكاثر الجنسي إلزامياً لانتقال الطفيل.
المحللات
إضافةً إلى ذلك، تُعزى عملية أكل الجيف (تحلل الكتلة الحيوية الميتة) بين الكائنات الدقيقة بشكل رئيسي إلى البكتيريا والفطريات، ولكن للطلائعيات دور لم يُدرك بعد بشكل كافٍ كمحللات مع إنزيمات محللة متخصصة. في التربة، توجد الطلائعيات الشبيهة بالفطريات والعفن الغروي (مثلًا، الطلائعيات البيضية، مخاطيات البطن، الأكراسيدات) بكثرة ككائنات متغذية بالامتصاص ورمية. في البيئات البحرية وموائل مصبات الأنهار، تُعد الطلائعيات الثراستوكيتيدية المُدروسة جيداً (جزء من اللابرينثولوميسيتات) كائنات رمية مهمة تحلل الركائز المختلفة، بما في ذلك الأنسجة النباتية والحيوانية الميتة. تقتات الكثير من الهدبيات والأميبا القشرية على الحيوانات الميتة. تستهلك بعض الأميبا العرفيات القرصية محتويات الخلايا الميتة أو التالفة على وجه التحديد، ولكنها لا تستهلك الخلايا السليمة. ومع ذلك، فإن كل هذه الأمثلة هي مجرد آكلات جيف اختيارية تتغذى كذلك على الفرائس الحية. على النقيض من ذلك، تُعد فصيلة الحيوانات المذيلة آكلة الطحالب المسماة فيريديرابتوريدي، الموجودة في مياه المستنقعات الضحلة، من آكلات الجيف واسعة النطاق ولكنها متطورة، تتغذى على مجموعة متنوعة من الطحالب الميتة حصرياً، ومن المحتمل أنها تُؤدي دوراً مهماً في تنظيف البيئة وإطلاق المغذيات للكائنات الدقيقة الحية.
تعريفها
علاوةً على ذلك، أُصدرت أسماء بعض الطلائعيات (وتُسمى الطلائعيات ثنائية المملكة)، نظرًا لخليط سماتها المشابهة لكل من الحيوانات والنباتات البرية أو الفطريات (مثل العفن الغروي والطحالب السوطية كطحالب يوغلينية)، تحت رمز التسمية النباتي (القانون الدولي لتسمية الطحالب والفطريات والنباتات - ICNafp) أو الحيواني (القانون الدولي للتسمية الحيوانية - ICZN) أو كليهما.
كذلك، الطلائعيات مجموعة متنوعة من حقيقيات النوى، وهي في الأساس وحيدة الخلية ومجهرية، وتُظهر مجموعة واسعة من الأشكال واستراتيجيات الحياة. ولها دورات حياة ومستويات غذائية وأنماط حركة وتراكيب خلوية مختلفة. على الرغم من أن أغلب الطلائعيات وحيدة الخلية، يوجد بينها نطاق كبير من التعدد الخلوي؛ فبعضها يشكل مستعمرات أو تراكيب متعددة الخلايا مرئية بالعين المجردة. يشير مصطلح "طلائعي" إلى جميع حقيقيات النوى التي لا تصنف ضمن الحيوانات أو النباتات البرية أو الفطريات، وهي الممالك الحقيقية النواة الثلاثة التقليدية. وبسبب هذا التعريف بالاستبعاد، تشكل الطلائعيات مجموعة شبه عرقية تضم أسلاف تلك الممالك الثلاث.
الإدراك الحسي
ومن جهة أخرى، تُظهر الكثير من السوطيات وربما جميع الطحالب المتحركة استجابة ضوئية إيجابية (أي أنها تسبح أو تنزلق نحو مصدر ضوء). ولهذا الغرض، تظهر ثلاثة أنواع من المستقبلات الضوئية أو "البقع العينية": (1) مستقبلات ذات هوائيات ضوئية، توجد في الكثير من الطحالب الخضراء، السوطيات الدوارة، ومخفيات النبت؛ (2) مستقبلات ذات شاشات معتمة؛ و (3) عينات كاذبة معقدة ذات عدسات داخل خلوية، توجد في مجموعة واحدة من السوطيات الدوارة المفترسة، وهي عائلة الوارنوياوات. فضلًا عن ذلك، توجه بعض الهدبيات نفسها بالنسبة لمجال الجاذبية الأرضية أثناء الحركة (الانتحاء الأرضي)، وتسبح أخرى بالنسبة لتركيز الأكسجين المذاب في الماء.
السوطيات القشية
علاوةً على ذلك، الدياتومات: وهي كائنات وحيدة الخلية أو مستعمرة مغلفة بجدران خلوية سيليكونية (محارة دياتومية) تُظهر أشكالًا وزخارف مختلفة على نطاق واسع، وتشكل جزءًا كبيرًا من العوالق النباتية البحرية.
ومن جهة أخرى، تتميز السوطيات القشية، المعروفة كذلك باسم مختلفة الأسواط، بوجود هدبين، يحمل أحدهما الكثير من الشعيرات القصيرة الشبيهة بالقش (خيط سوطي). وتضم فرع حيوي واحد من الكائنات ذاتية التغذية الضوئية والكثير من سلالات الكائنات غيرية التغذية، وتتواجد في جميع البيئات على وجه التقريب. تشمل السوطيات القشية فرعين حيويين مدعومين جيدًا عادةً، وهما وطلائعيات تلفيفية، على الرغم من أن أحادية النشوء للفرع الحيوي بيغيرا تخضع للتساؤل. تتفرع خارج كل من بيغيرا والتلفيفية نوع واحد من السوطيات غيرية التغذية الغامضة، وهو بلاتيسولكوس تاردوس. لا يزال جزء كبير من تنوع السوطيات القشية غيرية التغذية غير مُصنف، ومعروف بالكامل على وجه التقريب من سلالات التسلسلات الجينية المعروفة باسم ماستس (السوطيات القشية البحرية - MASTs)، والتي وُصف منها عدد قليل فقط من الأنواع.
ومن ناحية أخرى، البيغيرومونادات: وهي مجموعة من البالعات التي تتغذى على البكتيريا أو حقيقيات النوى.
ومن ناحية أخرى، شعبة بيغيرا التي درست قليلاً هي مجموعة من الكائنات غيرية التغذية حصريًا، وأغلبها كائنات حرة المعيشة. وتضم المتاهيات، ومن بينها بالعات أميبية وحيدة الخلية، وكائنات مختلطة التغذية، وكائنات غيرية التغذية خيطية شبيهة بالفطريات تُنشئ شبكات مخاطية للحركة وامتصاص المغذيات، فضلًا عن بعض الطفيليات وعدد قليل من الأميبا ذات الغلاف. وتُضم كذلك في بيغيرا البيكوزوئيدات، وهي سوطيات بالعة تستهلك البكتيريا، وبلاسيدوزوا المرتبطة بها ارتباطًا وثيقًا، والتي تتكون من عدة مجموعات من السوطيات غيرية التغذية (مثل بلاسيديديا المحبة للملوحة في أعماق البحار) فضلًا عن المتعايشات المعوية المعروفة باسم أوبالينات (مثل طفيل الإنسان المتبرعمة الكيسية، والأوبالينيدات غير العادية للغاية، والتي تتكون من خلايا عملاقة ذات نوى وأهداب عديدة، والتي صُنفت خطأً في الأصل على أنها هدبيات).
وفي هذا الصدد، الطحالب الذهبية: وهي سوطيات وحيدة الخلية أو مستعمرة توجد في الغالب في بيئات المياه العذبة.
إضافةً إلى ذلك، داخل الطلائعيات التلفيفية، تُعد المجموعة الشقيقة للطحالب الداكنة هي الفطريات الكاذبة الخيطية التي تتغذى في الغالب عن طريق التناضح (أكثر من 1,200 نوع)، والتي تشمل ثلاث سلالات متميزة:
وفي هذا السياق، الطحالب البنية: وهي طحالب كبيرة خيطية أو متعددة الخلايا "حقيقية" (ذات أنسجة متمايزة) تُشكل أساس الكثير من الأنظمة البيئية البحرية المعتدلة والباردة، مثل غابات عشب البحر.
من جانب آخر، لمجموعة صغيرة من الأميبا غيرية التغذية الشبيهة بدوارات الشمس، وهي عفريسيات، موقع غير مؤكد، إما داخل الطحالب الداكنة أو كفرع حيوي شقيق لها.
وفي هذا الصدد، تضم شعبة الطلائعيات التلفيفية الطحالب الداكنة أو مغايرات الأسواط (أكثر من 23,000 نوع)، والتي تحتوي على بلاستيدات خضراء نشأت من طحلب أحمر. ومن بين هذه الأنواع، توجد الكثير من سلالات الطحالب التي تشمل مجموعة واسعة من الهياكل والأشكال. الفئات الثلاث الأكثر تنوعًا من الطحالب الداكنة هي:
كذلك، الطلائعيات البيضية الطفيلية أو فطريات الماء: (مثل لفحة)، والتي تشمل أغلب أنواع الفطريات الكاذبة.
كذلك، الهيفوكايتريدية الأقل تنوعًا وغير الطفيلية: التي تحافظ على نمط حياة شبيه بالفطريات.
التنوع
إضافةً إلى ذلك، إن تنوع الأنواع للطلائعيات مقدّر بأقل من قيمته الحقيقية إلى حدّ كبير، وذلك بالاستناد إلى الطرق التقليدية التي تميّز الأنواع بناءً على الخصائص المورفولوجية. إن عدد أنواع الطلائعيات الموصوفة منخفض جدًا (يتراوح من 26,000 إلى أكثر من 76,000) مقارنة بتنوع النباتات البرية والحيوانات والفطريات، التي تحظى بمعرفة ودراسة تاريخية وبيولوجية جيدة. ويختلف العدد المتوقع للأنواع كذلك إلى حدّ كبير، حيث يتراوح من 140,000 إلى 1,600,000، وفي عدة مجموعات يُضاعف العدد المتوقع للأنواع تعسفيًا. أغلب هذه التوقعات ذاتية للغاية. وقد كشفت التقنيات الجزيئية مثل الترميز الشريطي للحمض النووي البيئي عن تنوع هائل من الطلائعيات غير الموصوفة، والتي تمثل غالبية تسلسلات حقيقيات النوى أو الوحدات التصنيفية التشغيلية (OTUs)، مما يجعلها تتفوق على تلك الموجودة في النباتات البرية والحيوانات والفطريات. على هذا النحو، يُعتبر أن الطلائعيات تهيمن على تنوع حقيقيات النوى.
وفي السياق ذاته، شُرحت العلاقات التطورية للطلائعيات من خلال النسالة الجزيئية، وتسلسل الجينومات الكاملة والترانسكريبتومات، ودراسات المجهر الإلكتروني لجهاز السوط والهيكل الخلوي. ولا تزال السلالات الرئيسية الجديدة للطلائعيات والتنوع البيولوجي المستجد تُكتشف، مما يؤدي إلى تغييرات جذرية في شجرة الحياة لحقيقيات النوى. لا تعترف أنظمة التصنيف الأحدث لحقيقيات النوى بالمراتب التصنيفية الرسمية (مملكة، شعبة، طائفة، رتبة...)، وبدلاً من ذلك، تعترف فقط بالفرع الحيوي من الكائنات الحية ذات الصلة، مما يجعل التصنيف أكثر استقرارًا على المدى الطويل وأسهل في التحديث. في هذا المخطط التصنيفي الجديد، تُقسم الطلائعيات إلى فروع مختلفة تُسمى بشكل غير رسمي المجموعات الفائقة. تندرج أغلب حقيقيات النوى ذاتية التغذية ضمن الفرع الحيوي "نواتح"، التي تحتوي على المجموعات الفائقة "نباتات أصلية" (والتي تشمل النباتات البرية) و"سار" (بما في ذلك تيلونيميا، وسوطيات قشية، والطلائعيات السناخية، والجذرية)، إلى جانب شعبتي كريبتيستا والطلائعيات اللمسية. وتندرج الحيوانات والفطريات ضمن المجموعة الفائقة "عديمات الشكل"، التي تحتوي على شعبة أميبيات وعدة سلالات أخرى من الطلائعيات. وتُعرف مجموعات مختلفة من حقيقيات النوى ذات البنية الخلوية البدائية مجتمعة باسم الطلائعيات الكهفية.
التغذية البلعمية
من جانب آخر، تتكون التغذية بالبلعمة من مرحلتين: تركيز جزيئات الغذاء في البيئة، والبلعمة، التي تحصر جزيئة الغذاء في فجوة عصارية (الجسم البلعمي) حيث يحدث الهضم. وفي الهدبيات وأغلب السوطيات البلعمية، يحدث الهضم في المنطقة الفموية أو الفم الخلوي، والذي يغطيه غشاء واحد تتكون منه الفجوات العصارية؛ ثم يمكن نقل الجسيمات البلعمية إلى داخل الخلية على طول البلعوم الخلوي. أما في الأميبات، فتحدث البلعمة في أي مكان على سطح الخلية. ويبلغ متوسط حجم جزيئة الغذاء قرابة عُشر حجم الخلية الطلائعية.
من جهة ثانية، يطلق على مستهلكي بدائيات النواة شعبياً اسم آكلات البكتيريا (مثل: أغلب الأميبات)، بينما يعرف مستهلكو حقيقيات النواة (بما في ذلك الطفيليات التناضحية التغذية) بآكلات حقيقيات النواة. وعلى وجه الخصوص، فإن آكلات حقيقيات النواة التي تتغذى على الطلائعيات وحيدة الخلية هي آكلات الخلايا (مثل: كولبونيميدز، كولبوديليدز، الكثير من الأميبات، بعض الهدبيات)؛ وتلك التي تتغذى على الفطريات هي آكلات الفطريات أو رمّامات (مثل: عائلة الهدبيات غروسغلوكنر أويداي من آكلات الفطريات الإجبارية)؛ وتلك التي تفترس الديدان الأسطوانية هي آكلات الديدان الأسطوانية؛ وتلك التي تتغذى على الطحالب هي آكلات الطحالب (مثل: فامبيريليدز).
إضافةً إلى ذلك، يمكن تصنيف الطلائعيات البلعمية التغذية بشكل أكبر بحسب كيفية حصولها على المغذيات. فالكائنات المغذية بالترشيح تحصل على جزيئات طعام صغيرة معلقة أو خلايا بدائية النواة وتجمعها عن طريق الترشيح إلى الفم الخلوي (مثل: السوطيات الطوقية، وبعض الطحالب الذهبية، وأغلب الهدبيات)؛ وتجمع السوطيات المغذية بالترشيح الجزيئات عن طريق دفعها بالسوط عبر طوق من المجسات الصلبة أو الأقدام الكاذبة التي تعمل كمرشح، بينما تولّد الهدبيات المغذية بالترشيح تيارات مائية عبر الأهداب ومناطق الأغشية المحيطة بالفم الخلوي. أما الكائنات المغذية المفترسة (مثل: البيكوسيكيديات، الكريسيمونادات، ذوات منشأ الحركة، بعض اليوغلينيات، الكثير من السوطيات الدوارة والهدبيات)، فبدلاً من الاحتفاظ بجميع الجزيئات بالجملة، تلتقط كل جزيئة على حدة. ومن بين الطلائعيات المفترسة، تبحث "الراعية" عن الفريسة وتبتلعها من الأسطح المغطاة بالعناصر الغذائية المحتملة مثل الطبقات البكتيرية، بينما "المفترسات" تطارد الفريسة النادرة بنشاط. أما المفترسات التي تتغذى على الطحالب الخيطية أو خيوط الفطريات فإما تبتلع الخيوط بالكامل أو تخترق جدار الخلية وتبتلع السيتوبلازم (مثل: فيريديرابتوريداي). قد يكون لدى المفترسات تكيفات لاصطياد الفريسة، مثل "الكيسيات السامة" التي تشل خلايا الفريسة. وقد طورت بعض الهدبيات نوعاً متخصصاً من التغذية المفترسة يسمى "أكل الأنسجة"، حيث تهاجم الحيوانات التالفة ولكن الحية (مثل: الديدان الحلقية والقشريات الصغيرة)، وتدخل الجروح، وتبتلع الأنسجة الحيوانية. تحصر الأميبات المفترسة الكبيرة فريستها في "كأس غذائي" من الأقدام الكاذبة، قبل تكوين الفجوة الغذائية. وأخيراً، تبتلع الكائنات المغذية بالانتشار (مثل: الشمسيات، المثقبات، والكثير من الأميبات الأخرى، الهدبيات الماصة) الفريسة التي تصطدم بأقدامها الكاذبة أو، في حالة الهدبيات، مجسات تحمل كيسيات سامة أو أجسام طاردة لشل حركة الفريسة.
المجموعات اليتيمة
ومن جهة أخرى، لا تنتمي الكثير من السلالات الأصغر إلى أي من المجموعات الفائقة الرئيسية الثلاث، وبدلاً من ذلك، تشغل موقعًا "على مستوى المملكة" عميق التفرع في تطور حقيقيات النواة. غالبًا ما تكون مجموعات غير معروفة جيدًا ببيانات محدودة وعدد قليل من الأنواع، ويُشار إليها عادةً باسم "المجموعات اليتيمة". الفرع الحيوي سي آر يو إم إس، لفظ مركب من أوائل حروف المجموعة التالية:
علاوةً على ذلك، وهي الفرع الحيوي الشقيق لعديمات الشكل. الأميسروموناديدا (35 نوعًا) هي سوطيات مائية منزلقة ذات سوطين، تقع بالقرب من عديمات الشكل ومجموعة سي آر يو إم إس. الهيميمستيجوفورا (عشرة أنواع)، أو الهيميمستيجوتات، هي سوطيات مفترسة ذات مورفولوجيا خلوية مميزة وصفين من نحو اثني عشر سوطًا. البروفورا (ثمانية أنواع) هي سوطيات مفترسة ذات مورفولوجيا غير ملحوظة تشبه تلك الخاصة بالطلائعيات الكهفية والسوطيات الأخرى ذات السوطين. كان يُعتقد أن كلتا مجموعتي الهيميمستيجوفورا والبروفورا ترتبطان بالنواتح أو تقعان ضمنها، على الرغم من أن تحليلات إضافية وضعتهما في فرع حيوي منفصل جنبًا إلى جنب مع نوع غامض من الأوليات المفترسة، وهو "ميتيورا سبوراديكا". يتميز هذا النوع بمورفولوجيا رائعة: يفتقر إلى الأسواط، ومتماثل جانبيًا، وله زوج من "الأذرع" الجانبية التي تتأرجح ذهابًا وإيابًا، ويحتوي على نظام حركة لا يشبه أي نظام آخر.
وفي هذا الصدد، هناك كذلك الكثير من الأجناس ذات الانتماء غير المؤكد بين حقيقيات النواة لأن حمضها النووي لم يُعاير، وبالتالي فإن علاقاتها التطورية غير معروفة. أحد أنواع الشمسيات الغامضة كبير جدًا لدرجة أنه لا يتطابق مع وصف أي جنس معروف، ونُقل بالتالي إلى جنس منفصل يسمى بيركليا سول مع وضع غير واضح، على الرغم من أنه ينتمي على الأرجح إلى النواتح جنبًا إلى جنب مع جميع الشمسيات الأخرى. يعد الكائن الحي باراكاريون أصعب في التصنيف، لأنه يتشارك سمات من بدائيات النواة وحقيقيات النواة على حد سواء.
- الكولوديكتيونيدات حرة السباحة (سبعة أنواع) ذات سوطين إلى أربعة أسواط.
- الريجيفيليدا الأميبية (نوعان) ذات الأقدام الكاذبة الخيطية.
- المانتوموناديدات المنزلقة (ثلاثة أنواع).
- الغليساندريدات (نوعان) ذات سوطين.
التنظيم الأسموزي
وفي هذا السياق، تحتاج الكثير من الطلائعيات التي تعيش في المياه العذبة إلى تنظيم أسموزي (أي إزالة حجم الماء الزائد لضبط تركيزات الأيونات) لأن الماء غير الملحي يدخل بكميات زائدة عن طريق التناضح من البيئة وعن طريق الإدخال الخلوي عند التغذية. يُنظم التناضح من خلال ناقلات الأيونات النشطة في غشاء الخلية وعبر الفجوات الانقباضية، وهي عضيات متخصصة تطرح بشكل دوري سائلًا غنيًا بالبوتاسيوم والصوديوم عبر دورة من الانبساط والانقباض. تتوقف الدورة عندما توضع الخلايا في وسط ذي ملوحة مختلفة، حتى تتكيف الخلية.
في هذا الإطار، تحاط الفجوات الانقباضية بالنسيج الإسفنجي، وهو عبارة عن مجموعة من الحويصلات أو الأنابيب السيتوبلازمية التي تجمع السائل ببطء من السيتوبلازم إلى داخل الفجوة. تنقبض الفجوات لاحقًا وتفرغ السائل خارج الخلية عبر مسام. تختلف آلية الانقباض باختلاف الطلائعيات: ففي الهدبيات، يتكون النسيج الإسفنجي من نبيبات غير منتظمة وتلتف خيوط الأكتين حول المسام وفوق سطح الفجوة، فضلًا عن الأنيبيبات الدقيقة؛ وفي أغلب السوطيات والأميبات، يتكون النسيج الإسفنجي من كل من الحويصلات والنبيبات؛ وفي السوطيات الدوارة، تتفرع جذير سوطي لتشكيل غمد انقباضي حول الفجوة (يُعرف باسم الكيس الدافعة). يختلف الموقع والكمية كذلك: فالطحالب السوطية وحيدة الخلية (مثل مخفيات النبت، اليوغلينات، البراسينيوم، الطحالب الذهبية، لمسيات النبت، إلخ) تمتلك عادةً فجوة انقباضية واحدة في موقع ثابت؛ أما الأميبات العارية فلديها الكثير من الحويصلات الصغيرة التي تندمج لتشكل فجوة واحدة ثم تنقسم مرة أخرى بعد الإخراج. الأوليات البحرية أو الطفيلية (مثل فوق المونيات)، وكذلك تلك التي لها جدران خلوية صلبة، تفتقر إلى هذه الفجوات.
حقبة الحياة الوسطى
علاوةً على ذلك، في نحو الجوراسي المبكر-المتوسط، بعد حدث الأكسجة البحرية العالمي في التوارسي، حدث تنوع في السوطيات الدوارة والبذيرات الجيرية، من حيث الأنواع والوفرة. وشهدت هذه الفترة كذلك اكتمال تعايش بين شعوعيات الأكانثاريا وسلالات من لمسيات النبت من جنس فايوسيستيس، إلى جانب ظهور المثقبات العوالقية. تنتهي فترة انخفاض الأكسجين الجوي عند حدود الأبتي-الألبيان خلال الطباشيري المبكر، وتظهر أول أحافير الدياتومات والسيليكوفلاجيلات. تحتوي عينات الكهرمان التي يعود تاريخها إلى قرابة 100 مليون سنة مضت على أقدم سجلات أحافير معقدات القمة (وخاصة عوامل الملاريا والجريجارينات)، والمُثقبيات، وفوق مونيات — وخاصة ذوات الجسيم القاعدي التكافلية للصراصير، مما يُمثل أقدم سجل للتعايش بين الطلائعيات والحيوانات.
في هذا الإطار، تسبب حدث الانقراض البرمي-الترياسي (~251.9 مليون سنة مضت) في انقراض الكثير من الشعوعيات، والذي يظهر كفجوة في سجل الصوان. يُفترض أن الانقراض قد نتج عنه الأصل الجزيئي للدياتومات والبذيرات الجيرية الحديثة. شهدت فترة الترياسي الأوسط إلى المتأخر تسارعاً في تنوع الشعوعيات وظهور عدة مجموعات من الأحافير النانوية الكلسية. أولاً، ظهرت أحافير نانوية مختلفة، بعضها ينتمي إلى دينوكيسات، في وقت مبكر نحو 235 مليون سنة مضت. لاحقاً، نشأت أقدم بذيرات جيرية قابلة للتحديد، وهي كروسيرهابْدوس مينوتوس (205-201 مليون سنة مضت)، فضلًا عن أقدم أحافير الفايوداريا. يوجد تنوع من الأوليات، بما في ذلك الهدبيات ذات الأجسام الرخوة، والطحالب الخيطية الموجودة في الكهرمان من أواخر الترياسي (220-230 مليون سنة مضت).
من جانب آخر، تسبب تنوع البذيرات الجيرية، والسوطيات الدوارة المختلطة التغذية، ثم الدياتومات لاحقاً عبر حقبة الحياة الوسطى، في تسارع انتقال الإنتاج الأولي إلى مستويات غذائية أعلى. وكان هذا التشعب التطوري للعوالق النباتية، بدوره، مسؤولاً عن "الثورة البحرية الميزوزويكية" الحيوانية، التي تميزت بظهور الافتراس الواسع النطاق بين أغلب شعب اللافقاريات. أصبحت البذيرات الجيرية، والسوطيات الدوارة، وخاصة الدياتومات هي المنتجات حقيقية النواة المهيمنة في المحيطات حتى اليوم، على عكس البكتيريا الزرقاء والطحالب الخضراء التي كانت تهيمن في وقت سابق.
التغذية المختلطة
وفي هذا الصدد، أغلب الطلائعيات ذاتية التغذية هي كائنات مختلطة التغذية وتجمع بين عملية التمثيل الضوئي والبلعمة. تصنف إلى مجموعات وظيفية متنوعة أو 'أنماط تغذية مختلطة'. الكائنات مختلطة التغذية المتأصلة تمتلك قدرة فطرية على القيام بالتمثيل الضوئي من خلال البلاستيدات الخضراء الموجودة مسبقًا، ولديها سلوكيات تغذية متنوعة، حيث إن بعضها يتطلب التغذية الضوئية والبعض الآخر يتطلب التغذية بالبلعمة، وبعضها الآخر كائنات مختلطة التغذية إجبارية (مثل السوطيات النانوية كبعض لمسيات النبت والسوطيات الدوارة). تكتسب الكائنات مختلطة التغذية غير المتأصلة القدرة على القيام بالتمثيل الضوئي عن طريق سرقة البلاستيدات الخضراء من فرائسها، وتعرف هذه العملية باسم سارقة البلاستيدات. تنقسم الكائنات غير المتأصلة إلى نوعين: عامة، والتي تستطيع سرقة البلاستيدات الخضراء من مجموعة متنوعة من الفرائس (مثل الهدبيات قليلة الأهداب)، أو متخصصة، والتي لا تستطيع اكتساب البلاستيدات الخضراء إلا من عدد قليل من الفرائس المحددة (مثل رابازا فيريدس التي لا تستطيع السرقة إلا من خلايا تتراسيلمس). تنقسم الأنواع المتخصصة كذلك إلى نوعين: بلاستيدية، والتي تحتوي على بلاستيدات متمايزة (مثل ميسودينيوم ودينوفيسيس)، وتكافلية داخلية، والتي تحتوي على متعايشات داخلية كاملة (مثل الطلائعيات الجذرية مختلطة التغذية كالمثقبات والشعوعيات، والسوطيات الدوارة مثل نوكتيلوكا).
وعلى صعيد آخر، بين الطلائعيات غيرية التغذية حصريًا، تُلاحظ كذلك أنماط تغذية متنوعة. يمكن للدبلونيميات، التي تعيش في المياه العميقة حيث ينعدم التمثيل الضوئي، أن تتحول بمرونة بين التغذية الأسموزية والتغذية البكتيرية اعتمادًا على الظروف البيئية.
المستهلكات
إضافةً إلى ذلك، في الشبكات الغذائية للتربة، تُعد الطلائعيات المستهلك الرئيسي لكل من البكتيريا والفطريات، وهما المساران الرئيسيان لتدفق المغذيات نحو المستويات الغذائية الأعلى. تُعد الأميبا السوطية مثل الغليسومونادات والمذيلات من بين أكثر الطلائعيات وفرة في التربة: فهي تمتلك كلاً من الأسواط والأقدام الكاذبة، وهو تنوع شكلي مناسب تماماً للبحث عن الطعام بين جزيئات التربة. تتأقلم الأميبا القشرية كذلك مع بيئة التربة، حيث تحمي أصدافها من الجفاف. ككائنات راعية للبكتيريا، تلعب دوراً مهماً في الشبكة الغذائية: فهي تُفرز النيتروجين على شكل أمونيا، مما يجعله متاحاً للنباتات والكائنات الدقيقة الأخرى. تقليدياً، اعتُبرت الطلائعيات آكلة للبكتيريا بشكل أساسي بسبب التحيزات في تقنيات الاستزراع، ولكن العديد منها (مثلًا، الفامبيرليدات، السيركومونادات، الجيمناميبا، الأميبا القشرية، السوطيات الصغيرة) هي كائنات قارتة تتغذى على مجموعة واسعة من حقيقيات النواة في التربة، بما في ذلك الفطريات وحتى بعض الحيوانات مثل الديدان الأسطوانية. تُشكل الطلائعيات آكلة البكتيريا والفطريات كُتلاً حيوية متشابهة.
كذلك، على عكس التقسيم الشائع بين العوالق النباتية والعوالق الحيوانية، يتكون جزء كبير من العوالق البحرية من طلائعيات مختلطة التغذية، والتي تُشكل أهمية ووفرة مُستخفّ بها إلى حد كبير (نحو 12% من جميع متتاليات الحمض النووي البيئي البحري). تتمتع الكائنات مختلطة التغذية بوجود متفاوت بسبب الوفرة الموسمية واعتماداً على نوعها المحدد من التغذية المختلطة. توجد الكائنات مختلطة التغذية التأسيسية في نطاق شبه كامل من الظروف المحيطية، من الموائل الضحلة الغنية بالمغذيات إلى المياه شبه الاستوائية قليلة المغذيات ولكنها تهيمن في الغالب على المنطقة الضوئية، وتُشكل أغلب افتراس البكتيريا. وهي مسؤولة كذلك عن التكاثر الطحلبي الضار. تتمتع الكائنات مختلطة التغذية غير التأسيسية التي تحتوي على بلاستيدات والأنواع العامة بتوزيع جغرافي حيوي مماثل ووفرة منخفضة، وتُوجد في الغالب في المياه الساحلية الغنية بالمغذيات، مع هيمنة الهدبيات العامة على ما يصل إلى نصف مجتمعات الهدبيات في المنطقة الضوئية. أخيراً، تُعد الكائنات مختلطة التغذية المتعايشة داخلياً إلى حد بعيد النوع غير التأسيسي الأكثر انتشاراً ووفرة، حيث تمثل أكثر من 90% من جميع متتاليات الكائنات مختلطة التغذية (أغلبها شعوعيات).
من جهة ثانية، تُعد الطلائعيات البالعة المجموعة الوظيفية الأكثر تنوعاً في جميع النظم البيئية، وتُمثل بشكل أساسي بالحيوانات المذيلة (المهيمنة في المياه العذبة والتربة)، والشعوعيات (المهيمنة في المحيطات)، والسوطيات القشية غير الضوئية (ذات الوفرة الأعلى في التربة منها في المحيطات)، والهدبيات.
الطلائعيات السناخية
كذلك، تتميز الطلائعيات السناخية بوجود سناخ قشرية، وهي أكياس سيتوبلازمية تقع تحت الغشاء الخلوي ووظيفتها الفسيولوجية غير معروفة. وتضم هذه المجموعة ثلاثًا من أشهر مجموعات الطلائعيات: معقدات القمة، والسوطيات الدوارة، والهدبيات. الهدبيات (الهَوادِب) مجموعة شديدة التنوع (أكثر من 8,000 نوع) وربما هي الأكثر دراسة بشكل شامل بين مجموعات الطلائعيات. وهي في الغالب كائنات حرة المعيشة مجهرية تتميز بخلايا كبيرة مغطاة بصفوف من الأهداب وتحتوي على نوعين من النوى: نواة صغيرة ونواة كبيرة. تُعد الهدبيات حرة المعيشة عادةً من المستهلكات الثانوية والحيوانات المفترسة الرئيسية في الشبكات الغذائية الميكروبية، وتتغذى على البكتيريا وحقيقيات النواة الأصغر حجمًا، وتوجد في مجموعة متنوعة من الأنظمة البيئية، على الرغم من أن عددًا قليلًا من الأنواع يقوم بالاستيلاء على البلاستيدات. بعضها الآخر طفيلي للعديد من الحيوانات. تتمتع الهدبيات بموقع أساسي في تطور الطلائعيات السناخية، جنبًا إلى جنب مع عدد قليل من أنواع السوطيات غيرية التغذية ذات السوطين المعروفة مجتمعة باسم الكولبونيميدات.
وعلى صعيد آخر، يحتوي الفرع الآخر من الماصات على السوطيات الدوارة وأقربائها، البيركينسيدات، وهي مجموعة صغيرة (26 نوعًا) من الطفيليات المائية داخل الخلايا التي فقدت قدرتها على التمثيل الضوئي بشكل مشابه لمعقدات القمة. وتتكاثر عبر أبواغ سوطية تصيب السوطيات الدوارة، الرخويات، والأسماك. في المقابل، تُعد السوطيات الدوارة مجموعة شديدة التنوع (نحو 4,500 نوع) من الطحالب المائية التي احتفظت بأغلب بلاستيداتها الخضراء، على الرغم من أن الكثير من السلالات فقدت بلاستيداتها الخاصة وبدلًا من ذلك تعيش ككائنات غيرية التغذية أو تكتسب بلاستيدات خضراء جديدة من مصادر أخرى، بما في ذلك التعايش الداخلي الثلاثي والاستيلاء على البلاستيدات. أغلب السوطيات الدوارة حرة المعيشة وتشكل جزءًا مهمًا من العوالق النباتية، فضلًا عن كونها سببًا رئيسيًا لازدهار الطحالب الضارة بسبب سميتها؛ وبعضها يعيش كمتعايشات مع الشعاب المرجانية، مما يسمح بتكوين الشعاب المرجانية. تُظهر السوطيات الدوارة تنوعًا في التراكيب الخلوية، مثل العيون المعقدة الشبيهة بالعيون البسيطة، والفجوات المتخصصة، والعضيات المضيئة بيولوجيًا، وجدار يحيط بالخلية يُعرف بالدرع (غطاء).
وفي هذا الصدد، تُجمع بقية الطلائعيات السناخية تحت الفرع الحيوي الميزوزوا (الماصات)، التي اكتسب سلفها المشترك البلاستيدات الخضراء من خلال تعايش داخلي ثانوي مع طحالب حمراء. يحتوي أحد فروع الماصات على معقدات القمة وأقربائها، وهي سلالة صغيرة من السوطيات تُعرف باسم الكرومبوديليدا حيث تتشابك السوطيات ذاتية التغذية وغيرية التغذية، والتي تُسمى الكروميريدات والكولبوديليدات على التوالي، من الناحية التطورية. في المقابل، فإن معقدات القمة مجموعة كبيرة (أكثر من 6,000 نوع) ومتخصصة للغاية من الطفيليات الإجبارية التي فقدت جميعها ثانويًا قدرتها على التمثيل الضوئي (مثلًا، المتصورة). وتمتص مراحلها البالغة المغذيات من المضيف عبر الغشاء الخلوي، وتتكاثر بين المضيفين عبر البوغيات، والتي تُظهر مركب عضوي (صانعة القمة) تطور من بلاستيدات خضراء غير ضوئية.
علم أحياء الطلائعيات
ومن جهة أخرى، بشكل عام، تحوي الطلائعيات خلايا حقيقية النواة نموذجية تتبع نفس مبادئ علم الأحياء الموصوفة لتلك الخلايا ضمن الكائنات حقيقية النواة "الأعلى" (الحيوانات والفطريات والنباتات الأرضية). ومع ذلك، طوّرت العديد منها مجموعة متنوعة من التكيفات الفسيولوجية الفريدة التي لا تظهر في باقي الكائنات حقيقية النواة، وفي الواقع تشمل الطلائعيات على وجه التقريب كل الطيف الواسع من الخصائص البيولوجية المتوقعة في الكائنات حقيقية النواة.
بيئة الطلائعيات
وفي السياق ذاته، تُعد الطلائعيات ضرورية للنظم البيئية الحديثة في جميع أنحاء العالم. كما كانت المكون الوحيد من حقيقيات النواة لجميع النظم البيئية لجزء كبير من تاريخ الأرض، مما سمح لها بتطوير تنوع وظيفي هائل يفسر أهميتها البيئية الحاسمة. إنها أساسية كمنتجات أولية، ووسائط في مستويات غذائية متعددة، وكمنظمين رئيسيين كطفيليات أو شبيهات الطفيلية، وشركاء في تعايشات متنوعة.
المنتجات الأولية
إضافةً إلى ذلك، تُعد الطلائعيات المجهرية ذاتية التغذية الضوئية (أو الطحالب الدقيقة) المساهم الرئيسي في الكتلة الحيوية والإنتاج الأولي في جميع البيئات المائية على وجه التقريب، حيث تُعرف مجتمعة باسم العوالق النباتية (جنباً إلى جنب مع البكتيريا الزرقاء). في العوالق النباتية البحرية، تهيمن الأصغر حجماً، البلانكتون الصغير (<2 ميكرومتر) والبلانكتون النانوي (2-20 ميكرومتر)، على عدة أنواع مختلفة من الطحالب (لمسيات النبت، الطحالب الحُبيبية، براسينوفيت)؛ بينما تهيمن الدياتومات والسوطيات الدوارة على الأجزاء الأكبر من 5 ميكرومتر. في العوالق النباتية للمياه العذبة، تُعد الطحالب الذهبية، ومخفيات النبت، والسوطيات الدوارة المجموعات الأكثر وفرة. إجمالاً، هي مسؤولة عن ما يقرب من نصف الإنتاج الأولي العالمي. إنها المزود الرئيسي لجزء كبير من الطاقة والمادة العضوية التي تستعملها البكتيريا، والعتائق، والمستويات الغذائية الأعلى (العوالق الحيوانية والأسماك)، بما في ذلك العناصر الغذائية الأساسية مثل الأحماض الدهنية. تعتمد وفرتها في المحيطات بشكل أساسي على توافر المغذيات غير العضوية، بدلاً من درجة الحرارة أو ضوء الشمس؛ وهي الأكثر وفرة في المياه الساحلية التي تستقبل جريان المياه الغني بالمغذيات من اليابسة، والمناطق التي تصل فيها مياه المحيط العميقة الغنية بالمغذيات إلى السطح، وتحديداً مناطق الارتفاع في المحيط المتجمد الشمالي وعلى طول الحواف القارية. في موائل المياه العذبة، تُعد أغلب الطلائعيات ذاتية التغذية الضوئية مختلطة التغذية، مما يعني أنها تتصرف كذلك كمستهلكات، بينما تكون المستهلكات الصارمة (غيريات التغذية) أقل وفرة.
وفي هذا السياق، الطحالب الكبيرة (العشب البحري) (تحديداً الطحالب الحمراء، والطحالب الخضراء، والطحالب البنية)، على عكس العوالق النباتية، تتطلب عموماً نقطة تثبيت، مما يحد من توزيعها البحري إلى المياه الساحلية، وبشكل خاص إلى الركائز الصخرية. تدعم الكثير من الحيوانات آكلة الأعشاب، وخاصة القاعية منها، كغذاء وملاذ من الحيوانات المفترسة. توجد بعض مجتمعات الأعشاب البحرية منجرفة على سطح المحيط، وتعمل كملاذ ووسيلة انتشار للكائنات الحية المرتبطة بها.
كذلك، تُعد الطلائعيات ذاتية التغذية الضوئية وفيرة في التربة بقدر ما هي في نظرائها المائية. بالنظر إلى أهمية الطحالب المائية، قد تُساهم طحالب التربة بمساهمة أكبر في دورة الكربون العالمية مما كان يُعتقد سابقاً، ولكن حجم تثبيت الكربون فيها لم يُحدد بعد. أغلب طحالب التربة هي سوطيات قشية (الدياتومات، والطحالب الخضراء المصفرة، والطحالب اليوستيغمية) والنباتات الأصلية (الطحالب الخضراء). يوجد كذلك وجود للحمض النووي البيئي من السوطيات الدوارة ولمسيات النبت في التربة، ولكن لم تُشاهد أي أشكال حية منها.
حقبة الحياة القديمة
في هذا الإطار، تظهر أصداف الشعوعيات بوفرة في السجل الأحفوري منذ العصر الكمبري، حيث عُثر على أولى أحافير الشعوعيات المؤكدة في بداية هذه الفترة (~540 مليون سنة مضت) جنباً إلى جنب مع أول الحيوانات الصغيرة ذات الأصداف. لقد جرى تجاهل سجلات الشعوعيات من صخور حقبة ما قبل الكمبري الأقدم بسبب نقص الأحافير الموثوقة. وفي قرابة هذا الوقت، بين 540 و510 مليون سنة مضت، ظهرت أقدم أصداف المثقبات، متعددة الحجرات أولاً ثم أنبوبية لاحقاً.
ومن ناحية أخرى، يشتمل العصر الأوردوفيشي كذلك على أقدم أحفورة لطحالب يوغلينية، تُعرف باسم موييريا، والتي توجد في صخور تمتد من الأوردوفيشي الأوسط (~471 مليون سنة مضت) إلى السيلوري. هناك سجلات مفترضة للمثقبات الكلسية من الأوردوفيشي المبكر إلى السيلوري، ولكن هذه السجلات غير مقبولة على نطاق واسع؛ وتظهر أقدم المثقبات الكلسية الموثوقة والمعروفة في الديفوني الأوسط، وهي الفترة الجيولوجية التالية.
كذلك، خلال العصر الكربوني، لم تنشأ أي طلائعيات جديدة قابلة للتحجر على الرغم من التغيرات البيئية الكبيرة. ومع ذلك، بدءاً من الكربوني المتأخر، زاد تنوع وإنتاجية الشعوعيات، مما أدى إلى تراكم كمية كبيرة من الرواسب السيليسية الحيوية (صخر صواني) في جميع أنحاء العالم؛ يُعرف هذا بحدث الحد الأقصى للشعوعيات، والذي استمر بشكل رئيسي من البرمي الأوسط حتى الطباشيري المبكر. حول حدث انقراض الكابتاني (262-259 مليون سنة مضت) في العصر البرمي، تفرعت البذيرات الجيرية جينياً عن بقية لمسيات النبت، ربما كاستجابة لانخفاض الأكسجين في الغلاف الجوي، وحدث تحول في الكائنات الحيوانية من المغزليات الأكبر إلى الأصغر حجماً. تظهر الشعوعيات السبوبيلارية في أواخر البرمي.
ومن ناحية أخرى، بعد الانفجار الكمبري والتنوع السريع للحيوانات، حلت المجتمعات القاعية بشكل أساسي والمجتمعات القاعية-السابحة محل النظم البيئية التي كانت تهيمن عليها الميكروبات في حقبة ما قبل الكمبري، مع اقتصار أغلب الكائنات البحرية (الحيوانات، المثقبات، الشعوعيات) على أعماق بيئات المياه الضحلة. وبموازاة "تشعب" الحيوانات، حدث تشعب للطلائعيات العوالق النباتية (أي الأكريتارك) نحو 520-510 مليون سنة مضت، تبعه انخفاض في التنوع قرابة 500 مليون سنة مضت. لاحقاً، توسعت الأكريتارك الباقية في التنوع والابتكار المورفولوجي بسبب انخفاض الافتراس من الحيوانات القاعية (وخاصة ثلاثيات الفصوص والعضديات)، التي عانت من الانقراض بسبب عوامل بيئية مختلفة مقترحة مثل نقص الأكسجين. ازدهرت كل من العوالق النباتية والعوالق الحيوانية (مثل الشعوعيات)، كما أشارت زيادة الكربون العضوي المدفون في الرواسب والمعروف بحدث انحراف نظير الكربون الموجب للستبتويان (SPICE) (~497 مليون سنة مضت). وقد دعمت هذه الكتلة الحيوية الوفيرة تشعباً حيوانياً ثانياً يُعرف بحدث التنوع البيولوجي الأوردوفيشي العظيم (GOBE)، حيث تحولت الكثير من الحيوانات إلى نمط حياة عوالقي وظهرت المفترسات البحرية لأول مرة (مثل رأسيات الأرجل، ومفصليات الأرجل السابحة). يُعرف هذا الحدث كذلك باسم "ثورة العوالق الأوردوفيشية" بسبب التنوع الكبير في الطلائعيات العوالق، وامتد من أواخر الكامبري حتى الأوردوفيشي.
وعلى صعيد آخر، في النظم البيئية الأرضية للديفوني المبكر، عُثر على أول أحافير للأميبا القشرية من نوع الأرسلينيد في المياه العذبة (مثل بالايوليفتوكلاميس، وكانغويلا)، فضلًا عن أنواع مختلفة من الطحالب الخضراء في المياه العذبة، بما في ذلك النباتات الكاريانية، والفولفوسينات، والدسميديات، وبعض أحافير الطحالب المفترضة التي قد تُمثل الطحالب الزرقاء. خلال الديفوني، اكتسبت بعض المثقبات القاعية القدرة على التكلس، وأصبحت المغزليات على وجه الخصوص هي الطلائعيات المتحجرة المهيمنة. تُعتبر هذه الفترة الزمنية كذلك الأصل الجزيئي للمسيات النبت (~310 مليون سنة مضت) والسيليكوفلاجيلات (397-382 مليون سنة مضت)، والتي لم تترك آثاراً أحفورية إلا لاحقاً في حقبة الحياة الوسطى. بعد انقراض الديفوني المتأخر (372 مليون سنة مضت)، ظهرت الشعوعيات الشبيهة بالناسلاريان لأول مرة، ذات تصميم جسم فريد بين الطلائعيات البحرية.
النواتح
إضافةً إلى ذلك، تضم مجموعة النواتح جميع الكائنات حقيقية النواة التي تقوم بعملية التمثيل الضوئي على وجه التقريب. وداخل هذه السلالة، تجمع المجموعة العليا المسماة "تي سار" تنوعًا هائلاً من الطلائعيات. يُعد "تيلونيميا" العضو الأكثر قاعدية في تفرعات "تي سار"، وهو شعبة صغيرة (تضم سبعة أنواع) من السوطيات المفترسة ذات التغذية البلعومية الغامضة، والتي توجد في البيئات البحرية والمياه العذبة (ولكنها قد تكون كذلك السلالة الشقيقة لمجموعة الطلائعيات اللمسية، أي أنها لا تشكل فرع حيوي "تي سار" المفترضة). تشترك هذه الكائنات في بعض أوجه التشابه الخلوية مع السلالات الثلاث المتبقية: الجذريات، السناخية، والسوطيات القشية، والتي تُعرف مجتمعة باسم المجموعة العليا "سَار". تُعد النباتات الأصلية فرع حيوي آخر شديدة التنوع ضمن النواتح، وتضم النباتات الأرضية ومجموعة متنوعة من الطحالب. علاوةً على ذلك، تنتمي مجموعتان أصغر، وهما "الطلائعيات اللمسية" و"كريبتيستا"، كذلك إلى النواتح.
التكاثر اللاجنسي
وفي هذا السياق، غالباً ما تتكاثر الطلائعيات وحيدة الخلية عبر الانشطار الثنائي، على غرار البكتيريا. يمكنها كذلك الانقسام عن طريق التبرعم، على غرار الخمائر، أو عن طريق الانشطارات المتعددة، وهي عملية تُعرف باسم التقطيع أو التناسل. في الطلائعيات متعددة الخلايا، قد يأخذ التكاثر الخضري شكل تجزئة أجزاء الجسم، أو التكاثر بواسطة تراكيب متخصصة مكونة من عدة خلايا (مثلًا، في الطحالب الحمراء).
وعلى صعيد آخر، تتكاثر الطلائعيات عادةً تكاثراً لاجنسياً في ظل الظروف البيئية الملائمة، مما يسمح بنمو سكاني أُسّي سريع مع الحد الأدنى من التنوع الجيني. يحدث هذا التكاثر اللاجنسي من خلال الانقسام المتساوي وقد اعتُبر تاريخياً النمط التكاثري الأساسي في الطلائعيات. تُعرف هذه العملية كذلك بالتكاثر الخضري، حيث لا يُؤديها إلا "الطور الخضري" أو الفرد.
الطلائعيات اللمسية وكريبتستا
وفي السياق ذاته، شعبة الكريبتستا هي فرع حيوي يضم ثلاث مجموعات متميزة من الطلائعيات وحيدة الخلية: مخفيات النبت، والكاتابليهاريدات، ونوع بالبيتوموناس بيليكس. مخفيات النبت (أكثر من 100 نوع)، والمعروفة كذلك باسم الكريبتوفايتس، هي طحالب سوطية توجد في الموائل المائية ذات الملوحة المتنوعة، وتتميز بعضياتها القاذفة أو الإجيكتيسومات. وتحتوي بلاستيداتها الخضراء، ذات الأصل الطحلبي الأحمر، على نواة مصغرة، وهي بقايا لنواة حقيقية النواة تابعة للطحالب الحمراء التعايشية الداخلية. الكاتابليهاريدات، أقرب الأقارب مخفيات النبت، هي سوطيات غيرية التغذية ذات سوطين، وتتميز كذلك بالإجيكتيسومات. ونوع بالبيتوموناس بيليكس هو العضو الأكثر قاعدية في تفرع الكريبتستا، وهو سوطي بحري غيري التغذية ذو سوطين، ولكنه على عكس الأعضاء المتبقية يفتقر إلى الإجيكتيسومات.
علاوةً على ذلك، الطلائعيات اللمسية وكريبتستا هما شعيبتان متشابهتان من الطلائعيات وحيدة الخلية، كان يُعتقد سابقًا أنهما مرتبطان ارتباطًا وثيقًا، ويُعرفان معًا باسم هكروبيات. ومع ذلك، فقد أُثبت أن أحادية الأصل للهكروبيات غير صحيحة، إذ نشأت المجموعتان بشكل مستقل. وتُظهر التحليلات الجزيئية موقع كريبتستا بجوار البلاستيدات العتيقة، مكونةً الفرع الحيوي كام (والتي تشير إلى هذه المجموعات بالأضافة الى ميكروهيليلا) المفترض، بينما تقع الطلائعيات اللمسية بجوار التيلونيميا والفرع الحيوي سار (قد تكون التيلونيميا إما المجموعة الشقيقة لسار، لتُشكل الفرع الحيوي تي سار المفترض، أو للطلائعيات اللمسية، لتُشكل فرع حيوي شقيق مشترك لسار). ضمن الفرع الحيوي كام، أقرب الأقارب للكريبتستا هو نوع ميكروهيللا ماريس، ويُشكلان معًا الفرع الحيوي بانكريبتيستا.
وعلى صعيد آخر، تضم شعبة الطلائعيات اللمسية فرعين حيويين متميزين ذات قشور معدنية: لمسيات النبت والسنتروهيليدات. لمسيات النبت هي مجموعة تضم أكثر من 500 نوع حي من الطحالب السوطية أو الكروية التي حصلت على بلاستيدات خضراء من تعايش داخلي ثانوي. وهي بحرية في الغالب، وتُشكل جزءًا مهمًا من العوالق المحيطية، وتضم البذيرات الجيرية، التي تُسهم قشورها المتكلسة ("الكوكوليثات") في تكوين الصخور الرسوبية والدورات البيوجيوكيميائية للكربون والكالسيوم. بعض الأنواع قادرة على تكوين ازدهارات سامة. السنتروهيليدات هي مجموعة صغيرة (نحو 95 نوعًا) ولكنها واسعة الانتشار من الأميبا غيرية التغذية من نوع دوارات الشمس، وعادةً ما تُغطى بمخاط يحمل قشورًا، وتُشكل مكونًا مهمًا في الشبكات الغذائية القاعية للموائل المائية، سواء البحرية أو العذبة.
الأهمية الاقتصادية
وعلى صعيد آخر، صناعة مادة الأغار من خلال الطحالب الحمراء وبالأخص طحلب الجلدوم.
علاوةً على ذلك، تستعمل الطحالب في صناعة الكاروتونيدات كمادة مضادة للأكسدة والفيتامينات والأحماض الامينية.
وفي هذا السياق، بعد موت الدياتومات تترسب في القاع وتعرف بالتربة الدياتومية وتستعمل في كثير من الصناعات مثل الديناميت والمفرقعات وفي صناعة معجون الأسنان ومرشحات في تكرير البترول والسكر.
وفي هذا السياق، تتسبب الطلائعيات بكثير من الأمراض للحيوانات والنباتات والإنسان. ومن الأمثلة عليها التي تثير قلقاً كبيراً في صحة الإنسان: الجيارديا والمثقبية والمقوسة الغوندية.
- انظر كذلك
- عوالق هوائية
- تطور التكاثر الجنسي
- أسناخ صبغية
- الأوليات
- الكربون العضوي الذائب
وفي هذا السياق، تستعمل الطحالب كمورد طبيعي لاستخلاص اليود وأعلاف للمواشي ومخصب حيوي للأراضي الزراعية.
بعد موت الطحالب تكون مصدرًا مهمًا للبروتين وتغذية الأسماك.
التنفس
علاوةً على ذلك، كان السلف المشترك الأخير لحقيقيات النواة هوائيًا، يحمل الميتوكوندريا لعملية الأيض التأكسدي. تطورت الكثير من سلالات الطلائعيات حرة المعيشة والطفيلية بشكل مستقل وتكيفت للعيش في بيئات نقص الأكسجين أو قليلة الأكسجين، وذلك عن طريق تعديل الميتوكوندريا المبكرة إلى هيدروجينوسومات، وهي عضيات تولد ثلاثي فوسفات الأدينوسين (ATP) لاهوائيًا من خلال تخمر البيروفيك. وبطريقة موازية، في الطلائعيات المثقبية السوطية قليلة الأكسجين، تطورت الجليكوسوم التخميرية من البيروكسيسوم.
حقبة الطلائع الحديثة
وعلى صعيد آخر، بعد تجلد غاسكيرز في اواخر العصر الإدياكاري (~579 مليون سنة مضت)، تخضع أحافير الطلائعيات غيرية التغذية للتنوع. تُفسر بعض الأحافير المشابهة للمستحاثات المجهرية على شكل الأوعية على أنها أقدم أحافير المثقبات التي يعود تاريخها إلى 548 مليون سنة مضت (مثل بروتولاغينا)، ولكن انتسابها إلى المثقبات مشكوك فيه. تشمل المستحاثات المجهرية الأخرى التي يُحتمل أن تكون مثقبات بعض الأصداف الأنبوبية سيئة الحفظ من صخور يعود تاريخها إلى 716-635 مليون سنة مضت.
إضافةً إلى ذلك، مع ارتفاع مستويات الأكسجين خلال عصر التوني، تفوقت حقيقيات النواة من "مجموعة التاج" على حقيقيات النواة "المجموعة الأساسية"، متوسعةً إلى البيئات البحرية الغنية بالأكسجين التي دعمت الأيض الهوائي الذي تُمكنه الميتوكوندريا. ربما تكون حقيقيات النواة المجموعة الأساسية قد انقرضت بسبب المنافسة والتغيرات المناخية القاسية للعصور الجليدية الباردة والاحترار العالمي اللاحق، مما عزز هيمنة حقيقيات النواة مجموعة التاج. بدأت حقيقيات النواة مجموعة التاج بالظهور بكثرة في هذا العصر، مدفوعةً بانتشار الطحالب الحمراء. تشمل أقدم الأحافير المُسندة بشكل مؤكد إلى مجموعات الطلائعيات الحالية ثلاث طحالب متعددة الخلايا: الطحلب الأحمر بانغيومورفا (1047 مليون سنة مضت)، والخيضورات بروتيروكْلادوس (1000 مليون سنة مضت)، والطحلب الأخضر المصفر باليوفوشيريا (1000 مليون سنة مضت). يشتمل السجل كذلك على أقدم خلفيات السوط: أوراسفايرة جيرالداي (1010-890 مليون سنة مضت)، التي تُفسر على أنها أقدم فطر، وبايسيليوم براسييري (1000 مليون سنة مضت)، وهي أقدم كائن بعديات صحيحة، تُظهر سمات مرتبطة بالتعدد الخلوي المعقد.
كذلك، تظهر أحافير وفيرة من الطلائعيات غيرية التغذية في وقت لاحق بشكل ملحوظ، بالتوازي مع ظهور الفطريات. وُصفت المستحاثات المجهرية على شكل الأوعية، وهي صخور واسعة الانتشار يعود تاريخها إلى 780-720 مليون سنة مضت (من العصر التوني إلى العصر البارد)، بأنها مجموعة متنوعة من الكائنات الحية على مر العقود (مثل الطحالب، والكيتينوزوان، والتينتينيدات)، ولكن الإجماع العلمي الحالي يربط أغلب المستحاثات المجهرية على شكل الأوعية بالأميبا القشرية البحرية. على هذا النحو، تتضمن المستحاثات المجهرية على شكل الأوعية أقدم الأحافير المعروفة لكل من الأميبا القشرية الخيطية (الحيوانات المذيلة) والفصية (الأميبيات).
التكاثر الجنسي
علاوةً على ذلك، بينما يبقى التكاثر اللاجنسي الاستراتيجية الأكثر شيوعاً بين الطلائعيات، يُعد التكاثر الجنسي كذلك سمة أساسية في حقيقيات النواة. يتضمن التكاثر الجنسي الانقسام الاختزالي (وهو انقسام نووي متخصص يُمكن من إعادة التركيب الجيني) والتخصيب (وهو اندماج نوى من أبوين). يُعتقد أن هذه العمليات كانت موجودة في السلف المشترك الأخير لحقيقيات النواة، والذي كان على الأرجح يمتلك القدرة على التكاثر الجنسي على أساس اختياري (غير إلزامي). وحتى الطلائعيات التي لم تعد تتكاثر جنسياً لا تزال تحتفظ بمجموعة أساسية من الجينات المرتبطة بالانقسام الاختزالي، مما يعكس سلالتها من أسلاف متكاثرة جنسياً. مثلًا، على الرغم من أن أميبيات الحركة تُعد تقليدياً كائنات لاجنسية، فمن المرجح أن أغلب الأميبا اللاجنسية نشأت حديثاً وبشكل مستقل عن أسلاف أميبية تتكاثر جنسياً. حتى في أوائل القرن العشرين، فسر بعض الباحثين الظواهر المتعلقة بالكروميديا (حبيبات الكروماتين الحرة في السيتوبلازم) في الأميبا على أنها تكاثر جنسي.
الطلائعيات الجذرية
علاوةً على ذلك، تضم الريتاريا الطلائعيات الجذرية الأكثر شيوعًا: المثقبات والشعوعيات، وهما مجموعتان من الأميبا البحرية الحرة الكبيرة ذات الأقدام الكاذبة المدعومة بالأنيبيبات الدقيقة، والعديد منها مرئي بالعين المجردة. الشعوعيات مجموعة متنوعة (>1,000 نوع حي) من الأميبا، وغالبًا ما تحمل هياكل سيليكونية دقيقة ومعقدة. المثقبات كذلك متنوعة (>6,700 نوع حي)، وأغلبها مغطى بأصداف متعددة الحجرات مكونة من كربونات الكالسيوم أو جزيئات معدنية متراصة. تتميز كلتا المجموعتين بسجل أحفوري غني، مع عشرات الآلاف من الأنواع الأحفورية الموصوفة.
في هذا الإطار، الطلائعيات الجذرية سلالة من الكائنات الحية المتنوعة مورفولوجيًا، وتتكون بالكامل على وجه التقريب من الأميبا وحيدة الخلية غيرية التغذية، والسوطيات، والأميبا السوطية. تتميز عادةً بأقدام كاذبة شبكية أو خيطية تستعمل للتغذية والحركة. كانت هذه المجموعة العظمى هي الأخيرة التي وُصفت، لأنها تفتقر إلى أي خاصية مميزة واكتُشفت حصريًا من خلال دراسات الوراثة الجزيئية. وتضم ثلاث فروع حيوية رئيسية، وهي شعبة السيركوزوا (الحيوانات المذيلة)، والإندوميكسا، والريتاريا.
ومن جهة أخرى، الإندوميكسا تحتوي على فرعين حيويان رئيسيان من الطلائعيات الطفيلية: الأبواغ الكيسية (أسيتوسبوريا) هي طفيليات من نوع البوغيات لللافقاريات البحرية، في حين أن الطحالب المخاطية مسببات أمراض إلزامية للنباتات والطحالب، وتُقسم إلى البلازموديوفورات الأرضية وفاغوميكسيدات البحرية. وتُضم كذلك في الإندوميكسا رتبة الأميبا المفترسة فامبيرليدا (48 نوعًا) وجنسان من الأميبا البحرية، وهما جروميا ذات الغلاف وفيلوريتا العارية.
وفي هذا الصدد، إلى جانب هذه الشعب الثلاث، تشمل الطلائعيات الجذرية الكثير من السلالات الغامضة وغير المدروسة ذات الموضع التطوري غير المؤكد. إحدى هذه الفروع الحيوية هي الجمنوسفيريات، والتي تضم طلائعيات من نوع دوارات الشمس. تتكون عدة فروع حيوية تحمل اسم "فروع حيوية جديدة" (NC) بالكامل من الحمض النووي البيئي لطلائعيات غير مزروعة، على الرغم من أن القليل منها قد جرى حل لغزه ببطء على مر العقود مع وصف أصناف جديدة (مثلًا، تريموليدا وأكوافولونيدا، التي كانت سابقًا NC11 وNC10 على التوالي، ولها موقع متعمق التفرع في الطلائعيات الجذرية).
من جهة ثانية، السيركوزوا (المعروفة كذلك باسم الحيوانات المذيلة) هي مجموعة من الطلائعيات الحرة ذات الأشكال المورفولوجية المختلفة جدًا. الأميبا السوطية من السيركوزوا مفترسات مهمة للكائنات الدقيقة الأخرى في البيئات الأرضية والميكروبات النباتية (مثل المذيلات والباراسيركوموناد والجليسوموناد، المعروفة مجتمعة بفئة ساركوموناديا)، والقليل منها يمكن أن يولد فطريات غروية (مثلًا، هيلكسا). الكثير من السيركوزوا هي أميبا ذات غلاف أو تحمل قشورًا، وهي الكراكن المراوغة وفئتا إمبريكاتيا (مثل اليوجليفيدات) والثيكوفيلوسيا. تشتمل الثيكوفيلوسيا كذلك على فايوداريا (~400-500 نوع)، وهي مجموعة من الأميبا البحرية الحاملة للهيكل العظمي والتي كانت مصنفة سابقًا كشعوعيات، وتشمل كلتا الفئتين بعض السوطيات العارية غير الحرشفية (مثل سبونجوموناد في الإمبريكاتيا وثوماتوموناد في الثيكوفيلوسيا). من بين السيركوزوا متفرعة القاعدة توجد السوطيات ذات الغلاف الخالية من الأقدام الكاذبة من ميتروموناديا، والخيطائيات الكبيرة الشبيهة بدوارات الشمس، والكلورراكنيوفيت ذاتية التغذية التي نشأت بلاستيداتها الخضراء من تعايش داخلي ثانوي مع طحلب أخضر.
الدورات الجنسية الأساسية
ومن ناحية أخرى، في الدورة أحادية الصيغة الصبغية: يكون الفرد أحادي المجموعة الصبغية ويتميز إلى أمشاج أحادية المجموعة الصبغية عبر الانقسام المتساوي. تندمج الأمشاج في لاقحة تخضع فوراً للانقسام الاختزالي لتوليد أفراد أحادية المجموعة الصبغية جديدة. هذه هي الحال بالنسبة لبعض الطحالب الخضراء (تحديداً طحالب الفولفوكس)، والكثير من السوطيات الدوارة، وبعض فوق المونيات، ومعقدات القمة.
وفي هذا الصدد، في الدورة أحادية-ثنائية المجموعة الصبغية: توجد جيلان متعاقبان من الأفراد. أحدهما هو "المتقسمة" ثنائي المجموعة الصبغية، الذي يخضع للانقسام الاختزالي لتوليد خلايا أحادية المجموعة الصبغية (أبواغ) تتطور إلى الجيل الآخر، وهو "العرسية" أحادي المجموعة الصبغية. ثم تولد العرسية الأمشاج بالانقسام المتساوي، والتي تندمج بدورها لتكوين بويضة مخصبة التي تتطور إلى المتقسمة. هذه هي الحال بالنسبة للعديد من المثقبات والكثير من الطحالب، وكذلك النباتات الأرضية. توجد ثلاثة أنماط لهذه الدورة اعتماداً على النمو النسبي وعمر أحد الجيلين مقارنة بالآخر: جيل أحادي المجموعة الصبغية سائد، أو جيل ثنائي المجموعة الصبغية سائد، أو أجيال سائدة بالتساوي. تُظهر الطحالب البنية النطاق الكامل لهذه الأنماط.
إضافةً إلى ذلك، تميل الطلائعيات حرة المعيشة إلى التكاثر جنسياً في ظل الظروف المجهدة، مثل الجوع أو الصدمة الحرارية. يبدو أن الإجهاد التأكسدي، الذي يؤدي إلى تلف الحمض النووي، عامل مهم في تحفيز الجنس في الطلائعيات.
وفي السياق ذاته، تتضمن كل دورة جنسية أحداث التخصيب والانقسام الاختزالي، اللذين يزيدان أو ينقصان عدد المجموعات الصبغية (أي عدد مجموعات الكروموسومات، الممثلة بالحرف n) على التوالي. يشير التخصيب إلى اندماج خليتين تكاثريتين أحاديتي المجموعة الصبغية (1n)، تُعرفان باسم الأمشاج، مما يولد خلية ثنائية المجموعة الصبغية (2n) تسمى بويضة مخصبة. ثم تخضع الخلية ثنائية المجموعة الصبغية للانقسام الاختزالي لتوليد خلايا أحادية المجموعة الصبغية. بناءً على الخلايا التي يتكون منها الفرد أو الطور الخضري (أي الطور الذي ينمو بالانقسام المتساوي)، توجد ثلاث دورات جنسية مميزة تُلاحظ في الطلائعيات حرة المعيشة:
وفي هذا السياق، في الدورة ثنائية المجموعة الصبغية: يكون الفرد ثنائي المجموعة الصبغية ويخضع للانقسام الاختزالي لتوليد أمشاج أحادية المجموعة الصبغية، والتي تندمج بدورها مع أمشاج أخرى لتكوين بويضة مخصبة تتطور إلى فرد جديد. هذه هي الحال بالنسبة لبعض فوق المونيات، والشمسيات، والكثير من الطحالب الخضراء، والدياتومات، والهدبيات، وكذلك الحيوانات. بدلاً من توليد الأمشاج، تقوم الهدبيات بتقسيم نواتها الدقيقة ثنائية المجموعة الصبغية إلى نواتين أحاديتي المجموعة الصبغية، وتبادل إحداهما بالاقتران مع هدبي آخر، ودمج النواتين في نواة ثنائية المجموعة الصبغية جديدة.
المتعايشات الداخلية
وعلى صعيد آخر، تمتلك الطلائعيات ميلًا واضحًا لتضمين المتعايشات الداخلية في خلاياها، وقد أدت هذه الظاهرة إلى فرص فسيولوجية جديدة. بعض الارتباطات أكثر ديمومة، مثل براميسيوم بورساريا والمتعايش الداخلي الخاص بها كلوريلا؛ وبعضها الآخر أكثر عقلة. تحتوي الكثير من الطلائعيات على بلاستيدات خضراء ملتقطة، ومعقدات بلاستيدية خضراء-ميتوكوندرية، وحتى بقع عينية من الطحالب. أما الزينوسومات فهي متعايشات داخلية بكتيرية توجد في الهدبيات، وتلعب أحيانًا دورًا مولدًا للميثان داخل الهدبيات اللاهوائية.
الأنواع الشائعة
وفي هذا السياق، السوطيات: جُهزت هذه الطلائعيات بزوائد سوطية تدعى أهداب أو أقدام سوطية أو سياط حقيقية النواة، واحد أو أكثر، تمكنها من السباحة أو الانزلاق بحرية عبر البيئة. توجد السوطيات في جميع السلالات، مما يعكس أن السلف المشترك لجميع حقيقيات النوى الحية كان سوطيًا. وعادةً ما تُظهر هدبين (مثلًا، في بروفورا، تيلونيميا، سوطيات قشية، طلائعيات سناخية، خاقيات وأغلب الطلائعيات الكهفية)، ولكن يوجد عدد من مجموعات السوطيات ذات عدد كبير من الأهداب (مثل الهيميمستيغوفورا وغيرها من الطلائعيات الكهفية). بعض المجموعات، مثل الهدبيات المعروفة والأوبالينيدات الطفيلية، لها سطح خلية مغطى بصفوف من الأهداب التي تتحرك بشكل إيقاعي. القليل من مجموعات الأميبا احتفظت بأسواطها، مما يجعلها أميبا سوطية.
علاوةً على ذلك، تُظهر الطلائعيات نطاقًا واسعًا من الأنواع المورفولوجية المميزة التي استُخدمت لتصنيفها لأغراض عملية، على الرغم من أن أغلب هذه الفئات لا تمثل سلالات متماسكة تطوريًا أو سلالات حيوية، بل تطورت بشكل مستقل عدة مرات. الأنواع الأكثر تميزًا هي:
كذلك، الطلائعيات الشبيهة بالفطريات: تطورت عدة سلالات من الطلائعيات لتشبه الفطريات من خلال تراكيب شبيهة بالخيوط الفطرية وتغذية ترممية. تطورت هذه الأنواع عدة مرات، وغالبًا ما تكون بعيدة جدًا عن الفطريات الحقيقية (مثلًا، الطلائعيات البيضية، والفطريات المتاهية، والفطريات الهيفوكايتريدية في السوطيات القشية؛ مخاطيات البطن في الأميبيات؛ الطحالب المخاطية في الطلائعيات الجذرية؛ البيركينسوزوان في الطلائعيات السناخية).
ومن ناحية أخرى، أميبيات الحركة: تتميز الأميبا بأشكالها غير المنتظمة والمرنة، وتتحرك هذه الطلائعيات عن طريق مد أجزاء من السيتوبلازم الخاص بها، المعروفة باسم الأقدام الكاذبة، للزحف على الأسطح. الكثير من مجموعات الأميبا عارية، لكن الأميبا ذات الغلاف والمثقبات تبني غلافًا حول خليتها مكونًا من مادة مهضومة أو حطام محيط. بعضها، المعروف باسم الشعوعيات والشمسيات، لها أشكال كروية خاصة مع أقدام كاذبة مدعومة بالأنيبيبات الدقيقة تشع من الخلية. بعض الأميبا قادرة على إنتاج مراحل متعددة الخلايا ذات سيقان تحمل أبواغًا، غالبًا عن طريق التجمع معًا؛ تُعرف هذه باسم العفونات الغروية. السلالات الرئيسية التي تحتوي على الأميبا هي الأميبيات (بما في ذلك العفونات الغروية المختلفة والأميبا ذات الغلاف) والطلائعيات الجذرية (بما في ذلك مجموعات مشهورة مثل المثقبات والشعوعيات، فضلًا عن بعض الأميبا ذات الغلاف). يمكن لبعض الأميبا الفردية أن تنمو إلى أحجام عملاقة مرئية بالعين المجردة.
وعلى صعيد آخر، الطحالب: هي طلائعيات ذاتية التغذية، ويمكن العثور عليها في أغلب السلالات الرئيسية، وهي مختلطة تمامًا مع الطلائعيات غيرية التغذية التي تُسمى تقليديًا الأوليات. وتُظهر الطحالب أوسع نطاق من الأشكال المورفولوجية، من الخلايا السوطية أو الكروية الوحيدة (مثل مخفيات النبت، لمسيات النبت، سوطيات دوارة، الكروميريدات، الكثير من الطحالب الخضراء، الطحالب الداكنة، اليوجلينوفايتس) إلى الخلايا الأميبية (الكلورأشنيات) إلى الأشكال المستعمرة والمتعددة الخلايا المرئية بالعين المجردة (مثل الطحالب الحمراء، وبعض الطحالب الخضراء، وبعض الطحالب الداكنة مثل عشب البحر).
كذلك، البوغيات: شملت هذه الفئة تقليديًا الطلائعيات الطفيلية التي تتكاثر عن طريق الأبواغ (مثل معقدات القمة، البوغيات، المواخط، والأبواغ الكيسية). يُقصر استخدامها الحالي على معقدات القمة، مثل المتصورة المنجلية، المسببة للملاريا.
عديمات الشكل
من جهة ثانية، تعد شعبة الأميبا (2,400 نوعًا) مجموعة كبيرة من الأوليات البالعة المتنوعة شكليًا، وأغلبها من الأميبا. ويشكل جزء كبير من الأميبازوا أميبات فصية، مما يعني أنها تنتج أقدامًا كاذبة مستديرة غير حادة الأطراف. وتتضمن الأميبات "النموذجية"، المعروفة باسم الأميبات الفصية العارية أو "الأميبا الجسمية" (مثل الأميبا نفسها)، ومن بينها جنس من العفن الغروي مكونة السوروكارب (الجسم الثمري المميز) يسمى كوبووميكسا. بعض الأميبا الجسمية هي مسببات أمراض مهمة للحيوانات (مثل شوكميبة). ومن الأميبات الفصية الأخرى ذات الصلة، الأرسيلينيدا، وهي رتبة متنوعة من الأميبات ذات القشرة وواحدة من أبرز مجموعات الأوليات بشكل عام. أما بقية الأميبازوا غير الفصية فتشمل العفن الغروي الحقيقي (يوميسيتوزوا) أو "الفطريات الغروية الصحيحة"، وتضم الديكتيوستيليدات التي تتغذى على البكتيريا وتنتج السوروكارب، ومخاطيات البطن والبروتوسبورانجيدات التي تتغذى على كل شيء وتنتج الأجسام الثمرية. وبسبب المظهر الشبيه بالفطريات لأجسامها الثمرية، غالبًا ما يدرس أخصائيو الفطريات العفن الغروي يوميسيتوزوا. ترتبط سلالتان ارتباطًا وثيقًا بالعفن الغروي يوميسيتوزوا: الفاريوسيا، وهي مجموعة غير متجانسة من الكائنات الأميبية، أو الشبكية، أو السوطية (بما في ذلك بعض الكائنات التي تنتج السوروكارب)؛ والأركاميبا اللاهوائية، والتي يعيش بعضها كمتكافلات معوية لبعض الحيوانات (مثل المتحولة).
كذلك، تشتمل البعديات الصحيحة على سلالات متنوعة ذات دورات حياة معقدة تتضمن أنواعًا مختلفة من الخلايا وترتبط بأصل التعددية الخلوية الحيوانية. أقرب أقارب الحيوانات هي السوطيات الطوقية (قرابة 360 نوعًا)، وهي سوطيات حرة المعيشة تتغذى من خلال طوق من الزغيبات يحيط بسوط أكبر وغالبًا ما تشكل مستعمرات. الإيكثيوسبوريا (أكثر من 40 نوعًا)، والمعروفة كذلك باسم الميزوميسيتوزوانز، هي مجموعة من البعديات الصحيحة الممرضة الشبيهة بالفطريات والمتخصصة في إصابة الأسماك والحيوانات الأخرى. الخيطيات النجمية (ستة أنواع) هي مجموعة غير متجانسة من الأميبات أو السوطيات حرة المعيشة، أو المتعايشة داخليًا، أو الطفيلية. أخيرًا، البليوريفورميا هما نوعان من البعديات الصحيحة حرة المعيشة ذات دورات حياة تتضمن تجمعات متعددة الخلايا. نوع السوطيات المراوغ تيونيكارابتور يونيونتم لديه موقع تطوري غير مؤكد بين مجموعات البعديات الصحيحة هذه.
ومن جهة أخرى، تضم خلفيات السوط ممالك الحيوان والفطريات، إلى جانب أقربائها الأولية. الفرع المؤدي إلى الفطريات يُعرف باسم نوكليتمايسيا أو الفطريات الكلية، في حين يُسمى الفرع المؤدي إلى الحيوانات بالبعديات الصحيحة. تضم النوكليتمايسيا أقرب أقارب الفطريات، وهي النوكليريات (العرفيات القرصية)، وهي مجموعة صغيرة (قرابة 50 نوعًا) من الأميبات البالعة حرة المعيشة، عارية أو حاملة للحراشف، ذات أقدام كاذبة خيطية، يمكن لبعضها أن تتجمع في عفن غروي. ضمن التعريف الأوسع للفطريات، يدرس بعض المؤلفين ثلاث مجموعات على أنها طلائعيات: أفيلايدا (15 نوعًا)، وروزيليدا (27 نوعًا)، والبويغيات (قرابة 1,300 نوعًا)، وتعرف مجتمعة باسم أوبيستوسبوريديا، على عكس الفطريات "الحقيقية" أو ذات التغذية الأسموزية. الأفليدات والروزيليدات كلاهما سوطيات بلعمية أحادية الخلية تتغذى بطريقة داخلية، حيث تخترق خلايا عوائلها. البويغيات هي طفيليات إجبارية داخل الخلايا تتغذى عن طريق التغذية الأسموزية، تمامًا مثل الفطريات الحقيقية. الأفليدات والفطريات الحقيقية هي أقرب الأقارب، وتتغذى عمومًا على الكائنات ذات الجدران الخلوية السليلوزية (مثل الكثير من الطحالب والنباتات). على العكس من ذلك، تشكل الروزيليدات والبويغيات فرعًا حيويًا منفصلاً، وتتغذى عمومًا على الكائنات ذات الجدران الكيتينية (الفطريات والحيوانات).
وفي هذا الصدد، عديمات الشكل (أمورفيا) هي مجموعة من الكائنات الحية غيرية التغذية حصريًا. تشتمل على الفطريات والحيوانات، إلى جانب أغلب العفن الغروي، والكثير من الأميبات، وبعض السوطيات. ويظهر الكثير من أعضائها الأولية دورات حياة معقدة بمستويات مختلفة من التعددية الخلوية. تعد عديمات الشكل مكافئة على وجه التقريب لمفهوم "أحاديات السوط"، والتي تعني "سوط واحد"، على الرغم من أنها تضم في الوقت الحالي عدة كائنات حية ذات أسواط أكثر. وتعرف بأنها أصغر فرع حيوي يحتوي على مجموعتي الأميبا (التي تضم غالبًا العفن الغروي والأميبات) وخلفيات السوط (التي تضم الفطريات والحيوانات وأقاربها الأقرب). الأقارب الأقرب لخلفيات السوط هما سلالتان صغيرتان من الطلائعيات وحيدة الخلية ذات السوطين: السوطيات مونات عديمة الأقدام (28 نوعًا) والقصارانية اللاهوائية الأميبية السوطية (أربعة أنواع). تشكل هاتان المجموعتان، جنبًا إلى جنب مع خلفيات السوط، الفرع الحيوي أوبازوا (خاقيات)، وهو الفرع الحيوي الشقيق للأميبا.
حقبة الحياة الحديثة
ومن جهة أخرى، تسبب حدث انقراض الطباشيري-الباليوجيني (~66 مليون سنة مضت) في انقراض الكثير من السوطيات الدوارة البحرية، والمثقبات، والبذيرات الجيرية، والسيليكوفلاجيلات؛ واستُبدلت أنواع حقبة الحياة الوسطى من هذه المجموعات بأنواع تُهيمن على الموائل البحرية اليوم. مباشرة بعد هذا الحدث، بدأت الإبريديات المفترضة بالظهور في السجل الأحفوري (مثل أممودوكيوم)، ولكن أقدم أحافير الإبريديات الموثوقة تعود إلى الإيوسين الأوسط العلوي (42-33.7 مليون سنة مضت). في نحو هذا الوقت، تظهر أقدم أحافير السينوريات (~49-40 مليون سنة مضت). بعد الحد الأقصى المناخي للإيوسين الأوسط (~40 مليون سنة مضت)، أصبحت الدياتومات العوامل المهيمنة على ترسيب السيليكون البحري بدلاً من الشعوعيات، ويُظهر السجل الأحفوري أولى رافيد (بلورات إبرية الشكل) الدياتومات والكولوداريانز.
التغذية
علاوةً على ذلك، تظهر الطلائعيات مجموعة واسعة من تفضيلات الغذاء وآليات التغذية. وبحسب مصدر مغذياتها، يمكن تقسيمها إلى ذاتية التغذية (المنتجات، تقليدياً الطحالب) وغيرية التغذية (المستهلكات، تقليدياً الأوليات). تقوم الطلائعيات ذاتية التغذية بتصنيع مركباتها العضوية الخاصة من الركائز غير العضوية من خلال عملية التمثيل الضوئي، باستخدام الضوء كمصدر للطاقة؛ وبناءً على ذلك، تعرف كذلك باسم الكائنات الضوئية التغذية.
ومن جهة أخرى، تحصل الطلائعيات غيرية التغذية على الجزيئات العضوية التي تصنعها كائنات أخرى، ويمكن تقسيمها كذلك بحسب حجم مغذياتها. وتسمى تلك التي تتغذى على الجزيئات الذائبة أو الجزيئات الكبيرة التي يقل حجمها عن 0.5 ميكرومتر بالكائنات التناضحية التغذية، وهي تمتصها عن طريق الانتشار، والحفر الهدبية، وبروتينات النقل في غشاء الخلية، ونوع من الإدخال الخلوي (أي انغلاف غشاء الخلية في فجوات عصارية، تسمى الجسيمات الداخلية) المعروف باسم الشرب الخلوي أو الإدخال الخلوي في الطور السائل. أما تلك التي تتغذى على جزيئات عضوية يزيد حجمها عن 0.5 ميكرومتر أو خلايا كاملة فتسمى بالكائنات البالعة، وهي تبتلعها من خلال نوع من الإدخال الخلوي يعرف بالبلعمة. ويعتبر الإدخال الخلوي أحد أهم التكيفات في نشأة حقيقيات النواة لأنه يزيد من إمدادات الغذاء المحتملة، كما سمحت البلعمة بالتعايش الداخلي وتطور الميتوكوندريا والبلاستيدات الخضراء. وفي كل من الكائنات التناضحية التغذية والبلعمة، يقتصر الإدخال الخلوي غالباً على منطقة محددة من غشاء الخلية، تعرف بالفم الخلوي، والذي قد يتبعه بلعوم خلوي، وهو مسار متخصص تدعمه الأنيبيبات الدقيقة.
التصنيف المبكر
وفي هذا الصدد، منذ بداية القرن الثامن عشر، استُخدم مصطلح "حيوانات منقوعة" الشائع (ثم لاحقاً "نقاعيات") للطلائعيات والبكتيريا واللافقاريات الصغيرة. في منتصف القرن الثامن عشر، وبينما تجاهل عالم الأحياء السويدي كارولوس لينيوس الطلائعيات إلى حد كبير، كان معاصره الدنماركي أوتو فريدريش مولر أول من أدخل الطلائعيات إلى نظام التسمية الثنائية.
من جهة ثانية، في سنة 1860، اقترح عالم الطبيعة البريطاني جون هوغ اسم "الطلائعيات" كمملكة رابعة (الممالك الأخرى هي النبات والحيوان والمعدن) وصفها بأنها تحتوي على "جميع الكائنات الدنيا، أو الكائنات العضوية الأولية"، والتي شملت النباتات الأولية، والأوليات، والإسفنجيات.
كذلك، في عام 1866، تناول "أبو علم الطلائعيات"، العالم الألماني إرنست هيكل، مشكلة تصنيف جميع هذه الكائنات كخليط من خصائص حيوانية ونباتية، واقترح بروتيستنرايش (مملكة الطلائعيات) كالمملكة الثالثة للحياة، وتشمل الأشكال البدائية التي كانت "ليست حيوانات ولا نباتات". فقد جمع كلاً من البكتيريا وحقيقيات النواة، والكائنات وحيدة الخلية ومتعددة الخلايا، تحت مسمى الطلائعيات. احتفظ بالنقاعيات في مملكة الحيوان، حتى أثبت عالم الحيوان الألماني أوتو بوتشلي أنها وحيدة الخلية. في البداية، أدرج الإسفنجيات والفطريات، ولكن في منشوراته اللاحقة قصر الطلائعيات صراحةً على الكائنات الحية وحيدة الخلية بشكل أساسي أو المستعمرات غير القادرة على تكوين أنسجة. لقد فصل بوضوح الطلائعيات عن الحيوانات الحقيقية على أساس أن السمة المميزة للطلائعيات هي غياب التكاثر الجنسي، بينما السمة المميزة للحيوانات هي مرحلة الكبسولة في نمو الحيوانات. كما أعاد مصطلحي الأوليات والنباتات الأولية كمملكتين فرعيتين لمملكة الطلائعيات.
من جهة ثانية، في عام 1820، صاغ عالم الطبيعة الألماني جورج أوغست غولدفس مصطلح "الأوليات" (بمعنى "الحيوانات المبكرة") كطائفة ضمن مملكة الحيوان تتكون من أربع مجموعات: النقاعيات (الهدبيات)، وليثوزوا (المرجان)، والبيتوزا، وميدوسيناي (قنديل بحر). لاحقاً، في سنة 1845، استعمل كارل سيبولد مصطلح "الأوليات" كشعبة من الحيوانات وحيدة الخلية حصراً وتتكون من طائفتين: النقاعيات (الهدبيات) وريزوبودا (أميبيات الحركة، المثقبات). لم يعتبر العلماء الآخرون جميع الأوليات جزءاً من مملكة الحيوان، وبحلول منتصف القرن، قام أغلب علماء الأحياء بتجميع الكائنات الدقيقة في الأوليات، والنباتات الأولية (بروتوفيتا)، وفيتوزوا (نباتات شبيهة بالحيوانات)، والبكتيريا (التي كانت تُعتبر نباتات في الغالب). في سنة 1860، كان عالم الحفريات ريتشارد أوين أول من عرّف الأوليات كمملكة خاصة بها من حقيقيات النواة، على الرغم من أنه أدرج الإسفنجيات ضمن مجموعته كذلك.
التغذية التناضحية
وفي هذا الصدد، تحصل الطلائعيات التناضحية التغذية على المغذيات الذائبة عبر قنوات الغشاء والحاملات، وكذلك من خلال أنواع مختلفة من الشرب الخلوي. ويتضمن الشرب الخلوي الكبير انطواء الغشاء ليشكّل طيات، والتي تكوّن فجوات كبيرة (من 0.2 إلى 1.0 ميكرومتر). أما الشرب الخلوي الدقيق فيتضمن حويصلات أصغر تتكون عادة بواسطة الكلاثرين. وفي كلا السيناريوهين، تندمج الحويصلات في فجوة هضمية أو جسيم داخلي حيث يحدث الهضم. وتُجري بعض الكائنات التناضحية التغذية، التي تسمى الرمية أو محلّلة التغذية، هضماً خارجياً بإطلاق الإنزيمات في البيئة وتحليل المواد العضوية إلى جزيئات أبسط يمكن امتصاصها. ولهذا الهضم الخارجي ميزة واضحة: وهي أنه يسمح بتحكم أكبر في المواد التي يسمح لها بدخول الخلية، وبالتالي يقلل من امتصاص المواد الضارة أو العدوى.
ومن ناحية أخرى، ربما تكون جميع الكائنات حقيقية النواة قادرة على التغذية التناضحية، ولكن بعضها لا يملك بديلاً لاكتساب المغذيات. وتشمل الكائنات التناضحية التغذية والرمية الإجبارية بعض اليوغلينيات، وبعض الطحالب الخضراء، والطفيلي البشري المتبرعمة الكيسية، وبعض الفوق مونيات، والمثقبيات الطفيلية، والطلائعيات البيضية والفطريات الهيفوكيتيدية الشبيهة بالفطريات.
الطفيليات ومسببات الأمراض
وفي هذا الصدد، بعض الطلائعيات هي طفيليات مهمة للحيوانات (مثلًا؛ خمسة أنواع من جنس المتصورة الطفيلي تسبب الملاريا في البشر والعديد غيرها تسبب أمراضاً مماثلة في الفقاريات الأخرى)، والنباتات البرية (تُسبب الطلائعيات البيضية فيتوفثورا إنفيستانس مرض اللفحة المتأخرة في البطاطس) أو حتى في طلائعيات أخرى. يمكن لحوالي 100 نوع من الطلائعيات أن تُصيب البشر.
وفي السياق ذاته، تُشغل الطلائعيات الطفيلية قرابة 15-20% من إجمالي الحمض النووي البيئي في الأنظمة البحرية والتربة، ولكن نحو 5% فقط في أنظمة المياه العذبة، حيث من المرجح أن الفطريات الأصيصينية تملأ هذا المثوى البيئي. في الأنظمة المحيطية، تُعد شبيه الطفيلي (أي تلك التي تقتل مضيفيها، مثل السندينياليس) أكثر وفرة. في النظم البيئية للمياه العذبة، تُعد شبيه الطفيلي بشكل رئيسي من البركينسيا والسندينياليس (من شعبة الطلائعيات السناخية)، بينما تُعد الطفيليات الحقيقية (أي تلك التي لا تقتل مضيفيها) في المياه العذبة في الغالب من الطلائعيات البيضية، ومعقدات القمة، والإكتيوثبورية. في النظم البيئية للتربة، تُعد الطفيليات الحقيقية بشكل أساسي من معقدات القمة التي تستضيفها الحيوانات والطلائعيات البيضية والبلازموديوفوريدات التي تستضيفها النباتات. في تربة الغابات الإقليم المداري الجديد، تهيمن معقدات القمة على تنوع حقيقيات النواة وتلعب دوراً مهماً كطفيليات على اللافقاريات الصغيرة، بينما تُعد الطلائعيات البيضية نادرة جداً على النقيض.
نهاية الثنائية حيوان-نبات
من جانب آخر، في نظام الممالك الخمس الذي وضعته عالمة الأحياء التطورية الأمريكية لين مارغوليس، خُصص مصطلح "الطلائعي" للكائنات المجهرية، بينما شملت مملكة الطلائعيات الأكثر شمولاً بعض حقيقيات النوى الكبيرة متعددة الخلايا، مثل عشب البحر، والطحالب الحمراء، والعفن الغروي. يستعمل البعض مصطلح "الطلائعي" بالتبادل مع مصطلح مارغوليس، ليشمل كلاً من حقيقيات النوى وحيدة الخلية ومتعددة الخلايا، بما في ذلك تلك التي تُشكل أنسجة متخصصة ولكنها لا تتناسب مع أي من الممالك التقليدية الأخرى.
ومن جهة أخرى، في سنة 1938، أعاد عالم الأحياء الأمريكي هربرت كوبلاند إحياء تصنيف هوغ، بحجة أن مصطلح هيكل "الطلائعيات" شمل كائنات دقيقة لا نواة لها مثل البكتيريا، وهو ما لم يكن يتضمنه مصطلح "الطلائعيات" (الذي يعني "الكائنات الحية المؤسسة الأولى"). في تصنيفه ذي الممالك الأربع (الوحدانات، الطلائعيات، النباتات، الحيوانات)، جرى فصل الطلائعيات والبكتيريا أخيراً، إدراكاً للاختلاف بين الكائنات عديمة النواة (بدائية النوى) والكائنات ذات النواة (حقيقية النوى). وللفصل الصارم بين الطلائعيات والنباتات، اتبع تعريف هيكل للحيوانات الحقيقية على أساس الكبسولة، واقترح تعريف "النباتات الحقيقية" بأنها تلك التي تحتوي على الكلوروفيل أ وب، والكاروتين، واليصفور، وتُنتج النشا. كما كان أول من أدرك أن الثنائية وحيدة الخلية/متعددة الخلايا غير صالحة. ومع ذلك، أبقى الفطريات ضمن الطلائعيات، جنباً إلى جنب مع الطحالب الحمراء، والطحالب البنية، والأوليات. كان هذا التصنيف هو الأساس لتعريف ويتيكر اللاحق للفطريات، والحيوانات، والنباتات، والطلائعيات كالممالك الأربع للحياة.
كذلك، في المخطط الشائع ذي الممالك الخمس الذي نشره عالم البيئة النباتي الأمريكي روبرت ويتيكر في عام 1969، عُرفت الطلائعيات بأنها "كائنات حقيقية النوى وحيدة الخلية أو وحيدة الخلية مستعمرات لا تُشكل أنسجة". بينما كان التقسيم بين بدائيات النوى/حقيقيات النوى يصبح سائداً، أدرك ويتيكر، بعد عقد من نظام كوبلاند، التقسيم الأساسي للحياة بين الوحدانات بدائية النوى والممالك حقيقية النوى: الحيوانات (الابتلاع)، النباتات (التركيب الضوئي)، الفطريات (الامتصاص)، والطلائعيات المتبقية.
من جانب آخر، اعتبر بوتشلي المملكة متعددة العرق للغاية ورفض إدراج البكتيريا. قام بتجزئة المملكة إلى أوليات (كائنات حية وحيدة الخلية شبيهة بالحيوانات ونواتية فقط)، بينما كانت البكتيريا والنباتات الأولية تجميعاً منفصلاً. عزز هذا التقسيم القديم بين الأوليات/النباتات الأولية الذي وضعه العالم الألماني كارل ثيودور فون سيبولد، وقد أكد علماء الطبيعة الألمان هذا الرأي على المجتمع العلمي العالمي بحلول مطلع القرن. ومع ذلك، لفت عالم الأحياء البريطاني سي. كليفورد دوبل في عام 1911 الانتباه إلى حقيقة أن الطلائعيات تعمل بشكل مختلف تماماً مقارنة بالتنظيم الخلوي الحيواني والنباتي، وأعطى أهمية للطلائعيات كمجموعة ذات تنظيم مختلف أطلق عليه "لاخلوية"، مبتعداً عن مبدأ نظرية الخلية الألمانية. لقد صاغ مصطلح "علم الطلائعيات" وعززه كفرع دراسي مستقل عن علم الحيوان وعلم النبات.
التطورات في المجهر الإلكتروني وعلم الوراثة الجزيئي
وفي هذا السياق، تعريف علم الوراثة العرقي: الطلائعيات هي مجموعة شبه عرقية. الطلائعي هو أي كائن حقيقي النواة ليس حيواناً أو نباتاً أرضياً أو فطراً، وبالتالي يستبعد الكثير من المجموعات وحيدة الخلية مثل الفطريات البويغية، والأصيصانية، والخمائر، والحيوانات المواخط غير وحيدة الخلية التي أُدرجت في مملكة الطلائعيات في الماضي.
وعلى صعيد آخر، التعريف الوظيفي: الطلائعيات هي أساساً تلك الكائنات حقيقية النواة التي لا تكون متعددة الخلايا أبداً، والتي توجد إما كخلايا مستقلة، أو إذا وُجدت في مستعمرات، فلا تُظهر تمايزاً إلى أنسجة. بينما في الاستخدام الشائع، يستبعد هذا التعريف مجموعة متنوعة من أنواع التعدد الخلوي غير المستعمرة التي تُظهرها الطلائعيات، مثل التجمعية (مثلًا، السوطيات الطوقية) أو التعدد الخلوي المعقد (مثلًا، الطحالب البنية).
كذلك، ظل نموذج الممالك الخمس هو التصنيف المقبول حتى تطور علم الوراثة العرقي الجزيئي في أواخر القرن العشرين، عندما أصبح واضحاً أن الطلائعيات هي مجموعة شبه عرقية تطورت منها الحيوانات والفطريات والنباتات الأرضية، وأصبح نظام المجالات الثلاثة (البكتيريا، العتائق، حقيقيات النواة) سائداً. اليوم، لا تُعامل الطلائعيات كأصنوفة رسمية، ولكن المصطلح يُستعمل بشكل شائع لأغراض التسهيل بطريقتين:
من جهة ثانية، مع ذلك، هناك تصنيف واحد للطلائعيات يعتمد على الرتب التقليدية واستمر حتى القرن الحادي والعشرين. قام عالم الأوليات البريطاني توماس كافلييه سميث، منذ عام 1998، بتطوير نموذج ذي ست ممالك: البكتيريا، الحيوانات، النباتات، الفطريات، الأوليات، والكروميستا (الأسناخ الصبغية). في سياقه، تُفضل المجموعات شبه العرقية على الفروع الحيوية: فكلتا مملكتي الطلائعيات، الأوليات والكروميستا، تحتويان على شعب شبه عرقية مثل الأبوسوزوا (لاقدميات)، والإيولوكا، أو الأوبيستوثبوريديا. علاوةً على ذلك، تُعتبر الطحالب الحمراء والخضراء نباتات حقيقية، بينما تُعتبر المجموعات الفطرية مثل البويغيات، والروزيليدا، والأفيليدا من الأوليات ضمن شعبة الأوبيستوثبوريديا. استمر هذا المخطط حتى عام 2021، وهو عام آخر منشور له.
البلاستيدات العتيقة
علاوةً على ذلك، الطحالب الخضراء، على عكس الطحالب الزرقاء أحادية النمط الخلوي والطحالب الحمراء، هي مجموعة شبه عرقية تطورت منها النباتات الأرضية. وتُشكل معًا فرع كلوروبلاستيدا (النباتات الخضراء) أو فيريديبلانتي. أقدم عضو متفرع هو شعبة براسينوديرموفيتا (عشرة أنواع)، والتي تُعد أفرادها خلايا كروية بحرية حصرية أو ثالوسات مجهرية صغيرة. تُوزع الطحالب الخضراء المتبقية في فرعين حيويين رئيسيين. أحد الفروع هو شعبة خيضورات (أكثر من 7900 نوع)، والتي تشمل الكثير من سلالات الطحالب السوطية وحيدة الخلية المتقشرة المعروفة مجتمعة باسم براسينوفايتس جنبًا إلى جنب مع براسينوديرموفيتا، ولكنها تشمل كذلك مجموعة متنوعة من الأشكال المورفولوجية مثل الكرويات، والنخيليات، والكولونيات، والثالوسات الخيطية أو الورقية أو الأنبوبية المجهرية، الموجودة في الموائل المائية والأرضية. والفرع المعاكس هو النباتات الملتوية، الذي يحتوي على النباتات البرية ومجموعة شبه عرقية من الطحالب الخضراء المعروفة مجتمعة باسم شعبة نباتات كاريانية، وتتألف من عدة فئات: طحالب مترابطة (أكثر من 4300 نوع)، وتحتوي على كائنات وحيدة الخلية، ومستعمرة، وخيطية خالية من الأسواط توجد حصريًا على وجه التقريب في موائل المياه العذبة؛ وطحالب كارية (450 نوعًا حيًا)، وتُعرف كذلك باسم طحالب الحجر، وتتكون من ثالوسات معقدة متعددة الخلايا توجد فقط في موائل المياه العذبة؛ والعقديات الكلبسية (52 نوعًا)، ولها ثالوسات خيطية غير متفرعة؛ وهلبانيات الغمد (36 نوعًا)، وتحتوي على ثالوسات خيطية متفرعة؛ ومتوسطانية الميسم، وتتألف من نوع واحد من السوطيات المتقشرة؛ وكلوروكيبوفايسي (خمسة أنواع)، ولها أشكال سارسينويد.
وفي هذا السياق، البلاستيدات العتيقة هي فرع حيوي يضم المجموعات الضوئية التي يُرجّح أنها حصلت على بلاستيداتها من خلال حدث واحد من التعايش الداخلي الأولي مع بكتيريا زرقاء. وتشمل النباتات الجنينية وجزءًا كبيرًا من تنوع الطحالب، أغلبها من الطحالب الخضراء التي تطورت منها النباتات، والطحالب الحمراء. ويحتوي سلالة ثالثة من الطحالب، وهي الطحالب الزرقاء (25 نوعًا)، على أنواع نادرة وغير معروفة توجد على أسطح المياه العذبة والموائل الأرضية.
إضافةً إلى ذلك، الطحالب الحمراء أو الرودوفايتا (أكثر من 7100 نوع) هي مجموعة ذات أشكال مورفولوجية متنوعة، تتراوح من الخلايا الوحيدة إلى الخيوط متعددة الخلايا إلى ثالوس ضخم شبه برنشيمي، وجميعها بدون أسواط. وتفتقر إلى اليخضور وتجمع الطاقة الضوئية فقط من خلال بروتينات الفيكوبيلين. وتتنوع دورات حياتها وقد تشمل جيلين أو ثلاثة أجيال. وتتواجد في الموائل الأرضية، والمياه العذبة، وبشكل أساسي في الموائل البحرية، من منطقة المد والجزر إلى المياه العميقة؛ بعضها متكلس ويُعد مكونًا حيويًا للنظم البيئية البحرية مثل الشعاب المرجانية. يرتبط ارتباطًا وثيقًا بالطحالب الحمراء سلالتان صغيرتان من السوطيات المفترسة غير الضوئية: الحيمرانة الموجودة في المياه العذبة والبحرية (3 أنواع)، والتي لا تزال تحتفظ بأدلة جينية على بلاستيدات أثرية؛ و البيكوزوا البحرية (نوع واحد)، والتي تفتقر إلى أي بقايا للبلاستيدات. قد يشير الوضع التطوري للبيكوزوا إلى وجود حدثين منفصلين من التعايش الداخلي الأولي، على عكس حدث واحد.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟