فرضية الخلية البيضية
المحتويات
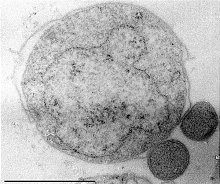
بدايةً، تقترح فرضية الخلية البيضية (eocyte hypothesis)في علم الأحياء التطوري أن حقيقيات النوى نشأت من مجموعة من بدائيات النوى تسمى الخلية البدائية (تم تصنيفها لاحقًا باسم المستحرة المتقلبة(Thermoproteota )، و هي مجموعة من العتائق ). بعد أن اكتشف فريقه في جامعة كاليفورنيا، لوس أنجلوس الخلايا البيضية في سنة 1984، صاغ جيمس أ. ليك الفرضية على أنها "شجرة الخلايا البيضية" التي اقترحت أن حقيقيات النوى جزء من العتائق. افترض ليك أن شجرة الحياة تحتوي على فرعين رئيسيين فقط: بدائيات النوى، والتي تشمل البكتيريا والعتائق ، والنواة، والتي تضم حقيقيات النوى والخلايا البيضية . تم إحياء أجزاء من هذه الفرضية المبكرة في نظام تصنيف بيولوجي أحدث نظام مكون من مجالين والذي أطلق على المجالات الأساسية اسم العتائق والبكتيريا. ونتناول فيما يلي مزيدًا من التفاصيل.
وفي هذا الصدد، استندت فرضية ليك على تحليل المكونات البنيوية للريبوسومات . لكن تم تجاهله إلى حد كبير، حيث طغى على فكرته نظام النطاقات الثلاثة الذي اعتمد على التحليل الجيني الأكثر دقة. و في سنة 1990، اقترح كارل ووز و زملاؤه أن الحياة الخلوية تتكون من ثلاثة مجالات هي كالتالي: حقيقيات النوى ، و البكتيريا ، و العتائق - ذلك استنادًا إلى تسلسل الحمض النووي الريبي الريبوسومي . لذلك، كان مفهوم النطاقات الثلاثة مقبولاً على نطاق واسع في علم الوراثة، وأصبح نظام التصنيف المفترض الرفيع المستوى، و تم نشره في الكثير من الكتب المدرسية.
ومن ناحية أخرى، أدى تجدد أبحاث العتائق بعد العقد الأول من القرن الحادي والعشرين، باستخدام التقنيات الوراثية المتقدمة، واكتشاف مجموعات جديدة من العتائق في وقت لاحق، إلى إحياء فرضية الخلية الأولى ؛ وبالتالي، وجد نظام المجالين قبولاً أوسع بعدها.
الحجج ضد
وفي السياق ذاته، نظرًا للتشابهات الموجودة بين حقيقيات النوى والعتائق والبكتيريا، يُعتقد أن المصدر الرئيسي للتنوع الجيني هو من خلال النقل الجيني الأفقي. يوضح النقل الجيني الأفقي سبب وجود تسلسلات عتيقة في البكتيريا ووجود تسلسلات بكتيرية في العتائق. قد يفسر هذا سبب تشابه عوامل الاستطالة الموجودة في العتائق والحقيقيات، والبيانات المتاحة في الوقت الحالي غير واضحة باعتبارها نقلًا أفقيًا للجينات، أو نقلًا رأسيًا للجينات، أو تكافلًا داخليًا، وقد تكون وراء تشابه تسلسل الجينات. إضافة إلى ذلك، فرضية الخلية البيضيةتواجه كذلك مشكلات بسبب نظرية التكافل الداخلي ، حيث تكون الخلايا البدائية قادرة على التهام البكتيريا لتكوين عضيات مرتبطة بالغشاء. يُعتقد أن هذه الكائنات بدائية النواة السلفية بدأت في إقامة علاقات تكافلية خارجية مع كائنات بدائية نوى أخرى، ثم ابتلعت هذه الكائنات التكافلية تدريجيًا من خلال نتوءات غشاء الخلية.
ومن جهة أخرى، على الرغم من أن البيانات الأحدث توفر أدلة لصالح العلاقة بين حقيقيات النوى والكائنات الحية الدقيقة الحرارية من خلال تحليل عوامل الاستطالة، إلا أن التجارب السابقة مع عوامل الاستطالة قدمت أدلة ضد مثل هذه العلاقة. استعمل هاسيجاوا وآخرون عوامل الاستطالة هذه لإظهار أن حقيقيات النوى والبكتيريا العتيقة أكثر ارتباطًا من البكتيريا العتيقة والبكتيريا الحقيقية مما تم شرحه في نظام الشجرتين هذا.
نظام المجالين
من جهة ثانية، "[إن] شجرة النطاقات الثلاثة تمثل العلاقات التطورية بشكل خاطئ، وتقدم وجهة نظر مضللة حول كيفية تطور حقيقيات النوى من بدائيات النوى. إنها تتعرف على قرابة محددة بين البدائيات والعتيقات، ولكنها تعتقد أن الأخيرة نشأت بشكل مستقل، وليس من داخل البدائيات."
وفي السياق ذاته، إن اكتشاف البروتينات المميزة لحقيقية النواة في TACK وعتائق الآسكارد يدعم فكرة أن حقيقيات النواة تطورت من العتائق. حيث تشير اكتشافات المزيد من الآسغارد والفهم الأفضل لطبيعتها إلى أنها ربما تكون أصل حقيقيات النوى وتعتبر "دليلاً قوياً على فرضية الخلية البيضية". على الرغم من أن هذه الحقائق لا تستبعد تمامًا مفهوم النطاقات الثلاثة، إلا أنها عززت بشكل عام نظام المجالين.
وفي هذا الصدد، مع اكتشاف المزيد من العتائق لاحقًا وتوافر تحليلات جينية أفضل، أدرك الجميع أن مفهوم المجالات أو النطاقات الثلاثة ربما لا يمثل الأصل الصحيح للكائنات حقيقية النواة. حيث كتب فورد دوليتل ، الذي كان حينها في جامعة دالهوزي ، في عام 2020:
إضافةً إلى ذلك، يرجع ذلك إلى أن الأبحاث التي أجريت منذ أوائل العقد الأول من القرن الحادي والعشرين كشفت عن قضيتين مهمتين: أولا، نشأت حقيقيات النوى داخل العتائق، وتمثل مجموعة جديدة من العتائق تسمى الآسجارد جذر حقيقيات النوى. وقد أدى هذا إلى إعادة ولادة فرضية الخلية البيضية و تطوير نظام المجالين.
نظام النطاقات الثلاثة
في هذا الإطار، كانت الضربة الأكثر أهمية لفرضية الخلية البيضية وتصنيف ليك هي تطوير تسلسل الحمض النووي الريبي الريبوسومي الذي أصبح محددًا موثوقًا به في التصنيف البيولوجي. تم تقديم هذه التقنية في سنة 1977 بواسطة كارل ووز وجورج إي فوكس في التصنيف، وأشارت هذه التقنية إلى أن العتائق (التي لم تكن معروفة في ذلك الوقت سوى الميثانوجينات) والبكتيريا كانت مجموعات مميزة من الكائنات الحية. تم تأسيس مملكتين، البكتيريا العتيقة (العتيقة) والبكتيريا الحقيقية (للبكتيريا). وبناءً على دراسات أخرى، قدم ووس(Woese) و اوتو كاندلير(Otto Kandler) و مارك ويليس( Mark Wheelis )مفهوم " النطاق " في سنة 1990 باعتباره أعلى مستوى للتصنيف البيولوجي، و اقترحوا نظام النطاقات الثلاثة المكون من حقيقيات النوى و البكتيريا و العتائق. وباستخدامها قاموا بتصنيف الخلايا الأولية على أنها عتائق تحت شعبة العتائق المصدرية(Crenarchaeota) (والتي تمت إعادة تسميتها إلىالمستحرة المتقلبة( Thermoproteota )في عام 2021 ).
وفي هذا الصدد، اكتسب التصنيف قبولًا تدريجيًا وتم الاعتراف به باعتباره " أكثر الفرضيات العلمية تطورًا و قبولًا على نطاق واسع [مع تصنيف الممالك الخمس ] فيما يتعلق بالتاريخ التطوري للحياة." وأصبح مفهومًا علميًا و تصنيفًا عامًا في الكتب المدرسية. على الرغم من أن ليك استمر في الدفاع عن تصنيفه للخلايا البدائية و فرضيته بدلاً من الاعتراف بأن الخلايا البيضية كانت من العتائق، فقد تم إهمال الفرضية إلى حد كبير و تضاءل دعمها لصالح نظام النطاقات الثلاثة.
الوصف
وفي السياق ذاته، في عام 1984، وصف جيمس أ. ليك و مايكل دبليو كلارك و إريك هندرسون و ميلاني أوكس من جامعة كاليفورنيا في لوس أنجلوس مجموعة جديدة من الكائنات بدائية النواة عُرفت باسم "مجموعة من البكتيريا المعتمدة على الكبريت". واستنادًا إلى بنية وتكوين وحداتها الريبوسومية، وجدوا أن هذه الكائنات كانت مختلفة عن غيرها من بدائيات النواة والبكتيريا والعتائق المعروفة في ذلك الوقت. أطلقوا عليها إسم الخلايا البيضية (eocytes)(نسبة إلى "خلايا الفجر") واقترحوها كمملكة بيولوجية جديدة. بحسب هذا الاكتشاف، فإن شجرة الحياة تمثلها أربع ممالك، وهي البكتيريا العتيقة، والبكتيريا الحقيقية، والخلايا حقيقية النواة، والخلايا البيضية.
وفي هذا السياق، الباركاريوتات (التي تتكون من البكتيريا الحقيقية ومجموعتين من العتائق المعروفة في ذلك الوقت، البكتيريا الهالوبكتيرية والميثانوجينات )
وفي السياق ذاته، النواة (التي تشمل حقيقيات النوى والكائنات الحية البدائية حقيقية النواة مثل الخلايا البيضية)
وعلى صعيد آخر، بعد تحليل تسلسلات الحمض النووي الريبوزي الريبوسومي(rRNA) للمجموعات الأربع، استنتج ليك في عام 1988 أن حقيقيات النوى كانت وثيقة الصلة بالخلايا البيضية بحيث تشكل المجموعتان نفس المجموعة ( أحادية النمط )، مما يعني أن حقيقيات النوى نشأت من الخلايا البيضية وليس من البكتيريا العتيقة، كما كان يُفترض عمومًا. كان هذا بمثابة تأسيس لفرضية الخلايا البيضية. في عام 1988، اقترح ليك تصنيفًا منهجيًا لجميع أشكال الحياة إلى مجموعتين فقط، و التي ذكرها لاحقًا باسم الممالك العظمى:
فرضية منافسة
إحياء
في هذا الإطار، هناك فرضية منافسة وهي أن بدائيات النوى تطورت لتزدهر في درجات حرارة أعلى للتهرب من الفيروسات من خلال فرضية التخفيض الحراري، إلا أن هذه الفرضية لا تأخذ في الاعتبار نشوء حقيقيات النوى ولا تأخذ في الاعتبار إلا أصول بدائيات النوى. ومع ذلك، فإن الانخفاض في التعقيد من أصل أكثر تعقيدًا هو أساس التطور الاختزالي حيث تحدث علاقة تعايشية، في حين يستعمل هذا الانخفاض الموضح في فرضية الاختزال الحراري علاقة طفيلية مع الفيروسات لشرح انتقال حقيقيات النوى المعقدة إلى بيئة أكثر قسوة؛ وهي فتحات المياه الحرارية في قاع المحيط.
التطور و المنافسة
وفي هذا الصدد، لم يتم الاعتراف على نطاق واسع بتصنيف ليك، لكن فرضية الخلية البيضية اكتسبت اهتمامًا كبيرًا بعد تقديمها بسبب الاهتمام بتحديد أصل الخلية حقيقية النواة. لكن المفهوم واجه مشكلة لأنه لم يكن معروفًا ماهية الخلايا البيضية، وهي المجموعة الحية الرئيسية التي استندت إليها الفرضية، و التي تنتمي إلى من العتائق. مثلًا، لا تزال الدراسات التي أجريت في أواخر الثمانينيات وأوائل التسعينيات تعامل الخلايا البيضية كمجموعة منفصلة عن الخلايا العتيقة. كما زعم ليك كذلك، فإن الفرضية المنافسة كانت تسمى شجرة البكتيريا العتيقة (كما قدمها كارل ووز من جامعة إلينوي في سنة 1987 ) أو نظرية البكتيريا العتيقة، والتي (من المفترض) ذكرت أن حقيقيات النوى نشأت من البكتيريا العتيقة، وليس من الخلايا البيضية.
من جهة ثانية، ونتيجة لهذا الارتباك، بدا أن بعض الدراسات تبطل هذه الفرضية. مثلًا، أبلغ العلماء اليابانيون في عام 1990 عن دراستهم حول عوامل الاستطالة Tu(EF-Tu) وG(EF-G) من مختلف الكائنات الحية والتي أظهرت أن حقيقيات النوى ترتبط ارتباطًا وثيقًا بالعتائق (الميثانوجين والهالوبكتريا)، وليس الخلايا البيضية. علاوة على ذلك، دعمت دراسات أخرى العلاقة بين حقيقيات النوى والعتائق ورفضت الفرضية الجديدة تماما. كما عارض تسلسل الحمض النووي الريبوزي الريبوسومي في عام 1989 كذلك شجرة الخلايا البيضية باعتبارها أصل حقيقيات النوى.
دراسات أثرية
من جانب آخر، إلى جانب كون حقيقيات النوى من أصل الثيرموبروتوتا (Thermoproteota)، اقترحت بعض الدراسات أن حقيقيات النوى ربما نشأت كذلك في مجموعة النيتروسوسفيروتا (المعروفة سابقًا باسم المنترزة الكرويةNitrososphaerota). وقد تم اقتراح شعبة فائقة تسمى تاك(TACK )والتي تشمل مجموعة المنترزة الكروية والثيرموبروتوتا و مجموعات أخرى من العتائق،[4] بحيث قد تكون هذه الشعبة الفائقة مرتبطة بأصل حقيقيات النوى. يُرى أن حقيقيات النوى تشترك في عدد كبير من البروتينات مع أعضاء من مجموعة TACK الفائقة وأن هذه العتائق المعقدة ربما كانت تتمتع بقدرات بلعمة بدائية لابتلاع البكتيريا.
ومن جهة أخرى، نتيجة للتحليل الميتاجينومي للمواد الموجودة بالقرب من الفتحات الحرارية المائية ، تم تسمية شعبة أخرى الأسكارد( Asgard) واقترح أنها أكثر ارتباطًا بالكائنات حقيقية النواة الأصلية ومجموعة شقيقة لـ TACK مؤخرًا. تتكون آسكارد من شعبة لوكياركيوتا (Lokiarchaeota)(التي تم اكتشافها أولاً)، وهايمدالاركيوتا (Heimdallarchaeota)(ربما تكون أقرب إلى حقيقيات النوى) و غيرها.
الدراسات الجزيئية
ومن ناحية أخرى، أظهر تسلسل بروتين الريبوسوم والتحليلات التطورية في عام 2004 أن حقيقيات النوى نشأت من العتائق. كما أشار التحليل الجينومي في سنة 2007 إلى أصل حقيقيات النوى على وجه التحديد من الثيرموبلازماتاليس (Thermoplasmatales). يُعتقد أن ما يسمى "بروتينات التوقيع حقيقية النواة" الأكتين ( خيوط دقيقة هيكلية خلوية تشارك في حركة الخلية)، والتوبولين (مكون الهيكل الخلوي الكبير، الأنابيب الدقيقة )، ونظام اليوبيكويتين (تحلل البروتين وإعادة تدويره)، والتي يُعتقد أنها فريدة من نوعها في حقيقيات النوى، تم العثور عليها في عتائق TACK (التي تضم شعبة Thaumarchaeota و Aigarchaeota وCrenarchaeota و Korarchaeota ) ولكنها لم توجد في عتائق أخرى. و هذا يشير إلى أن حقيقيات النوى يمكن دمجها في العتائق.
علاوةً على ذلك، مع التقدم في علم الجينوم ، شهدت فرضية الخلية البيضية انتعاشًا بداية من منتصف العقد الأول من القرن الحادي والعشرين. مع تسلسل المزيد من الجينومات العتيقة، تم اكتشاف الكثير من الجينات التي تشفر السمات حقيقية النواة في الكثير من شُعب العتائق، مما يوفر على ما يبدو الدعم للفرضية الجديدة. حيث توصلت الأبحاث القائمة على تحليل البروتينات كذلك إلى بيانات داعمة باستخدام عامل الاستطالة 1-α ( eEF-1 )، وهو بروتين منزلي شائع، لمقارنة التشابه البنيوي بين الأنساب حقيقية النواة والأنساب القديمة. علاوة على ذلك، تم تسلسل بروتينات أخرى من خلال التحليل البروتيني مع هياكل متجانسة في بروتينات الصدمة الحرارية الموجودة في كل من حقيقيات النوى والعتائق. و تم التعرف على بنية بروتينات الصدمة الحرارية هذه من خلال علم البلورات بالأشعة السينية للعثور على البنية ثلاثية الأبعاد للبروتينات. ومع ذلك، فإن هذه البروتينات لها أغراض مختلفة حيث أن بروتين الصدمة الحرارية في حقيقيات النوى هو جزء من المركب التائي بينما بروتين الصدمة الحرارية في العتائق هو مرافق جزيئي. يؤدي هذا إلى حدوث مشكلة في تشابه التسلسل الذي تم رؤيته بين بروتينات الصدمة الحرارية 70 كيلو دالتون في حقيقيات النوى و البكتيريا السالبة الجرام.
اكتشاف الأسكارد
ومن ناحية أخرى، تحتوي لأسكارد على ما لا يقل عن 80 جينًا لبروتينات التوقيع حقيقية النواة. إلى جانب بروتينات الأكتين والتوبولين واليوبيكويتين وESCRT الموجودة في عتائق TACK ، كما تحتوي على جينات وظيفية للعديد من البروتينات حقيقية النواة الأخرى مثل البروفيلينات ، ونظام اليوبيكويتين (بروتينات شبيهة بـ E1 وE2 و إصبع الخاتم الصغير (srfp))، وأنظمة نقل الأغشية (مثل مجالات Sec23/24 وTRAPP)، ومجموعة متنوعة من GTPases الصغيرة (بما في ذلك نظائر GTPase من عائلة Gtr/Rag )، والجيلسولينات .
من جهة ثانية، تم اكتشاف الأسكارد(Asgard)، والتي تم وصفها بأنها "عتائق شبيهة بالكائنات حقيقية النواة"، في سنة 2012. تحتوي أولى الكائنات الآسغاردية المعروفة والتي تسمى Lokiarchaeota)على جينات بروتينية حقيقية النواة أكثر من مجموعة TACK التي دعمت اندماج مجموعة حقيقية النواة و العتيقة، مما يعني وجود مجالًا واحدًا من العتائق فقط. إضافة إلى ذلك، أشارت الدراسات النشوئية إلى أن Heimdallarchaeota ، وهي مجموعة أخرى من الأسغارد، هي أقرب أقارب حقيقيات النوى. تم وصف مجموعة جديدة منها في عام 2021، تسمى ووكونغارتشايوتا( Wukongarchaeota )، وهي كذلك من بين الجذور حقيقية النواة. علاوة على ذلك، تم الإبلاغ عن مجموعة آسكارد جديدة أخرى في عام 2022، تسمى نجوردارتشايوتا( Njordarchaeota )، وهي مرتبطة بفرع Heimdallarchaeota–Wukongarchaeota وربما تكون المجموعة الأصلية للكائنات حقيقية النواة.
جذر شجرة الخلية البيضية
وفي السياق ذاته، على الرغم من أن الفيروسات العتيقة لم تتم دراستها بشكل جيد مثل العاثيات البكتيرية، فمن المعتقد أن فيروسات dsDNA أدت إلى دمج الجينوم الفيروسي في الجينومات العتيقة. أدى نقل المادة الوراثية من خلال ناقل فيروسي إلى زيادة التعقيد في الخلايا ما قبل حقيقية النواة. كل هذه النتائج لا تغير شجرة الخلايا البويضية كما هو موضح هنا من حيث المبدأ، و لكنها تدرسها بدقة أعلى .
من جانب آخر، قد يكون جذر شجرة الخلايا البيضية موجودًا في عالم الحمض النووي الريبي؛ أي أن الكائن الجذري ربما كان خلية ريبوزية (تُعرف كذلك باسم الخلية الريبوزية). بالنسبة للحمض النووي الخلوي ومعالجة الحمض النووي، تم اقتراح سيناريو "خارج الفيروس": ربما كان تخزين المعلومات الوراثية في الحمض النووي ابتكارًا قامت به الفيروسات وتم تسليمها لاحقًا إلى الخلايا الريبوزية مرتين، مرة بتحويلها إلى بكتيريا ومرة أخرى تحويلها إلى عتائق.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟