مسار إشارات الإيثيلين
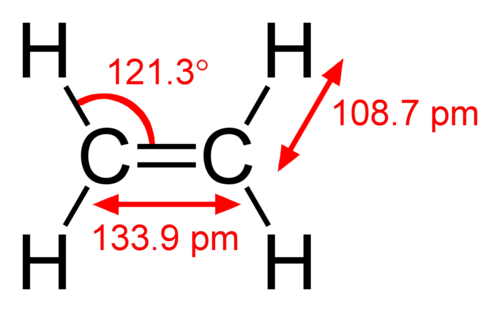
قبل الخوض في التفاصيل، مسار إشارات الإيثيلين هو نقل الإشارة في الخلايا النباتية لتنظيم عمليات النمو والتطور الهامة. يعمل كهرمون نباتي، الغاز الإيثيلين هو المسؤول عن تعزيز إنبات البذور ، ونضج الثمار ، وفتح الزهور ، و الخراج (أو ذرف) من الأوراق واستجابات الإجهاد. هذا هو أبسط غاز ألكين وأول جزيء غازي تم إكتشافه ليعمل كهرمون. ونتناول فيما يلي مزيدًا من التفاصيل.
ومن جهة أخرى، على عكس التحويلات الأخرى للإشارة، فإن الإيثيلين هو مثبط نشاطه المستقبلي. مستقبلات الإيثيلين نشطة بدون الإيثيلين بسبب الارتباط مع مستقبلات أخرى نشطة إنزيميًا مثل الاستجابة الثلاثية التأسيسية 1 (CTR1) والإيثيلين غير الحساسة 2 (EIN2). يتسبب ارتباط الإيثيلين في انقسام EIN2 إلى قسمين، يمكن للجزء C-terminal من البروتين تنشيط عوامل النسخ المختلفة لإحداث تأثيرات الإيثيلين. هناك كذلك مسار غير قانوني ينشط فيه الإيثيلين مستقبلات السيتوكينين، وبالتالي ينظم نمو البذور (فتحة الفم) ونمو الجذر (meristem القمي).
علاوةً على ذلك، يأتي أغلب الفهم حول نقل إشارة الإيثيلين من الدراسات التي أجريت على أرابيدوبسيس ثاليانا. يمكن أن يرتبط الإيثيلين بخمسة مستقبلات غشائية مختلفة على الأقل. على الرغم من التنوع الهيكلي ، إلا أن جميع مستقبلات الإيثيلين تظهر تشابها (التماثل) إلى نظام تنظيمي مكون من عنصرين في البكتيريا ، مما يدل على أصل مشترك من سلف البكتيريا. يرتبط الإيثيلين بالمستقبلات الموجودة على غشاء الخلية الشبكة الإندوبلازمية. على الرغم من هوموديمرز من المستقبلات مطلوبة للحالة الوظيفية ، يرتبط جزيء إيثيلين واحد فقط بكل ديمر.
نقل الإشارة
ومن جهة أخرى، يؤدي ارتباط الإيثيلين بالمستقبل إلى تعطيل الفسفرة EIN2. لا يسبب أي تغيير معين في السمة الهيكلية لمركب receptor-CTR1-EIN2 أو يوقف الفسفرة. في الواقع، عند مستوى منخفض من الإيثيلين، هناك زيادة في المجمعات receptor-CTR1-EIN2، والتي يتم تخفيضها فيما بعد مع ارتفاع مستوى الإيثيلين. لم يتم فهم عملية الدوران بشكل كامل بعد. النتيجة الوحيدة لربط الإيثيلين هي تقليل فسفرة EIN2. في ظل هذه الحالة يتم تنشيط EIN2 ويتم شقها لتحرير EIN2-C من الجزء EIN2-N المرتبط بالغشاء. الإنزيم الذي يسبب الانقسام غير معروف بعد. دور EIN2-N غير معروف كذلك في A. thaliana. ولكن في الأرز، يتفاعل OsEIN2-N المتماثل (Os for Oryza sativa، الاسم العلمي أرز أسيوي) مع بروتين آخر، mao huzi 3 (MHZ3)، وهو طفرة تؤدي إلى عدم الحساسية للإيثيلين.
من جهة ثانية، EIN2-C هو المكون الرئيسي الذي يتوسط إشارة الإيثيلين في الخلية. إنه يعمل بطريقتين. في إحداها، تربط mRNAs التي ترمز لبروتينات F-box EIN3-binding، EBF1 EBF2 لتسبب تحللها. في آخر، يدخل النواة للارتباط مع البروتين EIN2 المرتبط بالطاقة النووية 1 (ENAP1) لتنظيم أنشطة النسخ والترجمة EIN3 وعامل النسخ EIL1 ذي الصلة للتسبب في أغلب استجابات الإيثيلين.
ومن ناحية أخرى، هناك بروتينان حاسمان للتفاعل مع الإيثيلين مع المستقبلات ، وهما الاستجابة الثلاثية التأسيسية 1 (كتر 1) والإيثيلين غير الحساس 2 (إين 2). كتر 1 هو سيرين / ثريونين بروتين كيناز الذي يعمل كمنظم سلبي للإشارات الإيثيلين. وهو عضو في بروتين الإشارات كيناز البروتين المنشط ميتوجين (مابك) كيناز كيناز. إين 2 مطلوب لإشارات الإيثيلين وهو جزء من نرامب (بروتين البلاعم الطبيعي المرتبط بالمقاومة وهي تتألف من جزء كبير ، ن محطة تحتوي على مجالات متعددة عبر الغشاء (عين 2-ن) في غشاء إيه وجزء عصاري خلوي ج-محطة (عين 2-ج). بروتينات أخرى مثل الارتداد إلى حساسية الإيثيلين 1 (آر تي 1), السيتوكروم ب 5 كما يلعب رباعي الببتيد تكرار البروتين 1 (ترب 1) أدوارا مهمة في إشارات الإيثيلين. ار 1 هو البروتينات المحفوظة للغاية في النباتات والطلائعيات ولكن غائبة في الفطريات وبدائيات النوى. يرتبط ترب 1 وراثيا إلى الغشاء و ملفوف لفائف البروتين 1 (تك 1) في الحيوانات التي تشارك أكتين وظيفة وتتنافس مع سلاح الجو الملكي البريطاني-1 ل رأس ملزمة.
ومن جهة أخرى، على عكس أغلب عمليات نقل الإشارات حيث تنشط الربيطات مستقبلاتها لنقل إشارات، يعمل الإيثيلين كمثبط لمستقبله، والمستقبل هو المنظم السلبي في استجابات الإيثيلين. مستقبلات الإيثيلين نشطة في غياب الإيثيلين. بدون الإيثيلين، يرتبط المستقبل CTR1 في مجال كيناز C-terminal. ينشط نشاط كيناز CTR1 ويفسح EIN2 المجاورة. طالما ظل EIN2 شديد الفسفرة، فإنه يظل غير نشط ولا يوجد أبدًا تتابع إشارة الإيثيلين. في ETR1، مستقبلات هيستيدين كيناز مطلوبة للربط مع EIN2. RTE1 يمكن أن ترتبط وتنشط ETR1 مستقلة عن CTR1. هناك أدلة على أن السيتوكروم b5 يساعد أو يتصرف بشكل مشابه RTE1.
مستقبلات الإيثيلين
وفي هذا السياق، على الرغم من أن المستقبلات نشطة وظيفيا مثل الثنائيات ، إلا أن أيون نحاسي واحد فقط يرتبط بمثل هذا الثنائيات ، مما يشير إلى أن ثنائيات مستقبلات واحدة تربط جزيء إيثيلين واحد فقط. تؤدي الطفرات في مواقع الربط إلى إيقاف ارتباط الإيثيلين وأيضا جعل النباتات غير حساسة للإيثيلين. سيس - 65 في البروتين اللولب 2 مهم بشكل خاص كموقع ملزم من أيون النحاس كما طفرة في أنه يتوقف النحاس والإيثيلين ملزمة. ج-المحطة الطرفية أساسا نظام مكون اثنين بكتيرية مع النشاط كيناز ومنظم الاستجابة. إي تي آر 1 لديها الهيستيدين كيناز النشاط ، في حين أن إتر2 ، إرس2 ، و إين 4 لديها سيرين / ثريونين كيناز النشاط ، و إرس 1 على حد سواء. كيناز الهستيدين في إتر1 غير مطلوب لإشارات الإيثيلين.
كذلك، يرتبط الإيثيلين بمستقبلات محددة عبر الغشاء موجودة على غشاء الخلية للشبكة الإندوبلازمية. هناك مستقبلات الإيثيلين مختلفة الأشكال الإسوية. خمسة أشكال إسوية معروفة في أرابيدوبسيس ثاليانا والتي تسمى استجابة الإيثيلين / مستقبلات 1 (إتر 1) ، استشعار استجابة الإيثيلين 1 (إرس 1) ، إرت 2 ، إرس 2 ، والإيثيلين غير حساس 4 (إين 4). و إتر1 هو مماثل (تسلسل محفوظ) في النباتات المختلفة ولكن مع اختلافات طفيفة في الأحماض الأمينية. ألف-تاليانا تصنف المستقبلات إلى فئتين فرعيتين على أساس العلاقة الوراثية والسمات الهيكلية المشتركة ، وهي فصيلة فرعية 1 التي تشمل إي تي آر 1 و إرس 1 ، وفصيلة فرعية 2 التي تتكون من إي تي آر 2 ، إرس 2 ، و إين 4. في الطماطم هناك سبعة أنواع من مستقبلات الإيثيلين اسمه سليتر1 ، سليت2 ، سليتر3 ، سليتر4 ، سليتر5 ، سليتر6 ، و سليتر7 (سي ل سولانوم ليكوبرسيكوم, العلمية الطماطم).
في هذا الإطار، جميع مستقبلات الإيثيلين لها تنظيم مماثل: قصيرة ن-المجال الطرفي, ثلاثة مجالات عبر الغشاء المحفوظة باتجاه ن-المحطة الطرفية, متبوعا بمجال القوات الجوية الأمريكية لوظيفة غير معروفة, ثم زخارف خرج الإشارة في منطقة ج-المحطة الطرفية. يتعرض ن-تيرمينوس على تجويف الشبكة الإندوبلازمية ، و ج-تيرمينوس التي تتعرض لسيتوبلازم الخلية. تحتوي المحطة الطرفية على مواقع ربط الإيثيلين وثنائيات وتوطين الغشاء. اثنين من مستقبلات مماثلة تتحد لتشكيل هوموديمر من خلال جسر ثاني كبريتيد تشكيل تفاعل السيستين-السيستين. ومع ذلك ، يتم توطين الغشاء الرئيسي بواسطة المجال عبر الغشاء، والذي يمكنه كذلك ربط الإيثيلين بمساعدة النحاس العامل المساعد. يتم توفير أيون النحاس بواسطة بروتين عبر الغشاء يستجيب للخصم 1 (ران1) من البروتين المضاد للأكسدة 1 (أتكس1) عبر تيبلين, أو مباشرة عن طريق بروتين نقل النحاس.
الأصل والتطور
وفي هذا السياق، يظهر تحليل النشوء والتطور كذلك الأصل المشترك لمستقبلات الإيثيلين في النباتات ومجال ربط الإيثيلين في البكتيريا الزرقاء. في عام 2016 ، اكتشف راندي إف لاسي وبراد إم بيندر في جامعة تينيسي أن البكتيريا الزرقاء, سينكوسيستيس س. 6803 استجابة لإشارة الإيثيلين ولها مستقبلات الإيثيلين وظيفية ، والتي أطلقوا عليها اسم سينكوسيستيس استجابة الإيثيلين 1 (سينيتر1). كما أظهروا أن سينيتر1 يعمل بشكل مشابه لمستقبلات الإيثيلين النباتية في الإيثيلين الملزم, تشير إلى أصل مستقبلات الإيثيلين من سينكوسيستيس- البكتيريا الزرقاء ذات الصلة. ومع ذلك ، فإن الاختلاف الوظيفي هو أن نشاط الكيناز ليس إلزاميا لربط الإيثيلين في النباتات ، ولكنه الدور الرئيسي للتزامن 1.
إضافةً إلى ذلك، تشبه مستقبلات الإيثيلين وظيفيا النظام البكتيري المكون من عنصرين والذي يحتوي على موقعين للتنشيط منظم الاستجابة و هيستيدين كيناز. يتشابه الجزء الطرفي الكربوكسي السيتوبلازمي لمستقبلات الإيثيلين في تسلسل الأحماض الأمينية مع منظم الاستجابة وكيناز الهيستيدين في البكتيريا ؛ على الرغم من أن المنطقة الطرفية ن مختلفة تماما. تشير هذه العلاقات الجينية والبروتينية إلى أن المستقبلات والمستقبلات البكتيرية المكونة من مكونين وكذلك فيتوكروميس وتطورت مستقبلات السيتوكينين في النباتات من وكانت المكتسبة من قبل النباتات من أ البكتيريا الزرقاء التي أدت إلى البلاستيدات، عضيات الطاقة في النباتات والطلائعيات.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟