مستقبل الهرمون الملوتن/موجهة الغدد التناسلية المشيمائية
المحتويات
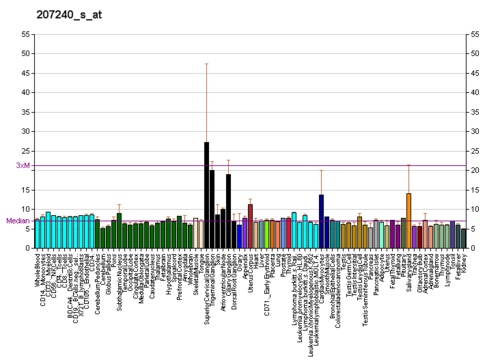
في البداية، مستقبل الهرمون الملوتن/الغدد التناسلية المشيمائية (LHCGR)، المعروف كذلك باسم مستقبل اللوتروبين/الغدد التناسلية المشيمائية (LCGR) أو مستقبل الهرمون الملوتن (LHR)، هو مستقبل عبر الغشاء يوجد بشكل رئيسي في المبيض والخصية، ولكن كذلك في الكثير من الأعضاء خارج الغدد التناسلية مثل الرحم والثدي. يتفاعل هذا المستقبل مع كل من الهرمون الملوتن (LH) والغدد التناسلية المشيمائية (مثل hCG في البشر) ويمثل مستقبل مقترن بالبروتين (GPCR). يعتبر تفعيله ضروريًا للوظيفة الهرمونية أثناء التكاثر. ونتناول فيما يلي مزيدًا من التفاصيل.
العمل
علاوةً على ذلك، الوظيفة الرئيسية لمستقبل LHCG هي تنظيم التصنيع الستيرويدي. يتم تحقيق ذلك من خلال زيادة مستويات إنزيم انشقاق سلسلة الكوليسترول الجانبية داخل الخلايا، وهو عضو في عائلة سيتوكروم بي450. يؤدي ذلك إلى زيادة تحويل الكوليسترول إلى سلائف الأندروجين المطلوبة لصنع الكثير من الهرمونات الستيرويدية، بما في ذلك التستوستيرون والإستروجينات.
خارج الغدد التناسلية
تنظيم المستقبل
في هذا الإطار، تم العثور على LHCGR في الكثير من أنواع الأنسجة خارج الغدد التناسلية، ولا يزال الدور الفسيولوجي لبعضها غير مستكشف إلى حد كبير. تم العثور على المستقبلات في الرحم، الحيوانات المنوية، الحويصلات المنوية، البروستاتا، الجلد، الثدي، الغدد الكظرية، الغدة الدرقية، الشبكية العصبية، الخلايا العصبية الصماء، وفي دماغ الفئران.
المبيض
ومن ناحية أخرى، في المبيض، يعتبر مستقبل LHCG ضروريًا لنضوج الجريبات والإباضة، وكذلك وظيفة الجسم الأصفر. يتطلب تعبيره تحفيزًا هرمونيًا مناسبًا من قبل الهرمون المنبه للجريب (FSH) والإستراديول. يوجد LHCGR على خلايا الحبيبية، خلايا الثيكا، خلايا الجسم الأصفر، والخلايا الخلالية. يتم إعادة تحفيز LCGR من خلال زيادة مستويات موجهة الغدد التناسلية المشيمائية في حالة تطور الحمل. بدوره، يتم إطالة وظيفة الجسم الأصفر ويصبح الوسط الهرموني داعمًا للحمل الناشئ.
المعدلات
يمكن أن تتداخل الأجسام المضادة لـ LHCGR مع نشاط LHCGR.
الخصية
من جهة ثانية، في الذكور، تم تحديد LHCGR على خلايا لايديغ التي تعتبر حاسمة لإنتاج التستوستيرون، ودعم تكوين الحيوانات المنوية.
ومن ناحية أخرى، يعتبر عمل LHCGR الطبيعي ضروريًا لتطور الجنين الذكري، حيث تنتج خلايا لايديغ الجنينية الأندروستينديون الذي يتم تحويله إلى التستوستيرون في خلايا سيرتولي الجنينية لتحفيز الذكورة.
إزالة التحسس
ومن جهة أخرى، تصبح مستقبلات LHCGR غير حساسة عند تعرضها لـ LH لفترة من الوقت. التفاعل الرئيسي لهذا التنظيم التنازلي هو الفسفرة للنطاق داخل الخلية (أو السيتوبلازم) للمستقبل بواسطة كينازات البروتين. تفصل هذه العملية بروتين Gs عن LHCGR.
مضادات LHCGR
ومن ناحية أخرى، تم وصف سلسلة من المركبات القائمة على الثينوبير(يم)يدين التي أدت إلى تحسين Org 43553 كأول ناهضات لمستقبل الهرمون الملوتن.
إضافةً إلى ذلك، في سنة 2019، تم الإبلاغ عن اكتشاف مضادات قوية وانتقائية لمستقبل الهرمون الملوتن (BAY-298 وBAY-899) والتي كانت قادرة على تقليل مستويات الهرمونات الجنسية في الجسم الحي. يفي الأخير بمعايير الجودة لـ"مسبار كيميائي مُتبرع به" كما تم تعريفه من قبل اتحاد الجينوم البنيوي.
التنظيم التنازلي
كذلك، يشير التنظيم التنازلي إلى انخفاض عدد جزيئات المستقبلات. عادة ما يكون هذا نتيجة التدخل الخلوي. في هذه العملية، يرتبط مركب LCGR-الهرمون بأرستين ويتجمع في الحفر المطلية بالكلاثرين. تجذب الحفر المطلية بالكلاثرين دينامين وتنفصل عن سطح الخلية، مكونة حويصلات مطلية بالكلاثرين. يتم معالجة الحويصلات المطلية بالكلاثرين إلى إندوسومات، يتم إعادة تدوير بعضها إلى سطح الخلية بينما يتم توجيه البعض الآخر إلى الجسيمات الحالة. يتم تحطيم المستقبلات الموجهة إلى الجسيمات الحالة. يؤدي استخدام الناهضات طويلة المفعول إلى تنظيم عدد المستقبلات من خلال تعزيز التدخل الخلوي.
الفسفرة بواسطة كينازات البروتين المعتمدة على cAMP
وعلى صعيد آخر، يتم تضخيم الإشارة من خلال مشاركة cAMP والفسفرة الناتجة. يتم تعديل هذه العملية بواسطة البروستاجلاندين. منظمات خلوية أخرى تشارك في هذه العملية تشمل تركيز الكالسيوم داخل الخلايا المنظم من خلال تفعيل فوسفوليباز C، أكسيد النيتريك، وعوامل النمو الأخرى.
من جانب آخر، يتم تفعيل كينازات البروتين المعتمدة على أدينوسين أحادي الفوسفات الحلقي (بروتين كيناز ألفا) من خلال سلسلة الإشارات الناتجة عن تفعيل بروتين Gs بواسطة مستقبل LHCG. يرتبط Gs المنشط بأنزيم محلقة الأدينيلات مما يؤدي إلى إنتاج أحادي فوسفات الأدينوسين الحلقي (cAMP). توجد كينازات البروتين المعتمدة على cAMP على شكل رباعيات بروتينية مع وحدتين تنظيميتين ووحدتين تحفيزيتين. عند ارتباط cAMP بالوحدات التنظيمية، يتم إطلاق الوحدات التحفيزية وتبدأ في فسفرة البروتينات مما يؤدي إلى العمل الفسيولوجي. يتم تحلل cAMP بواسطة فوسفوديستراز وإطلاق 5’AMP. أحد أهداف بروتين كيناز ألفا هو بروتين ربط عنصر الاستجابة للبروتين المرتبط بعنصر الاستجابة لكامپ (CREB) cAMP، ، الذي يرتبط بـحمض نووي ريبوزي منقوص الأكسجين في نواة الخلية من خلال تفاعلات مباشرة مع تسلسلات DNA محددة تسمى عناصر استجابة cAMP (CRE)؛ تؤدي هذه العملية إلى تفعيل أو تعطيل نسخ الجينات.
توجد مسارات أخرى لنقل الإشارة لمستقبل LHCGR.
بنية المستقبل
علاوةً على ذلك، مثل مستقبلات GPCR الأخرى، يمتلك مستقبل LHCG سبعة نطاقات عبر الغشاء أو لولبات عبر الغشاء. النطاق الخارجي للمستقبل مرتبط بالجليكوزيل إلى حدّ كبير. تحتوي هذه النطاقات عبر الغشاء على بقايا سيستين محفوظة للغاية، والتي تبني روابط ثنائي الكبريتيد لتثبيت بنية المستقبل. الجزء عبر الغشاء متشابه بدرجة كبيرة مع أعضاء آخرين من عائلة رودوبسين من مستقبلات GPCR. النطاق C الطرفي موجود داخل الخلية وهو قصير، وغني ببقايا سيرين وثريونين للارتباط المحتمل بالفسفرة.
من جهة ثانية، يتكون LHCGR من 674 حمضًا أمينيًا وله كتلة جزيئية تتراوح بين 85–95 كيلو دالتون بناءً على مدى الارتباط بالجليكوزيل.
التفاعلات
- ثبت أن مستقبل الهرمون الملوتن/الغدد التناسلية المشيمائية يتفاعل مع GIPC1.
- المراجع
- قراءة إضافية
- روابط خارجية
ارتباط اللجين ونقل الإشارة
كذلك، عند ارتباط LH بالجزء الخارجي من المستقبل عبر الغشاء، يحدث نقل الإشارة. تؤدي هذه العملية إلى تفعيل بروتين G متغاير الثلاثي. يؤدي ارتباط LH بالمستقبل إلى تغيير التكوين الكيميائي. يعزز المستقبل المنشط ارتباط ثلاثي فوسفات الغوانوزين (GTP) ببروتين G وتفعيله لاحقًا. بعد ارتباط GTP، ينفصل بروتين G متغاير الثلاثي عن المستقبل ويتفكك. ترتبط الوحدة الفرعية Gs بمحلقة الأدينيلات وتفعّل نظام أحادي فوسفات الأدينوسين الحلقي (cAMP).
من جهة ثانية، يُعتقد أن جزيء المستقبل يوجد في حالة توازن بين الحالة النشطة وغير النشطة. يؤدي ارتباط LH (أو CG) بالمستقبل إلى تحويل التوازن نحو الشكل النشط للمستقبل. لكي تستجيب الخلية لـ LH، يحتاج فقط نسبة صغيرة (≈1%) من مواقع المستقبل إلى التفعيل.
تشوهات LHCGR
وفي هذا الصدد، يمكن أن تؤدي طفرات فقدان الوظيفة في الإناث إلى العقم. في الأفراد 46، XY، يمكن أن يتسبب التفعيل الشديد في الخنوثة الذكرية الكاذبة، حيث قد لا تستجيب خلايا لايديغ الجنينية وبالتالي تتداخل مع الذكورة. يمكن أن يؤدي التفعيل الأقل شدة إلى التباعد الإحليلي أو القضيب الصغير.
التاريخ
كذلك، حصل ألفريد جيلمان ومارتن رودبل على جائزة نوبل في الطب لعام 1994 لاكتشاف نظام بروتين G.
جين LHCGR
كذلك، يوجد جين LHCGR في الكروموسوم 2 p21 في البشر، بالقرب من جين مستقبل الهرمون المنبه للجريب. يتكون من 70 كيلو قاعدة (مقابل 54 كيلو قاعدة لمستقبل الهرمون المنبه للجريب (FSH)). يشبه هذا الجين جين مستقبل الهرمون المنبه للجريب (FSH) ومستقبل TSH.
التنظيم التصاعدي
وفي هذا الصدد، يشير التنظيم التصاعدي إلى زيادة عدد مواقع المستقبلات على الغشاء. يعمل الإستروجين والهرمون المنبه للجريب (FSH) على زيادة مواقع LHCGR استعدادًا للإباضة. بعد الإباضة، يحتفظ المبيض المصفّر بمواقع LHCGR التي تسمح بالتفعيل في حالة حدوث انغراس. يتطلب التنظيم التصاعدي في الذكور نسخ الجينات لتصنيع مستقبلات LH داخل سيتوبلازم الخلية. بعض الأسباب التي تجعل مستقبلات LH المنظمة تصاعديًا لا يتم تنظيمها تصاعديًا تشمل: عدم وجود نسخ الجينات، عدم وجود تحويل RNA إلى بروتين، وعدم وجود شحنات موجهة إلى غشاء الخلية من جهاز جولجي.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟