معقد نازعة هيدروجين البيروفات
المحتويات
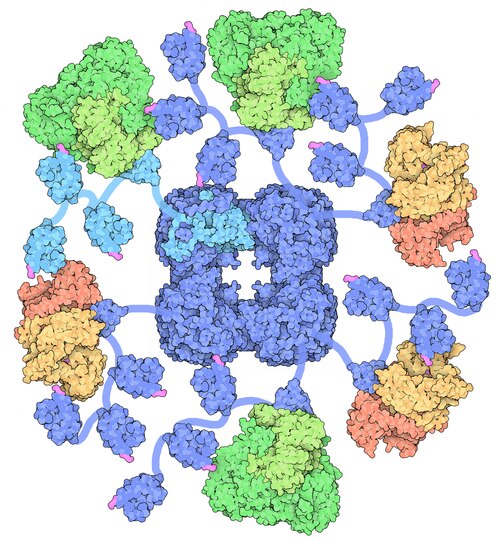
في البداية، معقد نازعة هيدروجين البيروفات ( PDC ) Pyruvate dehydrogenase complex عبارة عن معقد مكون من ثلاثة إنزيمات تحول البيروفات إلى أسيتيل كو-أ من خلال عملية تسمى نزع كربوكسيل البيروفات . يمكن لاحقًا استخدام أسيتيل كو-أ في دورة حمض الستريك للقيام بالتنفس الخلوي ، ويربط هذا المعقد مسار استقلاب تحلل السكر بدورة حمض الستريك . تُعرف عملية نزع الكربوكسيل من البيروفات كذلك باسم "تفاعل نزع هيدروجين البيروفات" لأنها تتضمن كذلك أكسدة البيروفات. وفيما يلي تفاصيل أوسع عن ذلك.
ومن ناحية أخرى، ينتمي هذا المعقد متعدد الإنزيمات من الناحية الهيكلية والوظيفية إلى مركبات هيدروجيناز أوكسوجلوتارات ومعقدات إنزيمات متعددة الإنزيمات من حمض أوكسو-أسيد المتفرعة .
البنية
ومن ناحية أخرى، البروتين المساعد الفريد لأغلب حقيقيات النوى هو بروتين الارتباط E3 في (E3BP)، والذي يعمل على ربط الوحدة الفرعية E3 بمعقد PDC. في حالة E3BP البشري، تتفاعل بقايا البرولين والليوسين الكارهة للماء في BP مع موقع التعرف على السطح الذي يتكون من ربط اثنين من مونومرات E3 المتطابقة.
إضافةً إلى ذلك، تتميز الوحدة الفرعية E3، والتي تسمى إنزيم ثنائي هيدروليبويل ديهيدروجيناز ، بأنها بروتين متجانس حيث تعمل بقيتي 2 سيستين، المنخرطة في رابطة ثاني كبريتيد، والعامل المساعد FAD في الموقع النشط على تسهيل عملها الرئيسي كمحفز مؤكسد. أحد الأمثلة على بنية E3، الموجودة في زائفة كريهة ، يتم تشكيلها بحيث تحتوي كل وحدة فرعية من المتجانس على نطاقين ربط مسؤولين عن ربط FAD وربط NAD، إلى جانب المجال المركزي ومجال الواجهة.
في هذا الإطار، الوحدة الفرعية E1، والتي تسمى الوحدة الفرعية لنازعة هيدروجين البيروفات ، لها هيكل يتكون من سلسلتين (سلسلة "ɑ" و"ꞵ"). يشكل أيون المغنيسيوم معقدا رباعي الإحداثيات ذو ثلاثة بقايا من الأحماض الأمينية القطبية (Asp، Asn، و Tyr) الموجودة على سلسلة ألفا، والعامل المساعد ثيامين ثنائي الفوسفات (TPP) الذي يشارك بشكل مباشر في نزع الكربوكسيل من البيروفات .
بروتين ربط ثنائي هيدروليبويل ديهيدروجينيز (E3BP)
ثنائي هيدروليبويل ترانسأسيتيلاز (E2)
ثنائي هيدروليبويل ديهيدروجيناز (E3)
نازعة هيدروجين البيروفات (E1)
من جانب آخر، تتكون الوحدة الفرعية E2، أو ثنائي هيدروليبويل أسيتيل ترانسفيراز، لكل من بدائيات النوى وحقيقيات النوى، بشكل عام من ثلاثة مجالات. يتكون مجال الطرف-N (مجال الليبول) من 1-3 مجموعات ليبول تحتوي كل منها على نحو 80 حمضًا أمينيًا . يعمل مجال ربط الوحدة الفرعية الطرفية (PSBD) كموقع ربط انتقائي للمجالات الأخرى للوحدتين الفرعيتين E1 وE3. ثم أخيرًا يحفز مجال الطرف-C (التحفيزي) نقل مجموعات الأسيتيل وتخليق الأسيتيل كو-أ.
الاختلافات الهيكلية بين الأنواع
وفي هذا السياق، PDC هو عبارة عن معقد كبير يتكون من نسخ متعددة من 3 أو 4 وحدات فرعية حسب النوع.
التاريخ التطوري
في هذا الإطار، وقد وجد أن إنزيم هيدروجيناز البيروفات الموجود في الميتوكوندريا في الخلايا حقيقية النواة يشبه إلى حد كبير إنزيم في العصوية الدهنية أليفة الحرارة ، وهو نوع من البكتيريا إيجابية الجرام . على الرغم من أوجه التشابه بين مركب هيدروجيناز البيروفات والبكتيريا إيجابية الجرام، إلا أن هناك القليل من التشابه مع البكتيريا سالبة الجرام . تشير أوجه التشابه في الهياكل الرباعية بين هيدروجيناز البيروفات والإنزيمات في البكتيريا إيجابية الجرام إلى تاريخ تطوري مشترك يختلف عن التاريخ التطوري للإنزيمات المقابلة الموجودة في البكتيريا سالبة الجرام. من خلال حدث تكافلي داخلي، يشير هيدروجيناز البيروفات الموجود في الميتوكوندريا حقيقية النواة إلى روابط سلفية تعود إلى البكتيريا إيجابية الجرام. تشترك معقدات هيدروجيناز البيروفات في الكثير من أوجه التشابه مع هيدروجيناز 2-أوكسو أسيد المتفرع (BCOADH)، خاصة في خصوصية الركيزة لأحماض ألفا كيتو. على وجه التحديد، يحفز BCOADH تحلل الأحماض الأمينية، وكانت هذه الإنزيمات سائدة خلال فترات ما قبل التاريخ على أرض ما قبل التاريخ التي تهيمن عليها بيئات الأحماض الأمينية الغنية. تطورت الوحدة الفرعية E2 من هيدروجيناز البيروفات من جين E2 الموجود في BCOADH بينما يحتوي كلا الإنزيمين على وحدات فرعية متطابقة من E3 بسبب وجود جين E3 واحد فقط. نظرًا لأن الوحدات الفرعية E1 لها خصوصية مميزة لركائز معينة، فإن الوحدات الفرعية E1 من نازعة هيدروجين البيروفات وBCOADH تختلف ولكنها تشترك في أوجه التشابه الجيني. احتفظت البكتيريا إيجابية الجرام والبكتيريا الزرقاء التي أدت لاحقًا إلى ظهور الميتوكوندريا والبلاستيدات الخضراء الموجودة في خلايا حقيقيات النواة بوحدات E1 الفرعية المرتبطة وراثيًا بتلك الموجودة في إنزيمات BCOADH.
, bovine kidney pyruvate dehydrogenase complex
علاوةً على ذلك، , human full-length and truncated E2 (tE2) cores of PDC, expressed in E. coli
البكتيريا سالبة الجرام
وفي هذا السياق، في البكتيريا سالبة الجرام ، مثلًا تتكون الإشريكية القولونية ،يتكون PDC من قلب مكعب مركزي يتكون من 24 جزيء من ثنائي هيدروليبويل ترانساسيتيلاز (E2). يرتبط ما يصل إلى 24 نسخة من نازعة هيدروجين البيروفات (E1) و12 جزيء من هيدروجيناز ثنائي هيدروليبويل (E3) مرتبطا بالجزء الخارجي من قلب E2.
الآلية
نازعة هيدروجين البيروفات (E1)
كذلك، لا يزال ثنائي هيدروليبوات مرتبطًا ببقية ليسين في المعقد، ثم يهاجر إلى الموقع النشط ثنائي هيدروليبويل ديهيدروجيناز (E3)، حيث يخضع لأكسدة بوساطة الفلافين ، وهي عملية مطابقة في الكيمياء مع إيزوميراز ثاني كبريتيد . أولاً، يقوم FAD بأكسدة ثنائي هيدروليبوات ليعود إلى حالة مستقرة ، ومنتجًا FADH2 . لاحقًا، يقوم العامل المساعد +NAD بأكسدة FADH2 وإعادته إلى حالته المستقرة FAD، مما ينتج عنه NADH وH.
ومن ناحية أخرى، في البداية، يرتبط البيروفات وبيروفوسفات الثيامين (TPP أو فيتامين ب1 ) بوحدات فرعية من نازعة هيدروجين البيروفات . حلقة الثيازوليوم من TPP تكون في شكل زويترأيوني ، ويقوم كربون C2 الأنيوني بهجوم على محب للنواة على كربونيل C2 (كيتون) للبيروفات. يخضع الهيميثيوأسيتال الناتج لعملية نزع الكربوكسيل لإنتاج مكافئ أنيون الأسيل (انظر كيمياء السيانهيدرين أو كيمياء الألدهيد-ديثيان، وكذلك تكثيف البنزوين ). يهاجم هذا الأنيون S1 الذي من نوع الليبوات المؤكسدة المرتبطة ببقية لايسين . في آلية فتح حلقة تشبه SN2 يتم إزاحة S2 كشاردة كبريتيد أو سلفهيدريل. يؤدي الانهيار اللاحق لرباعي السطوح الهيميثيوسيتال إلى إخراج الثيازول، مما يؤدي إلى إطلاق العامل المساعد TPP وتوليد ثيوأسيتات على S1 من الليبوات. تعد العملية المحفزة بـ E1 أنها هي الخطوة التي تحد من معدل تكوين معقد هيدروجيناز البيروفات PDCc بأكمله .
ثنائي هيدروليبويل ترانسأسيتيلاز (E2)
إضافةً إلى ذلك، عند هذه النقطة، يتم نقل وظيفة الليبوات-ثيويستر إلى الموقع النشط لثنائي هيدروليبويل ترانسأسيتيلاز (E2)، حيث يقوم تفاعل التحويل الناقل بنقل الأسيتيل من "الذراع المتأرجح" لـ ليبويل إلى ثيول الإنزيم المساعد-أ . يؤدي هذا إلى إنتاج أسيتيل مرافق الإنزيم-أ ، الذي يتحرر من معقد الإنزيمات ويدخل فيما بعد إلى دورة حمض الستريك . يمكن أن يُعرف E2 كذلك باسم إنزيم ليبوميد ريدوكتيز-ترانسأسيتيلاز.
ثنائي هيدروليبويل ديهيدروجيناز (E3)
البكتيريا إيجابية الجرام وحقيقيات النوى
من جهة ثانية، تحتوي حقيقيات النوى كذلك على 12 نسخة من بروتين أساسي إضافي، بروتين ربط E3 في (E3BP) الذي يربط وحدات E3 الفرعية بنواة E2. الموقع الدقيق لـ E3BP ليس واضحًا تمامًا. أثبت الفحص بالمجهري الإلكتروني المبرد أن E3BP يرتبط بكل وجه من الوجوه العشرين في الخميرة. ومع ذلك، فقد اقترح أنه يحل محل عدد مكافئ من جزيئات E2 في قلب PDC البقري.
إضافةً إلى ذلك، في المقابل، في البكتيريا إيجابية الجرام (مثلًا عصوية دهنية محبة الحرارة ) وحقيقيات النوى يحتوي قلب PDC المركزي على 60 جزيء E2 مرتبة في شكل بلوري عشروني الوجوه. تنسق الوحدة الفرعية "المركزية" E2 هذه مع 30 وحدة فرعية من E1 و12 نسخة من E3.
وفي هذا الصدد، يمكن أن يرتبط ما يصل إلى 60 جزيء E1 أو E3 بنواة E2 من البكتيريا إيجابية الجرام - ويكون الارتباط حصريًا بشكل متبادل. في حقيقيات النوى، يرتبط E1 على وجه التحديد بـ E2، بينما يرتبط E3 بـ E3BP. يُعتقد أن هناك ما يصل إلى 30 إنزيم E1 و6 إنزيمات E3، على الرغم من أن العدد الدقيق للجزيئات يمكن أن يختلف في الجسم الحي وغالبًا ما يعكس المتطلبات الأيضية للأنسجة المعنية.
أهمية سريرية
- أنظر كذلك
- نقص هيدروجيناز البيروفات
- المراجع
من جهة ثانية، في حين أن نقص هيدروجيناز البيروفات نادر، إلا أن هناك مجموعة متنوعة من الجينات المختلفة عندما تكون متحورة أو غير وظيفية والتي يمكن أن تسبب هذا النقص. أولاً، تحتوي الوحدة الفرعية E1 من هيدروجيناز البيروفات على أربع وحدات فرعية مختلفة: وحدتان فرعيتان من ألفا تم تعيينهما على أنهما E1-alpha ووحدتان فرعيتان من بيتا تم تعيينهما على أنهما E1-beta. جين PDHA1 الموجود في الوحدات الفرعية E1-alpha، عندما يتحور، يسبب 80% من حالات نقص هيدروجيناز البيروفات لأن هذه الطفرة تختصر بروتين E1-alpha. يؤدي انخفاض E1 ألفا الوظيفي إلى منع هيدروجيناز البيروفات من الارتباط بشكل كافٍ بالبيروفات، مما يقلل من نشاط المجمع ككل. عندما يتحور جين PDHB الموجود في الوحدة الفرعية بيتا E1 للمجمع، يؤدي ذلك كذلك إلى نقص هيدروجيناز البيروفات. وبالمثل، تم العثور على الطفرات في وحدات فرعية أخرى من المجمع، مثل جين DLAT الموجود في الوحدة الفرعية E2، وجين PDHX الموجود في الوحدة الفرعية E3، إلى جانب طفرة في جين فوسفاتاز نازعة هيدروجين البيروفات، المعروف باسم PDP1، جميعها تم تتبعها. يعود ذلك إلى نقص هيدروجيناز البيروفات، في حين أن مساهمتها المحددة في الحالة المرضية غير معروفة.
من جانب آخر، يمكن أن ينجم نقص هيدروجيناز البيروفات (PCDC) عن طفرات في أي من الإنزيمات أو العوامل المساعدة . اكتشافه السريري الأساسي هو الحمض اللبني . مثل هذه الطفرات في PCDC، التي تؤدي إلى قصور لاحق في إنتاج NAD وFAD، تعيق عمليات الفسفرة التأكسدية التي تعتبر أساسية في التنفس الهوائي. وبالتالي يتم اختزال أسيتيل كو-أ عبر الآليات اللاهوائية إلى جزيئات أخرى مثل اللاكتات، مما يؤدي إلى زيادة اللاكتات في الجسم والأمراض العصبية المرتبطة بها.
التفاعل
التفاعل المحفز بواسطة مركب نازعة هيدروجين البيروفات هو:
التنظيم
ومن ناحية أخرى، في حقيقيات النوى يتم تنظيم PDC بواسطة إنزيم بيروفات ديهيدروجينيز كيناز (PDK) وفوسفاتاز ديهيدروجينيز البيروفات (PDP)، مما يؤدي إلى تعطيله أو تنشيطه على التوالي.
وفي السياق ذاته، تلعب أيونات الكالسيوم دورًا في تنظيم PDC في الأنسجة العضلية، لأنها تنشط PDP، مما يحفز تحلل السكر عند إطلاقه في العصارة الخلوية - أثناء تقلص العضلات . بعض منتجات هذه النسخ تطلق الهيدروجين H2 في العضلات. هذا يمكن أن يسبب اضمحلال أيونات الكالسيوم مع مرور الوقت.
من جانب آخر، تعمل منتجات التفاعل كمثبطات تفارغية للـ PDC، لأنها تنشط PDK. الركائز بدورها تمنع PDK، وتعيد تنشيط PDC.
ومن جهة أخرى، يتم تثبيط نازعة هيدروجين البيروفات عند زيادة واحدة أو أكثر من النسب الثلاثة التالية: ATP / ADP ، و NADH /+NAD و acetyl-CoA /CoA .
وعلى صعيد آخر، أثناء المجاعة ، تزداد كمية PDK في أغلب الأنسجة، بما في ذلك العضلات الهيكلية ، عن طريق زيادة النسخ الجيني . في ظل نفس الظروف، ينخفض مقدار PDP. يؤدي تثبيط PDC الناتج إلى منع العضلات والأنسجة الأخرى من استهلاك الجلوكوز وسلائف تكوين السكر . ويتحول التمثيل الغذائي (الأيض) نحو استخدام الدهون ، في حين يتم تقليل انهيار بروتين العضلات لتزويد سلائف تكوين الجلوكوز، ويتم توفير الجلوكوز المتاح لاستخدامه من قبل الدماغ والكليتين. لأن هذين العضوين يحتاجان إلى الجلوكوز بينما تستعين باقي أعضاء الجسم بالكيتون.
وعلى صعيد آخر، يفسفر PDK ثلاثة بقايا سيرين محددة على E1 ذات ارتباطات مختلفة. تتم فسفرة أي واحد منهم (باستخدام ATP ) يجعل E1 (وبالتالي المعقد بأكمله) غير نشط.
يؤدي نزع الفسفرة من E1 بواسطة PDP إلى إعادة نشاط المعقد.
توطين نزع الكربوكسيل البيروفات
وعلى صعيد آخر، عند الدخول إلى الميتوكوندريا، يتم نزع كربوكسيل البيروفات، مما ينتج أسيتيل مرافق الإنزيم-أ. هذا التفاعل الذي لا رجعة فيه يحبس الأسيتيل مرافق الإنزيم-أ داخل الميتوكوندريا (لا يمكن نقل الأسيتيل كو-أ إلا خارج مصفوفة الميتوكوندريا في ظل ظروف عالية من أوكسالوسيتات عبر مكوك السيترات، وهو وسيط TCA يكون متناثرًا في العادة). ثاني أكسيد الكربون الناتج عن هذا التفاعل يكون قليل وغير قطبي، ويمكن أن ينتشر خارج الميتوكوندريا وبالتالي خارج الخلية.
وفي السياق ذاته، في خلايا حقيقيات النواة ، يحدث نزع كربوكسيل البيروفات داخل مصفوفة الميتوكوندريا (المتركس) ، بعد نقل الركيزة، وهي البيروفات، من العصارة الخلوية . يتم نقل البيروفات إلى الميتوكوندريا عبر بروتين نقل البيروفات المترجم. ينقل البيروفات المترجم البيروفات بطريقة متناغمة مع بروتون (عبر الغشاء الداخلي للميتوكوندريا)، والذي يمكن اعتباره شكلاً من أشكال النقل النشط الثانوي، ولكن قد تكون هناك حاجة إلى مزيد من التأكيد/والدعم لاستخدام واصف "النقل النشط الثانوي" هنا (ملاحظة: يبدو أن طريقة نقل البيروفات عبر ناقل البيروفات مقترنة بتدرج البروتونات عبر الغشاء الداخلي للمتقدرة - بحسب ـ S. Papa et al.، 1971 - ويبدو أنها مطابقة للنقل النشط الثانوي في التعريف).
علاوةً على ذلك، تقول مصادر بحثية بديلة "يبدو أن نقل البيروفات عبر الغشاء الخارجي للميتوكوندريا يتم بسهولة عبر قنوات كبيرة غير انتقائية مثل قنوات الأنيون المعتمدة على الجهد والتي تتيح الانتشار السلبي" ويتم النقل عبر الغشاء الداخلي للميتوكوندريا بواسطة حامل البيروفات الميتوكوندريا 1 ( MPC1) وحامل البيروفات الميتوكوندريا 2 (MPC2).
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟