مكوك مالات-أسبارتات
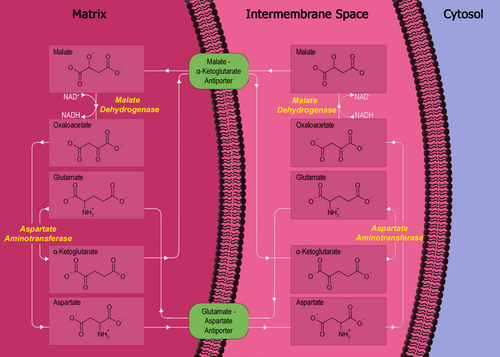
تعريفًا بالموضوع، مكوك المالات-أسبارتات ( يسمى أحيانا مكوك المالات) هو نظام كيموحيوي لنقل الإلكترونات الناتجة من تحلل الجلوكوز عبر غشاء الميتوكندريون الداخلي شبه المُنفِذ لأجل الفسفرة التأكسدية في سلسلة نقل الإلكترونات بحقيقيات النوى. تدخل هذه الإلكترونات بمعونة المختزلات لغشاء الميتوكندريا الداخلي وتصل لسلسلة نقل الإلكترونات لتوليد ATP. يُعد نظام المكوك ضروريًا لأن الغشاء الداخلي للميتوكوندريا غير مُنفذ للـ NADH ، وهو المكافئ الاختزالي الرئيسي لسلسلة نقل الإلكترونات. لذا يحمل المالات مكافئات الاختزال عبر الغشاء. وفيما يلي تفاصيل أوسع عن ذلك.
الآلية
ومن جهة أخرى، يعد التأثير الصافي لمكوك المالات-أسبارتات أكسدةً واختزالًا بحتًا: يتأكسد NADH في السيتوزول إلى NAD + ، ويختزل NAD + في المصفوفة إلى NADH. يمكن لاحقًا اختزال NAD + في السيتوزول مرة أخرى بجولة أخرى من التحلل السكري، ويُستعمل NADH في الحشوة لنقل الإلكترونات إلى سلسلة نقل الإلكترونات لتكوين ATP.
وفي هذا الصدد، بما أن مكوك المالات-أسبارتات يُجدد NADH داخل حشوة الميتوكوندريا، فبمقدوره زيادة الATPs المُنتجة في عملية التحلل السكري (3/NADH)، مما يؤدي إلى زيادة صافية قدرها 38 جزيء ATP لكل جزيء جلوكوز مُستقلب. قارن هذا بناقل الجلسرين 3-فوسفات ، الذي يختزل FAD + لإنتاج FADH 2 ، ويتبرع بالإلكترونات إلى مجموعة الكينون في سلسلة نقل الإلكترون ، وهو قادر على توليد 2 ATP فقط لكل NADH مُنتج في عملية التحلل السكري (مما يؤدي في النهاية إلى زيادة صافية قدرها 36 ATP لكل جلوكوز مُستقلب). (هذه الأعداد من ATP هي ما قبل التناضح الكيميائي، ويجب تقليلها في ضوء عمل ميتشل والكثير من الآخرين . ينتج كل NADH 2.5 وحدة ATP، وينتج كل FADH 2 1.5 وحدة ATP فقط. لذا، يجب تقليل عدد وحدات ATP لكل جلوكوز من 38 إلى 32، ومن 36 إلى 30. كما أن + H الإضافي المطلوب لإدخال الفوسفات غير العضوي أثناء الفسفرة التأكسدية يُساهم في الحصول على الرقمين 30 و32.
وفي هذا الصدد، الإنزيم الرئيسي في مكوك المالات-أسبارتات هو مالات ديهيدروجينيز. يتواجد المالات ديهيدروجينيز في نظام المكوك بنوعين: مالات ديهيدروجينيز الميتوكوندريون ومالات ديهيدروجينيز السيتوزول. الفرق بين الاثنين يكمن بموقع وبنية كل منهما، وتحفيزهما التفاعلات باتجاهين متعاكسين خلال العملية.
كذلك، بمجرد تكوين المالات، يَستورد التبادل المتعاكس الأول (مالات -ألفا كيتوغلوتارات ) المالات من السيتوزول إلى حشوة الميتوكوندريون ويصدر كذلك ألفا كيتوغلوتارات من الحشوة إلى السيتوزول في وقت واحد. بعد وصول المالات إلى الحشوة، يُحَوَّل بوساطة مالات-ديهيدروجينيز-الميتوكندريا إلى أوكسالوأسيتات، وخلال ذلك يُختَزل NAD + بإلكترونين ليصبح NADH. ثم يتحول أوكسالوأسيتات إلى أسبارتات (إذ لا يمكن نقل أوكسالوأسيتات إلى السيتوزول) بوساطة أسبارتات أمينوترانسفيراز الميتوكوندريا. ونظرًا لأن الأسبارتات حمض أميني، فيجب إضافة جذر أميني إلى أوكسالوأسيتات. يتوفر هذا بوساطة الغلوتامات، والذي يتحول في العملية لألفا كيتو غلوتارات بوساطة نفس الإنزيم.
من جانب آخر، أولاً، في السيتوزول، يُحفّز مالات ديهيدروجينيز تفاعل أوكسالوأسيتات وNADH لإنتاج مالات وNAD + . في هذه العملية، يخرج إلكترونان من NADH، (إلى جانب H +) ويرتبطان بأوكسالوأسيتات ليصبح مالات.
في هذا الإطار، التبادل المتعاكس الثاني (AGC1 أو AGC2) يستورد الغلوتامات من السيتوزول إلى الحشوة، ويُصدر الأسبارتات من الحشوة إلى السيتوزول. بعد دخوله السيتوزول، يُحوّل الأسبارتات بوساطة إنزيم ناقل أمين الأسبارتات السيتوزولي إلى أوكسالوأسيتات.
تنظيم
إضافةً إلى ذلك، تُنَظم أنشطة مكوك المالات-أسبارتات عن طريق ميثلة الأرجينين لمالات ديهيدروجينيز 1 (MDH1). يقوم بروتين أرجينين N-ميثيل ترانسفيراز CARM1 بميثلة وتثبيط MDH1 عن طريق تعطيل ثنائيته، مما يثبط نقل المالات-الأسبارتات ويمنع تنفس الميتوكوندريا في خلايا سرطان البنكرياس .
- خريطة المسار التفاعلية
- انظر كذلك
- مكوك فوسفات الجلسرين
- مكوك الميتوكوندريا
العناصر
يتكون المكوك من أربعة أجزاء بروتينية:
من جانب آخر، مالات ديهيدروجينيز في حشوة الميتوكوندريا والفراغ بين الغشائين(الداخلي والخارجي).
- الأسبارتات أمينوترانسفيراز في حشوة الميتوكوندريا والفراغ بين الغشائين.
- ناقل مضاد لمالات-ألفا-كيتوغلوتارات في الغشاء الداخلي.
- ناقل مضاد للغلوتامات-الأسبارتات في الغشاء الداخلي.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟