موت الخلايا المستمنع
المحتويات
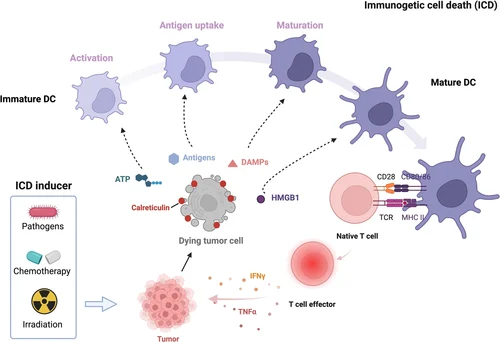
في البداية، موت الخلايا المسْتَمْنِع أي نوعٍ من موت الخلايا يثير استجابةً مناعيَّة. قد يؤدي كلٌ من موت الخلايا العرضي وموت الخلايا المنظم إلى استجابةٍ مناعية. يتناقض موت الخلايا المستمنع مع أشكال موت الخلايا (الاستماتة، الالتهام الذاتي، وغيرها) التي لا تثير أي استجابةٍ أو حتى تتوسط تحمل المناعة. كما يُستعمل اسم موت الخلايا المستمنع كذلك لنوعٍ محدد من موت الخلايا المنظم الذي يبدأ استجابة مناعية بعد إجهاد الشبكة الإندوبلازمية. وفيما يلي تفاصيل أوسع عن ذلك.
الاستماتة الحديدية
من جهة ثانية، الاستماتة الحديدية هي كذلك شكل مُنظَّم لموت الخلايا. تبدأ العملية استجابةً للإجهاد التأكسدي وفوق أكسدة الليبيد وتعتمد على توافر الحديد. يُعتبر الشكل النخرِي نموذجيًا لخلايا الاستماتة الحديدية. يُحفز فوق أكسدة الليبيد بشكل أساسي بواسطة الأكسيجيناز الشحمية، ولكن كذلك بواسطة السيكلوأكسجيناز. يمكن تثبيط فوق أكسدة الليبيد في الخلية بواسطة غلوتاثيون بيروكسيداز 4 (GPX4)، مما يجعل توازن هذه الإنزيمات مُنظِّمًا مركزيًا للاستماتة الحديدية. يُثبِّط استخلاب الحديد كذلك الاستماتة الحديدية، ربما عن طريق استنزاف الحديد من الأكسيجيناز الشحمية. يُؤدي انسكاب المكونات السيتوبلازمية أثناء موت الخلايا إلى توسط مناعة هذه العملية.
الأنواع
علاوةً على ذلك، تُقسَّم أنواع موت الخلايا المُحفِّزة للمناعة بحسب الآليات الجزيئية التي تؤدي إلى حدث الموت وأثناءه وبعده. تُحدد القدرة المناعية لموت خلايا مُعيَّن بواسطة المُستضدات والمواد المُساعدة التي تُطلقها أثناء العملية.
الموت الخلوي العرضي
ومن ناحية أخرى، الموت الخلوي العرضي هو نتيجة تلف فيزيائي أو كيميائي أو ميكانيكي للخلية، يتجاوز قدرتها على الإصلاح. إنها عملية لا يمكن السيطرة عليها، تؤدي إلى فقدان سلامة الغشاء. والنتيجة هي انسكاب المكونات داخل الخلايا، التي قد تتوسط استجابة مناعية.
النخر المدفوع بمسام انتقال نفاذية الميتوكوندريا
من جهة ثانية، يُعد موت الخلايا المدفوع بمسام انتقال نفاذية الميتوكوندريا (MPT) كذلك شكلًا من أشكال موت الخلايا المنظم ويظهر شكلًا نخروسيًا. الإجهاد التأكسدي أو اختلال توازن الكالسيوم من الأسباب المهمة للنخر المدفوع بانتقال نفاذية الميتوكوندريا. الحدث الرئيسي في هذه العملية هو فقدان عدم نفاذية الغشاء الداخلي للميتوكوندريا (IMM). الآليات الدقيقة التي تؤدي إلى تكوين مُركّبات مسام انتقال النفاذية، التي تتجمّع بين الغشاءين الداخلي والخارجي للميتوكوندريا، لا تزال غير معروفة. إن إنزيم إيزوميراز البيبتيديل بروليل اف (CYPD) هو البروتين الوحيد المعروف والمطلوب للنخر المدفوع بانتقال نفاذية الميتوكوندريا. يتبع فقدان عدم نفاذية الغشاء الداخلي للميتوكوندريا تبديد جهد الغشاء وتفكك كلا الغشاءين الميتوكوندريين.
الهوامش
ومن ناحية أخرى، «»: موت الخلايا المستمنع أو موت الخلايا مولد المناعة أو موت الخلايا المولد للمناعة أو موت الخلايا الممنع .
النخر المبرمج
من جانب آخر، نوع آخر من موت الخلايا المنظم الذي يحفز استجابة مناعية هو النخر المبرمج. يتميز النخر المبرمج بمورفولوجيا نخرية. يُحفز هذا النوع من موت الخلايا عن طريق الصدمات الدقيقة خارج الخلية وداخلها التي تكتشفها مستقبلات الموت أو التلف. مثلًا، يمكن أن تبدأ مستقبلات FAS (مستضد موت الخلية المبرمج 1) وTNFR1 (مستقبل عامل نخر الورم 1) ومستقبلات التعرف على الأنماط النخر المبرمج. تتقارب محفزات التنشيط هذه على كيناز البروتين سيرين/ثريونين المتفاعل مع المستقبل 3 (RIPK3) والكيناز الكاذب الشبيه بمجال كيناز السلالة المختلطة (MLKL). يؤدي التنشيط المتسلسل لهذه البروتينات إلى نفاذية الغشاء.
الموت الخلوي المستمنع
في هذا الإطار، بدأ مفهوم (موت الخلايا المناعية) في التبلور خلال السنوات القليلة الماضية، [عندما؟] وجدت بعض المحفزات المذكورة أعلاه، والتي لديها القدرة على الاستراتيجيات التطعيم المضادة للورم. كان استخدام محرضات (موت الخلايا المناعية) وحدها أو بالإشتراك مع العلاجات المضادة للسرطان الأخرى (العلاجات المستهدفة، والعلاجات المناعية) فعالة في نماذج الفئران المصابة بالسرطان ويُختبر في المختبر.
وعلى صعيد آخر، على سطح الخلية لديهم تأثير مناعي، بناء على تفاعلهم مع عدد من المستقبلات السطحية لخلية مستضد مثل (CD91 وCD40) وأيضا تسهيل تقديم المستضدات المستمدة من الخلايا السرطانية على جزيء (MHC) من الدرجة الأولى، مما يؤدي إلى استجابة الخلية الهامة الأخرى، مميزة لـ (موت الخلايا المناعية) هي الأمفوترين المخفية مؤشرا متلازما متأخرا ويبدو أن إطلاقه إلى خارج الخلية مطلوب للإفراز الأمثل وعرض مستضدات الورم إلى الخلايا التغصنية. وهو يرتبط بالعديد من مستقبلات التعرف على الأنماط (PRRs) مثل المستقبل الشبيه بالرُتل، والتي يُعبر عنها على الخلايا (APCs). عُثر على أحدث الأنماط الجزيئية المرتبطة بالتلف عليه خلال موت الخلايا المناعية هو أدينوسين ثلاثي الفوسفات (ATP)، الذي يعمل كإشارة «العثور علي» للوحيدات عندما يفرز ويدفع جاذبيته إلى موقع الاستموات.
إضافةً إلى ذلك، يتميز الموت الخلوي المناعي بإفراز أنماط جزيئية مرتبطة بالضرر (DAMPs). هناك ثلاثة أنماط جزيئية مرتبطة بالضرر الأكثر أهمية التي تتعرض لسطح الخلية أثناء الموت الخلوي المناعي. كالريتيكولين، أحد جزيئات المرتبطة بالضرر الموجودة عادةً في تجويف الشبكة الإندوبلازمية، ينتقل بعد تحفيز الموت المناعي إلى سطح الخلية المُحتضرة. هناك يعمل كإشارة "كلني" للخلايا البلعمية الاحترافية. من الأنماط الجزيئية المرتبطة بالضرر الهامة الأخرى المعروضة على السطح بروتينات الصدمة الحرارية (HSPs)، وتحديدًا HSP70 وHSP90، التي تنتقل كذلك في ظروف الإجهاد إلى الغشاء البلازمي.
وفي هذا السياق، يُعتبر ICD أو الاستماتة المناعية شكلًا من أشكال موت الخلايا ينتج عنه تنشيط مُنظَّم للاستجابة المناعية. يتميز هذا الموت الخلوي بمظهر استماتة، مع الحفاظ على سلامة الغشاء. يُعتبر إجهاد الشبكة الإندوبلازمية بشكل عام عاملًا مُسببًا للموت الخلوي المناعي، مع إنتاج كميات كبيرة من أنواع الأكسجين التفاعلية. عُرفت مجموعتين من مُحفِّزات الموت الخلوي المناعي. تتسبب مُحفِّزات النوع الأول في إجهاد الشبكة الإندوبلازمية فقط كضرر جانبي، حيث تستهدف بشكل أساسي الحمض النووي أو جهاز صيانة الكروماتين أو مكونات الغشاء. تستهدف مُحفِّزات النوع الثاني الشبكة الإندوبلازمية على وجه التحديد. يُحفز موت الخلوي المناعي بواسطة بعض العوامل المثبطة للخلايا مثل الأنثراسايكلينات، أوكساليبلاتين وبورتيزوميب، أو العلاج الإشعاعي والعلاج الضوئي الديناميكي. يمكن إدراج بعض الفيروسات من بين الأسباب البيولوجية للموت الخلوي المناعي. تمامًا كما يُحفِّز الموت المناعي للخلايا المُصابة استجابة مناعية للعامل المُعدي، يمكن أن يُحفِّز الموت المناعي للخلايا السرطانية استجابة مناعية فعالة مضادة للأورام من خلال تنشيط الخلايا التغصنية (DCs) والتنشيط اللاحق لاستجابة الخلايا التائية المُحدَّدة. يُستعمل هذا التأثير في العلاج المضاد للأورام.
البارثاناتوس
في هذا الإطار، ارتبط هذا النوع من موت الخلايا ببعض الأمراض، مثل بعض الأمراض القلبية الوعائية والأوعية الدموية والكلى، والسكري، ونقص تروية الدماغ، والتحلل العصبي.
من جهة ثانية، البارثاناتوس هو كذلك شكل منظم من أشكال موت الخلايا ذو شكل نخروسي. يُحفز في ظل مجموعة متنوعة من الظروف المجهدة، ولكن الأهم من ذلك كنتيجة لتلف الحمض النووي المؤلكل طويل الأمد، والإجهاد التأكسدي، ونقص الأكسجة، ونقص السكر في الدم، والبيئة الالتهابية. يبدأ موت الخلية هذا بمكونات استجابة تلف الحمض النووي، وعلى رأسها بوليميراز [ايه دي بي-ريبوز] 1 (PARP1). يؤدي فرط نشاط البوليميراز إلى استنزاف أدينوسين ثلاثي الفوسفات، وانهيار الأكسدة والاختزال والطاقة الحيوية، إلى جانب تراكم بوليمرات بولي(ايه دي بي-ريبوز) والبروتينات المُعدّلة ببولي(ايه دي بي-ريبوز)، والتي ترتبط بعامل تحفيز موت الخلايا المرتبط بالميتوكوندريا 1 (AIF). النتيجة هي تبديد جهد الغشاء ونفاذية الغشاء الخارجي للميتوكوندريا. يُعد تكثف الكروماتين وتجزئته بواسطة AIF من السمات المميزة للبارثاناتوس. اقتُرحَ وجود ترابط بين عملية البارثاناتوس وبعض أفراد جهاز النخر، حيث يُحفّز مستقبلات تفاعلية مع السيرين/ثريونين-بروتين كيناز 3 نشاط بوليميراز [ايه دي بي-ريبوز] 1.
الموت الخلوي الحُمِّي المبرمج
ومن ناحية أخرى، تشترك الاستماتة الخلوية الالتهابية في بعض الخصائص مع الاستماتة المبرمجة، وهي موت خلوي خامل مناعيًا. بشكل أساسي، تعتمد كلتا العمليتين على الكاسبيزات، على الرغم من أن كل عملية تستعمل كاسبيزات محددة. يحدث تكثيف وتفتيت الكروماتين أثناء الاستماتة الخلوية الالتهابية، لكن الآليات والنتائج تختلف عن تلك التي تحدث أثناء الاستماتة المبرمجة. على عكس الاستماتة المبرمجة، لا تُحفظ سلامة الغشاء في الاستماتة الخلوية الالتهابية، بينما تُحفظ سلامة غشاء الميتوكوندريا ولا يحدث إراقة للسيتوكروم سي.
وفي هذا الصدد، الموت الخلوي الحُمِّي المبرمج هو نوع متميز من موت الخلايا المنظم، يُظهر شكلًا نخروسيًا وانفجار محتويات الخلية. يحدث هذا النوع من موت الخلايا في أغلب الأحيان استجابةً للعدوى بمسببات الأمراض الميكروبية، مثل العدوى بالسالمونيلا أو فرنسيسيلة أو فيلقية مستروحة. قد تحفز العوامل المضيفة، مثل تلك التي تُنتج أثناء احتشاء عضلة القلب، الموت الخلوي الحُمِّي المبرمج. كذلك يُحفز وجود مستقلبات أو هياكل بكتيرية في العصارة الخلوية، تُسمى الأنماط الجزيئية المرتبطة بمسببات الأمراض (PAMPs)، استجابة الموت الخلوي الحُمِّي المبرمج. يؤدي اكتشاف هذه الأنماط الجزيئية المرتبطة بمسببات الأمراض بواسطة بعض أفراد عائلة مستقبلات شبيهة بنود (NLRs) أو غائب في الورم الميلانيني 2 (AIM2) أو البيرين (حمى البحر الأبيض المتوسط) إلى تجميع هيكل الالتهاب وتفعيل كاسباز 1.
ومن جهة أخرى، حتى الآن، مستقبلات التعرف على الأنماط السيتوبلازمية (PRRs) المعروفة بتحفيز تكوين الالتهاب هي كرايوبايرين (NLRP3) وNLRP1 وNLRC4 والورم الميلانيني 2 والبيرين. تحتوي هذه البروتينات على نطاقات ناتش المسؤولة عن تكوين القلة، ونطاقات CARD (مجالات تنشيط وتجنيد الكاسبيز)، وبعضها يحتوي كذلك على نطاقات بيرين (PYR) مماثلة. يرتبط كاسبيز 1، وهو البروتياز المنشط المركزي للاستماتة الخلوية الالتهابية، بالالتهاب عبر نطاقات CARD أو بروتين محول يحتوي على CARD/PYR يسمى البروتين الشبيه بالبقع المرتبط بالاستماتة (ASC). يُعد تنشيط كاسبيز 1 (CASP1) أمرًا أساسيًا للاستماتة الخلوية الالتهابية، وعند تنشيطه، يتوسط التنشيط البروتيني للكاسبيزات الأخرى. في البشر، الكاسبيزات الأخرى المتورطة هي كاسبيز 3 وكاسبيز 4 وكاسبيز 5، وفي الفئران كاسبيز 3 و كاسبيز 11. تُعد سلائف إنترلوكين 1 بيتا وإنترلوكين 18 من بين أهم ركائز كاسبيز 1، ويحفز إفراز نواتج الانقسام استجابة مناعية قوية للاستماتة الخلوية الالتهابية. يحدث إطلاق إنترلوكين 1 بيتا وإنترلوكين 18 قبل حدوث أي تغييرات شكلية في الخلية. تموت الخلية عن طريق إراقة محتوياتها، ما يتسبب في توزيع جزيئات مولدة للمناعة إضافية. من بين هذه الجزيئات، يُعد صندوق المجموعة عالية الحركة 1 (HMGB1) وبروتينات اس100 وإنترلوكين 1 الفا من عوامل الخطر المرتبطة بالتلف المهمة.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟