نسالة جزيئية
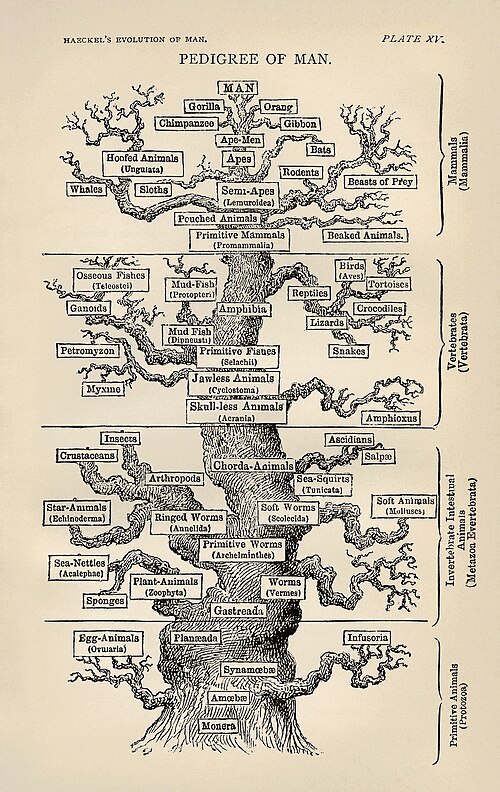
تعريفًا بالموضوع، علم الوراثة العرقي الجزيئي (بالإنجليزيّة: Molecular phylogenetics) هو فرع من علم شجرة تطور السلالات، يحلل الاختلافات الوراثيّة والجينيّة والجزيئيّة، خاصة في تسلسل الدنا، للحصول على المعلومات اللازمة عن العلاقات التطوريّة للكائنات الحيّة. وخلال هذه التحليلات، من الممكن أن نحدد العمليات التي تحقق بها التنوُّع بين الأنواع الحيّة. يمكن تمثيل ناتج التحليل الفيلوجينيّ الجزيئيّ بشجرة تطور السلالات. يُعتبر علم الوراثة العرقيّ الجزيئيّ أحد جوانب النظاميات الجزيئيّة، وهو مصطلح واسع يشمل استخدام البيانات الجزيئيّة في علم التصنيف والجغرافيا الحيويّة. وفيما يلي تفاصيل أوسع عن ذلك.
وفي هذا السياق، يرتبط التطور الجزيئيّ بعلم الوراثة العرقيّ الجزيئيّ. التطور الجزيئيّ هو عملية التغيُّرات الانتقائيّة (الطفرات) على المستوى الجزيئيّ (الجينات والبروتينات) خلال الفروع المختلفة من شجرة الحياة (التطور). يستدل علم الوراثة العرقيّ الجزيئيّ على العلاقات التطوريّة الناشئة بسبب التطور الجزيئيّ، وينتج تركيب شجرة تطور السلالات.
التحليل العرقيّ الجزيئيّ
كذلك، وصف بيفسنر تقنية أخرى لتحليل السلالات وستتلخص في الجمل التالية. يتكوَّن التحليل الفيلوجينيّ من خمس خطوات رئيسة. تتكوَّن الخطوة الأولى من الحصول على التسلسل، والخطوة التالية من إجراء عدة تراصفات تسلسليّة، وهو الأساس الجوهريّ لبناء شجرة تطور السلالات. تشمل الخطوة الثالثة نماذج مختلفة من الدنا وإحلالات الأحماض الأمينيّة. توجد الكثير من نماذج الإحلال. من الأمثلة القليلة على ذلك مسافة هامنغ، ونموذج المقياس الواحد لجوكس وكانتور، ونموذج المقياسين لكيمورا (انظر نماذج تطور الحمض النووي). تتكوَّن الخطوة الرابعة من نماذج متنوعة لبناء الشجرة، منها المبني على المسافة والمبني على السمات. توفِّر مسافة هامنغ المعياريّة ومعادلات جوكس-كانتور على درجة من التباعد واحتماليّة تغيُّر النيوكليوتيدة إلى أخرى، على الترتيب. تشتمل وسائل بناء الشجرة الحديثة على وسائل تجميع أزواج قاعديّة غير مرجحة باستخدام الوسط الحسابيّ وانضمام الجار، وهي وسائل مبنية على المسافة، التقتير الأقصى، وهو وسيلة مبنية على السمات، والاستدلال البايزي، وهو وسيلة مبنية على السمة/ النموذج.
من جهة ثانية، يوجد الكثير من الوسائل المتاحة لإجراء التحليل الوراثيّ العرقيّ. تشمل إحدى الوسائل بروتوكول شامل خطوة بخطوة لبناء شجرة تطور السلالات، بما يشمل سلسلة الدنا/ الحمض الأمينيّ، تراصف السلسلة المتعدد، النموذج-الاختبار (اختبار أكثر النماذج الإحلاليّة صلاحيّةً)، وإعادة بناء السلالة باستخدام الاحتماليّة القصوى والاستدلال البايزي، وذلك متوفر في بروتوكول ناتشر.
التقنيات والتطبيقات
ومن جهة أخرى، المقاربة الأكثر شيوعًا هي مقارنة التسلسلات المتناددة للجينات باستخدام التراصف التسلسليّ لتحديد التشابهات. تُعتبر شفرة الدنا الخيطية من التطبيقات الأخرى لعلم الوراثة العرقيّ الجزيئيّ، بينما يُعرَّف نوع الفرد باستخدام المقطوعات الصغيرة لدنا الميتوكوندريا أو دنا الكلوروبلاست. يمكن اعتبار مجال الوراثة البشريّة المحدود للغاية تطبيق آخر لهذه التقنيات، مثل استخدام الاختبارات الوراثيّة لتحديد نسب الطفل، إلى جانب نشوء فرع الطب الشرعيّ الذي يركّز على الدليل المعروف بالبصمة الوراثيّة.
إضافةً إلى ذلك، يحتوي كل كائن حي على حمض نوويّ ريبوزيّ منزوع الأكسجين وحمض نوويّ ريبوزيّ وبروتينات. في العموم، تحتوي الكائنات المرتبطة ببعضها على المزيد من التشابهات في التركيب الجزيئيّ لهذه المواد، بينما تُظهر جزيئات الكائنات البعيدة شكلًا من الاختلاف. من المتوقع أن تظهر التسلسلات المحفوظة، مثل دنا الميتوكوندريا، تراكمًا للطفرات بمرور الوقت، وبافتراض أن هناك معدًلا ثابتًا للطفرات، فإن ذلك يوفِّر ساعة جزيئيّة لتوقيت التباعد. يستعمل علم الوراثة العرقيّ الجزيئيّ تلك البيانات لبناء «شجرة علاقات» تُظهر تطورًا محتملًا للكائنات المختلفة. وباختراع سلسلة سانغر في 1977، صار من الممكن عزل وتعريف هذه التراكيب الجزيئيّة.
الخلفيّة النظريّة
ومن ناحية أخرى، أُطلق على المحاولات الأولى في النظاميات الجزيئيّة مصطلح التصنيف الكيميائيّ، واستعملت البروتينات والإنزيمات والكربوهيدرات وغيرها من الجزيئات التي فُصلت وسُميت باستخدام تقنيات مثل الكروماتوغرافيا. استُبدلت تلك التقنيات في الأزمنة الحديثة بتقنيات سلسلة الدنا، التي تنتج نفس التسلسلات للنيكليوتيدات أو القواعد في أشرطة الدنا أو الحمض النوويّ الريبوزيّ المستخرجة باستخدام التقنيات المختلفة. في العموم، تُعتبر تلك التقنيات ممتازة بالنسبة للدراسات التطوريّة، لأن آثار التطور تنعكس في تسلسل الجينات. في الوقت الحالي، تظل عملية وضع تسلسل الدنا الكامل للكائن عملية طويلة وباهظة. إلا أنه من الممكن تحديد تسلسل منطقة معينة على الكروموسوم. تتطلب تحليلات النظاميات النموذجيّة تحديد تسلسل نحو 1000 زوج قاعديّ. عند أي موضع في التسلسل، تُظهر القواعد الموجودة في أي مكان اختلافًا بين الكائنات. يُشار إلى التسلسل المحدد الذي وجد في كائن ما بمصطلح النمط الفردانيّ. ولأنه يوجد أربع أنواع من القواعد، و1000 زوج قاعديّ، يمكن أن نحصل على 41000 نمط فردانيّ مميز. أما بالنسبة للكائنات الموجودة في نوع معين أو مجموعة من نوع ذي صلة، وجِد تجريبيًّا أن هناك أقليّة من المواقع فقط تُظهر اختلافًا، وأغلب الاختلافات الموجودة مرتبطة ببعضها، وبالتالي فإن عدد الأنماط الفردانيّة المميزة قليل نسبيًّا.
في هذا الإطار، بمجرد تحديد التباعد بين كل أزواج العينات، يكون الناتج مصفوفة مثلثيّة من الاختلافات كشكل من التحليل العنقوديّ الإحصائيّ، ويُفحص الرسم الشجريّ الناتج لرؤية ما إذا كانت العينات تتجمع بصورة يمكن توقعها من الأفكار الحالية عن تصنيف المجموعة. يمكن وصف أي مجموعة من الأنماط الفردانيّة التي تشبه بعضها بعضًا أكثر من أي نمط فردانيّ آخر بمصطلح الفرع الحيويّ. تساعد التقنيات الإحصائيّة على توفير تقديرات موثوقة لمواقع الأنماط الفردانيّة خلال شجرة التطور.
في هذا الإطار، كانت تُستعمل إحدى المقاربات العتيقة والمُتجاوزة لتحديد التباعد بين النمط الوراثيّ للأفراد بتهجين الدنا. كانت الفائدة المدعاة لاستخدام التهجين بدلًا من تسلسل الجينات هو أنها مبنية على النمط الجينيّ الكامل، بدلًا من أجزاء معينة في الدنا. تتغلب التقنيات الحديثة لمقارنة تسلسلات الدنا على هذا الاعتراض باستخدام تسلسلات متعددة.
في هذا الإطار، في التحليل النظاميّ الجزيئيّ، تُحدد الأنماط الفردانيّة لمنطقة معينة من المادة الوراثيّة، وتُستعمل عينة من الأفراد المستهدفة في النوع أو الأصنوفات الأخرى. تُبنى الكثير من الدراسات الحالية على الأفراد. تُحدد الأنماط الفردانيّة للأفراد المرتبطة، ومن الأصنوفات المختلفة. تُحدد أخيرًا الأنماط الفردانيّة من الأعداد الأقل من الأفراد من أصنوفة مختلفة كذلك: يُشار إليها بمصطلح المجموعة الخارجيّة. تُقارن تسلسلات القواعد للأنماط الفردانيّة فيما بعد. وفي صورتها الأبسط، يُحسب الاختلاف بين نمطين فردانيّين بحساب عدد المواقع التي تحتوي على قواعد مختلفة: ويُشار إليها بعدد الإحلالات (يمكن أن يحدث نوع آخر من الاختلافات بين الأنماط الفردانيّة، مثلًا، إضافة جزء من الحمض النوويّ في نمط فردانيّ لا يوجد في الآخر). يُعبَّر عن الاختلافات بين الكائنات بمصطلح «نسبة التباعد» بقسمة عدد الإحلالات على عدد الأزواج القاعديّة المحللة: يكمن الأمل في أن تكون تلك القياسات مستقلة عن موقع وطول جزء الدنا الذي يُحدد تسلسله.
التاريخ
إضافةً إلى ذلك، وضعت الأطر النظريّة للنظاميات الجزيئيّة في ستينات القرن الماضي، بأعمال إيملي زوكركاندل وإيمانويل مارغولياش لينوس باولنغ ووالتر م. فيتش. ظهرت تطبيقات النظاميات الجزيئيّة على يد تشارليز ج. سيبلي (الطيور) وهيربرت ك. ديسوار (علم الأعشاب) وموريس غودمان (الرئيسات)، ثم تبعتهم أعمال آلان تشارليز ويلسون وروبرت ك. سيلاندر، وجون تشارليز أفيس (الذين درسوا المجموعات المتنوعة). بدأ العمل بالفصل الكهربيّ للبروتين في 1956. وفرت النتائج ملاحظات عن المفاهيم المنتشرة عن تصنيف الطيور بالرغم أنها لم تحسِّن التصنيف المورفولوجيّ، مثلًا، احتاجت تلك مفاهيم لبعض المراجعة.
أوجه القصور
ومن جهة أخرى، يوفِّر الاكتشاف الحديث عن نقل الجينات الأفقي بين الكائنات تعقيدًا جديدًا للنظاميات الجزيئيّة، مشيرًا إلى أن الجينات المختلفة خلال الكائن الواحد يمكن أن تحتوي على أعراق مختلفة.
من جانب آخر، علاوة على ذلك، إن السلالات الجزيئيّة تتأثر بالافتراضات والنماذج الموضوعة عنها. إنها تواجه مشاكل مثل انجذاب الفرع الطويل والتشبُّع ومشاكل عينة الأصنوفة: يعني ذلك أنه يمكن الحصول على نتائج مختلفة بصورة مثيرة للدهشة بتطبيق نماذج مختلفة على نفس قاعدة البيانات.
من جهة ثانية، تُعتبر النظاميات الجزيئيّة مقاربة فرعيّة حيويّة؛ فهي تفترض أن التصنيف يجب أن يتوافق مع الانحدار الفيلوجينيّ، وأن كل الأصناف الصالحة يجب أن تكون أحاديّة النمط الخلويّ. وهذا وجه من أوجه القصور عند محاولة تحديد الأشجار المثلى، والتي تشمل غالبًا تفكيك وإعادة تركيب أجزاء من شجرة تطور السلالات.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟