نشأة الريبوسوم
المحتويات
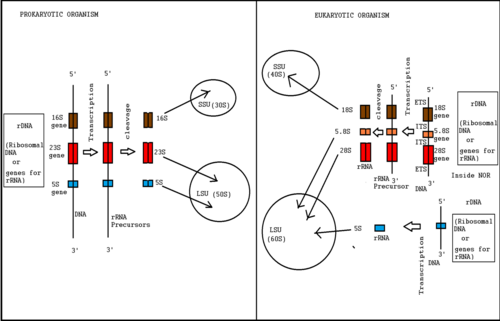
قبل الخوض في التفاصيل، نشأة الريبوسوم هي عملية تكوين الريبوسومات. في بدائيات النوى، تحدث هذه العملية في السيتوبلازم مع نسخ الكثير من أوبرا جينات الريبوسوم. في حقيقيات النوى، يحدث في كل من السيتوبلازم والنواة. إنه يتضمن الوظيفة المنسقة لأكثر من 200 بروتين في تخليق ومعالجة الرنا الريباسي الثلاثة بدائية النواة أو الأربعة حقيقية النواة، إلى جانب تجميع تلك الرنا الريباسي مع بروتينات الريبوسوم. تندرج أغلب بروتينات الريبوسوم في الكثير من عائلات الإنزيمات المستهلكة للطاقة بما في ذلك هليكازات RNA المعتمدة على ATP و AAA-ATPases و GTPases و kinases. يتم إنفاق نحو 60% من طاقة الخلية على إنتاج الريبوسوم وصيانته. وفيما يلي تفاصيل أوسع عن ذلك.
علاوةً على ذلك، التكوّن الحيوي للريبوسوم هو عملية منظمة بإحكام شديد، وهي مرتبطة ارتباطًا وثيقًا بالأنشطة الخلوية الأخرى مثل النمو والانقسام.
علاوةً على ذلك، وقد تكهن البعض أنه في أصل الحياة، يسبق التكوين الحيوي للريبوسوم الخلايا، وأن الجينات والخلايا تطورت لتعزيز القدرة الإنجابية للريبوسومات.
GTP + ATP -> pppGpp + AMP
وفي هذا الصدد، يتم لاحقًا إزالة γ-phosphate و ppGpp سوف يرتبط ويثبط بوليميريز RNA. يؤدي هذا الارتباط إلى تقليل نسخ الرنا الريباسي. تعني كمية مخفضة من الرنا الريباسي أنه سيتم ترجمة البروتينات الريبوزومية ولكن لن يكون لها رنا الريباسي للارتباط به. بدلاً من ذلك، سوف يقومون بردود فعل سلبية ويرتبطون بـ mRNA الخاص بهم، مما يثبط تخليق البروتين rRNA. لاحظ أن بروتينات rRNA ترتبط بشكل تفضيلي بالـ rRNA التكميلي إذا كانت موجودة، بدلاً من mRNA.
ومن ناحية أخرى، تشتمل أوبرات الريبوسوم كذلك على جينات بوليميريز الحمض النووي الريبي وعوامل الاستطالة (المستعملة في ترجمة الحمض النووي الريبي). يوضح تنظيم كل هذه الجينات دفعة واحدة الاقتران بين النسخ والترجمة في بدائيات النوى.
المعالجة
وفي السياق ذاته، تشارك الخلايا حقيقية النواة في نسخ ثلاثة من أنواع الرنا الريباسي الناضجة من خلال سلسلة من الخطوات. تحدث عملية نضج الرنا الريباسي وعملية تجنيد البروتينات r في جزيئات الريبوسومات السليفة، والتي تسمى أحيانًا ما قبل الريبوسومات، وتحدث في النواة والنيوكليوبلازم والسيتوبلازم. الخميرة هي كائن نموذجي حقيقي النواة لدراسة التكوين الحيوي للريبوسوم. يبدأ التكوين الحيوي للريبوسوم في النواة. يتم نسخ الوحدات الفرعية 18Sو 5.8Sو 25S من الرنا الريباسي من جينات الريبوسوم كنسخة متعددة الأكياس بواسطة البوليميريز1 وتسمى 35S pre-RNA.
علاوةً على ذلك، يبدأ نسخ البوليميريز الأول بمركب بدء Pol I الذي يرتبط بمروج rDNA. يتطلب تكوين هذا المركب مساعدة عامل تنشيط المنبع أو UAF الذي يرتبط ببروتين ربط صندوق TATA والعامل الأساسي (CF). يسمح عاملا النسخ معًا لمركب RNA pol I بالارتباط بعامل بدء polymerase1 ، Rrn3. أثناء إنتاج نسخة pol I، يسهِّل ما يقرب من 75 جسيمًا نوويًا صغيرًا من الريبونوكلير (snoRNPs) التعديلات التساهمية النسخية المشتركة لـ> 100 من بقايا الرنا الريباسي. تتحكم هذه snoRNPs في مثيلة 2’-O-ribose للنيوكليوتيدات وتساعد كذلك في تكوين pseudouridines في نهاية 5 ' الرنا الريباسي، تتجمع البروتينات الريبوسومية الصغيرة (Rps) والعوامل غير الريبوزومية مع نسخ ما قبل الحمض النووي الريبي لإنشاء مقابض تشبه الكرة. هذه المقابض هي أول جسيمات ما قبل الريبوسوم في مسار الوحدة الفرعية الريبوسومية الصغيرة (40S). يتم شق نسخة الرنا الريباسي في موقع A2، وهذا يفصل أوائل 40S قبل الريبوسوم من المتبقي قبل الرنا الريباسي الذي سيتحد مع البروتينات الريبوسومية الكبيرة (Rpl) والعوامل الأخرى غير الريبوسومية لتكوين جزيئات الريبوسوم قبل 60s.
الريبوسومات
علاوةً على ذلك، الRNA الريبوسومي الموجود في الريبوسومات بدائية النواة وحقيقية النواة
وفي السياق ذاته، الريبوسومات هي الآلات الجزيئية المسؤولة عن ترجمة الRNA الرسول إلى بروتينات. يتكون الريبوسوم في الخلايا حقيقية النواة، والذي يُطلق عليه كذلك الريبوسوم 80S، من وحدتين فرعيتين - الوحدة الفرعية 60S الكبيرة (التي تحتوي على 25S [في النباتات] أو 28S [في الثدييات]، و5.8S، و5S rRNA و46 بروتينًا ريبوسوميًا) والوحدة الفرعية 40S الصغيرة (التي تحتوي على RNA الرايبوسومي 18S و33 من البروتينات الريبوزومية). يتم ترميز بروتينات الريبوسوم بواسطة جينات الريبوسوم.
التصدير النووي
إضافةً إلى ذلك، من أجل أن تنضج وحدات ما قبل الريبوسوم تمامًا، يجب تصديرها إلى السيتوبلازم. للانتقال بشكل فعال من النواة إلى السيتوبلازم، تتفاعل ما قبل الريبوسومات مع مستقبلات التصدير للتحرك عبر القناة المركزية الكارهة للماء لمجمع المسام النووي. karyopherin Crm1 هو مستقبل لكل من الوحدات الفرعية الريبوسومية ويتوسط في التصدير بطريقة تعتمد على Ran-GTP. يتعرف على الجزيئات التي تحتوي على إشارات تصدير نووية غنية باللوسين. يتم سحب Crm1 إلى الوحدة الفرعية 60S الكبيرة بمساعدة بروتين محول يسمى Nmd3. بروتين المحول لوحدة 40S غير معروف. فضلًا عن Crm1 ، تلعب عوامل أخرى دورًا في التصدير النووي لما قبل الريبوسومات. يسهِّل مستقبل تصدير الرنا المرسال العام، المسمى Mex67 ، وكذلك البروتين المحتوي على تكرار الحرارة، Rrp12 ، تصدير كلتا الوحدتين الفرعيتين. هذه العوامل هي بروتينات غير أساسية وتساعد على تحسين تصدير ما قبل الريبوسومات لأنها جزيئات كبيرة.
اعتلال الريبوسومات
وفي هذا الصدد، ترتبط الطفرات في التكوين الحيوي للريبوسوم بالعديد من الأمراض الوراثية التي تصيب الإنسان بسبب اعتلال الريبوسومات، بما في ذلك متلازمات فشل نخاع العظم الموروثة، والتي تتميز بالاستعداد للإصابة بالسرطان وانخفاض عدد خلايا الدم. قد يلعب خلل التنظيم الريبوزومي كذلك دورًا في هزال العضلات.
الوحدة البنائية 40S
من جهة ثانية، يحدث التجميع النسخي للوحدة الفرعية 40S، والذي يشار إليه أحيانًا باسم وحدة فرعية صغيرة (SSU) أو جسيم 90S بطريقة هرمية - بشكل أساسي دمج تدريجي للمجمعات الفرعية UTP-Aو UTP-Bو UTP-C. تتكون هذه المركبات الفرعية من أكثر من 30 عامل بروتين غير ريبوزومي، وجسيم U3 snoRNP ، وعدد قليل من بروتينات Rps و35S pre-rRNA. دورهم الدقيق، على الرغم من أنه لم يتم اكتشافه. يتغير تكوين الجسيمات قبل 40S بشكل جذري بمجرد إجراء الانقسام في المواقع المعتمدة على U3 snoRNPA (المواقع A0 و A1 و A2). يخلق حدث الانقسام هذا 20S pre-rRNA ويتسبب في انفصال العوامل الريبوزومية عن جسيم ما قبل 40S. تم إزاحة U3 من 40S الناشئ بواسطة Helicase Dhr1. في هذه المرحلة من عملية التكوين الحيوي للريبوسوم، يُظهر 40S قبل الريبوسوم بالفعل هياكل «الرأس» و «الجسم» للوحدة الفرعية 40S الناضجة. يتم نقل 40S قبل الريبوسوم من النواة إلى السيتوبلازم. يحتوي السيتوبلازم 40S قبل الريبوسوم الآن على بروتينات ريبوزومية و 20s rRNA وعدد قليل من العوامل غير الريبوسومية. يحدث التكوين النهائي لبنية «المنقار» للوحدة الفرعية 40S بعد حدث الفسفرة ونزع الفسفرة الذي يشتمل على مجمع Enp1-Ltv1-Rps3 والكيناز، Hrr25. انشقاق 20S pre-rRNA في موقع D يخلق 18s rRNA الناضج. يعتمد حدث الانقسام هذا على الكثير من العوامل غير الريبوسومية مثل Nob1 و Rio1 و Rio2 و Tsr1 و Fap7.
ضبط الجودة
مرض يصيب الإنسان
من جهة ثانية، نظرًا لأن الريبوسومات معقدة للغاية، فإن عددًا معينًا من الريبوسومات يتم تجميعها بشكل غير صحيح ويمكن أن تهدر الطاقة والموارد الخلوية عند تصنيع البروتينات غير الوظيفية. لمنع ذلك، تمتلك الخلايا نظام مراقبة نشطًا للتعرف على الريبوسومات التالفة أو المعيبة واستهدافها للتحلل. توجد آلية المراقبة للكشف عن الريبوسومات المسبقة غير الوظيفية وكذلك الريبوسومات الناضجة غير الوظيفية. علاوةً على ذلك، يجلب نظام المراقبة معدات التدهور الضرورية ويؤدي في الواقع إلى تدهور الريبوسومات غير الوظيفية. يتم تدمير الريبوسومات المسبقة التي تتراكم في النواة بواسطة الجسيم الخارجي، وهو مركب متعدد الوحدات مع نشاط نوكلياز خارجي. إذا حدثت الوحدات الفرعية الريبوزومية المعيبة لإخراجها من النواة إلى السيتوبلازم، فهناك نظام مراقبة ثان موجود هناك لاستهداف الريبوسومات المعطلة في السيتوبلازم من أجل التحلل. ستؤدي طفرات معينة في بقايا الوحدة الفرعية للريبوسوم الكبيرة في الواقع إلى تحلل الحمض النووي الريبي وبالتالي تدهور الوحدة. نظرًا لأن كمية العيوب المحتملة في تجميع الريبوسوم واسعة جدًا، فلا يزال من غير المعروف كيف يكتشف نظام المراقبة جميع العيوب، ولكن تم افتراض أنه بدلاً من استهداف عيوب معينة، يتعرف نظام المراقبة على عواقب تلك العيوب - مثل تأخير التجميع. بمعنى إذا كان هناك اضطراب في تجميع أو نضج الريبوسوم الناضج، فسيعمل نظام المراقبة كما لو كانت الوحدة الفرعية معيبة.
حقيقيات النوى
إضافةً إلى ذلك، يعد تخليق البروتين الريبوسومي في حقيقيات النوى نشاطًا استقلابيًا رئيسيًا. يحدث مثل أغلب تخليق البروتين، في السيتوبلازم خارج النواة مباشرة. يتم تصنيع البروتينات الريبوزومية الفردية واستيرادها إلى النواة من خلال المسام النووية.
وفي هذا السياق، يتم نسخ الحمض النووي بسرعة عالية في النواة، التي تحتوي على جميع جينات الرنا الريباسي 45S. الاستثناء الوحيد هو الرنا الريباسي 5S الذي يتم نسخه خارج النواة. بعد النسخ ترتبط الرنا الريباسي ببروتينات الريبوسوم، وتشكل نوعين من الوحدات الريبوسومية (الكبيرة والصغيرة). سوف تتجمع هذه لاحقًا في العصارة الخلوية لتكوين ريبوسوم فعال.
بدائيات النوى
وفي السياق ذاته، هناك 52 جيناً تقوم بتشفير البروتينات الريبوسومية، ويمكن العثور عليها في 20 أوبراً داخل DNA بدائية النواة. يتوقف تنظيم تخليق الريبوسوم على تنظيم الRNA الريبوسومي نفسه.
وفي هذا الصدد، أولاً، سيؤدي انخفاض aminoacyl-tRNA إلى استجابة الخلية بدائية النواة عن طريق خفض النسخ والترجمة. يحدث هذا من خلال سلسلة من الخطوات، بدءًا من العوامل الصارمة المرتبطة بالريبوسومات وتحفيز التفاعل:
الوحدة البنائية 60S
من جانب آخر، يتطلب نضج الوحدة الفرعية قبل 60s إلى وحدة فرعية ناضجة 60s الكثير من عوامل التكوُّن الحيوي التي ترتبط وتنفصل. علاوةً على ذلك، ترتبط بعض عوامل التجميع بالوحدة الفرعية 60S بينما يتفاعل معها البعض الآخر بشكل عابر. كإتجاه عام، فإن نضج الوحدة الفرعية 60s يمثل انخفاضًا تدريجيًا في التعقيد. تنضج الوحدة الفرعية أثناء انتقالها من النواة إلى السيتوبلازم ويتم تقليل عدد العوامل العابرة تدريجيًا. يتطلب نضج الوحدة الفرعية 60S مساعدة قرابة 80 عاملاً. ثمانية من هذه العوامل مسؤولة بشكل مباشر في معالجة 27S A3 pre-rRNA، والتي تكمل في الواقع تشكيل 5’ الناضج من 5.8S rRNA. ترتبط عوامل A3 بالمواقع البعيدة على الRNA المسبق وكذلك ببعضها البعض. لاحقًا، يقومون بتقريب مناطق الرنا الريباسي معًا ويعززون معالجة ما قبل الرنا الريباسي وتوظيف بروتينات الريبوسوم. تعمل ثلاثة قواعد ATPases من النوع AAA على تجريد العوامل من 60S الناضج قبل الريبوسوم. واحد من ATPases هو بروتين Rea1 شبيه بالادنين يتكون من 6 نطاقات ATPase مختلفة تشكل بنية حلقة. هيكل الحلقة متصل بذيل مرن يحدث أن يكون له طرف MIDAS (موقع التصاق يعتمد على أيونات معدنية). يتفاعل Rea1 مع 60S قبل الريبوسوم عبر حلقته بينما تتفاعل ركيزتانYtm1 وRsa1، مع Rea1 من خلال طرف MIDAS الخاص به. لم يتم بعد تحديد دور هذه الركائز. كلاهما جنبًا إلى جنب مع تفاعلاتهما، يتم إزالتهما في عملية نضج 60S قبل الريبوسوم. يعمل كل من ATPases الأخريين، Rix7وDrg1 كذلك على إزالة عوامل التجميع من الوحدة الفرعية 60S الناضجة. تشارك كذلك Helicases و GTPases في إزالة عوامل التجميع وإعادة ترتيب RNA لتشكيل الوحدة الفرعية 60S المكتملة. مرة واحدة في السيتوبلازم (انظر التصدير النووي)، تخضع الوحدة الفرعية 60S لمزيد من المعالجة لكي تكون وظيفية. ترتبط بقية جسيمات الريبوسومات الكبيرة بالوحدة 60S وتنفصل عوامل التجميع غير الريبوسومية المتبقية. يتم التوسط في إطلاق عوامل التولد الحيوي في الغالب بواسطة GTPases مثل Lsg1 و ATPases مثل Drg1. التسلسل الدقيق لهذه الأحداث لا يزال غير واضح. لا يزال مسار النضج السيتوبلازمي 60S غير مكتمل بقدر ما يتعلق الأمر بالمعرفة الحالية.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟