نظرية الكابلات
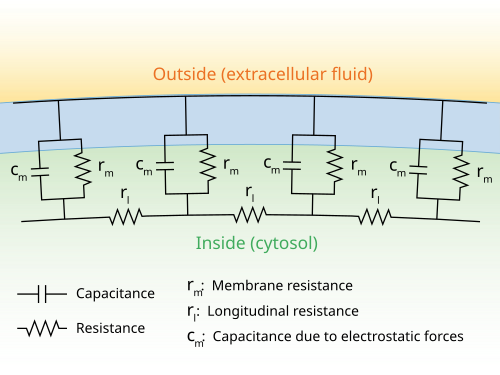
قبل الخوض في التفاصيل، في علم الأعصاب، تستعمل نظرية الكابلات الكلاسيكية نماذج رياضية لحساب التيار الكهربائي (والجهد المصاحب) على طول الخلايا العصبية السلبية، وخاصة الخلايا الشجيرية التي تتلقى المدخلات المشبكية في مواقع وأوقات مختلفة. يتم إجراء التقديرات عن طريق نمذجة التشعبات والمحاور العصبية على شكل أسطوانات مكونة من أجزاء ذات سعات والمقاومات مجتمعة بالتوازي (انظر الشكل 1). تنشأ سعة الألياف العصبية بسبب تأثير القوى الكهروستاتيكية عبر الطبقة الدهنية الرقيقة جدًا (انظر الشكل 2). المقاومة المتسلسلة على طول الألياف ناتجة عن المقاومة الكبيرة للمحور الخلويلحركة الشحنة الكهربائية. ونتناول فيما يلي مزيدًا من التفاصيل.
استنباط معادلة الكابل
حيث أن السالب هو لأن التيار يتدفق إلى أسفل التدرج المحتمل.
علاوةً على ذلك، إذا تركنا Δ x يتجه نحو الصفر ولدينا زيادات صغيرة لا نهائية لـ x، فيمكننا كتابة ( 4 ) على النحو التالي:
في هذا الإطار، لاحظ أن هناك اتفاقيات مختلفة لـ r m. هنا يتم قياس r m و c m، كما تم تقديمهما أعلاه، لكل وحدة طول الغشاء (لكل متر (م)). وبالتالي يتم قياس r m بالأوم · متر (Ω·m) و c m بالفاراد لكل متر (F/m). وهذا على النقيض من R m (بالوحدة Ω·m 2 ) و C m (بالوحدة F/m 2 )، والتي تمثل المقاومة النوعية والسعة لوحدة مساحة واحدة من الغشاء (بالوحدة m 2 )، على التوالي. وبالتالي، إذا كان نصف قطر المحور العصبي، a، معروفًا، فإن محيطه يساوي 2πa، ويمكن حساب قيم rm وcm على النحو التالي :
ومن جهة أخرى، لفهم كيفية استنباط معادلة الكابل بشكل أفضل، ضع في اعتبارك أولاً خلية عصبية مثالية ذات غشاء محكم الغلق تمامًا ( r m = ∞) بدون فقدان للتيار إلى الخارج، وبدون سعة ( c m = 0). تيار يتم حقنه في الألياف في الموضع x = 0 سوف تتحرك على طول الجزء الداخلي من الألياف دون تغيير. بالابتعاد عن نقطة الحقن وباستخدام قانون أوم ( V = IR ) يمكننا حساب تغير الجهد على النحو التالي:
ومن ناحية أخرى، كلما زادت مساحة المقطع العرضي للمحور العصبي، πa 2، زاد عدد المسارات التي تتدفق بها الشحنة عبر محوره العصبي، وانخفضت مقاومة محوره العصبي.
كذلك، شهدت الكثير من الطرق المهمة لتوسيع نظرية الكابلات الكلاسيكية مؤخرًا إدخال هياكل داخلية من أجل تحليل تأثيرات استقطاب البروتين داخل التشعبات وتوزيعات المدخلات المشبكية المختلفة على السطح التشعبي للخلية العصبية.
وعلى صعيد آخر، تبدو هذه العلاقات منطقية بشكل حدسي، لأنه كلما كان محيط المحور العصبي أكبر، كلما كانت المساحة المتاحة للشحنة للهروب من خلال غشائه أكبر، وبالتالي انخفضت مقاومة الغشاء (بقسمة R m على 2 πa )؛ وكلما زادت مساحة الغشاء المتاحة لتخزين الشحنة (بضرب C m في 2 πa ). تسمح المقاومة الكهربائية النوعية، ρ l، للبلازما المحورية بحساب المقاومة داخل الخلايا الطولية لكل وحدة طول، r l، (بوحدة Ω·m −1 ) بالمعادلة:
ملحوظات
وعلى صعيد آخر، تفترض نظرية الكابل الكلاسيكية أن المدخلات (التي تكون عادةً حقن تيار بواسطة أجهزة دقيقة) هي تيارات يمكن جمعها خطيًا. لكن هذا الخطي لا ينطبق على التغيرات في موصلية الغشاء المشبكي.
من جانب آخر، تفترض نظرية الكابل الكلاسيكية أن نصف قطر الليف ثابت على طول المسافة التي يتم نمذجتها.
علاوةً على ذلك، "سلبية" هنا تشير إلى أن مقاومة الغشاء لا تعتمد على الجهد الكهربائي. ومع ذلك، أظهرت تجارب حديثة (ستيوارت وساكمان 1994) على أغشية التغصينات أن العديد منها يحتوي على قنوات أيونية بوابات الجهد، مما يجعل مقاومة الغشاء تعتمد على الجهد. ونتيجة لذلك، ظهرت الحاجة إلى تحديث نظرية الكابل الكلاسيكية لتأخذ في الاعتبار أن أغلب الأغشية التغصنية ليست سلبية.
ثابت الطول
من جانب آخر، أين هو الاستقطاب في (نقطة حقن التيار)، e هو الثابت الأسي (القيمة التقريبية 2.71828) و هو الجهد عند مسافة معينة x من x = 0. متى ثم
علاوةً على ذلك، ثابت الطول، (lambda) هي معلمة تشير إلى مدى تأثير التيار الثابت على الجهد على طول الكابل. كلما كانت القيمة أكبر كلما زاد تدفق الشحنة، زادت المسافة. يمكن التعبير عن ثابت الطول على النحو التالي:
من جهة ثانية، كلما زادت مقاومة الغشاء، r m، زادت قيمة ، وسيبقى المزيد من التيار داخل المحور العصبي لينتقل طوليًا عبر المحور العصبي. كلما زادت المقاومة المحورية، كلما كانت قيمة أصغر كلما زادت صعوبة انتقال التيار عبر الغشاء المحوري، كلما كانت المسافة التي يستطيع التيار قطعها أقصر. من الممكن حل المعادلة ( 12 ) والوصول إلى المعادلة التالية (وهي صالحة في ظروف الحالة المستقرة، أي عندما يقترب الزمن من اللانهاية):
الشكل العام والبنية الرياضية
وفي هذا السياق، إذا ضربنا المعادلة ( 12 ) بـ على جانبي علامة المساواة نحصل على:
إضافةً إلى ذلك، وهي كذلك حالة متدهورة خاصة لمعادلة التلغراف، حيث المحاثة يختفي وسرعة انتشار الإشارة لانهائي.
من جهة ثانية، والتعرف على الجانب الأيسر و على الجانب الأيمن. من الممكن الآن كتابة معادلة الكابل في شكلها الأكثر شهرة:
وفي هذا السياق، هذه معادلة حرارية أحادية البعد أو معادلة انتشار تم تطوير الكثير من طرق الحل لها، مثل وظائف جرين وطرق فورييه.
- انظر كذلك
- محور عصبي
- الكيمياء الحيوية الكهربائية
- نموذج الخلايا العصبية البيولوجية
- شجيرات شجيرية
- نموذج هودجكين-هكسلي
- جهد الغشاء
- مشبك التصحيح
- التوصيل القفزي
ثابت الزمن
ومن جهة أخرى، غالبًا ما يهتم علماء الأعصاب بمعرفة مدى سرعة إمكانات الغشاء، ، يتغير المحور العصبي استجابة للتغيرات في التيار المحقون في الغشاء المحوري. ثابت الزمن، ، هو مؤشر يوفر معلومات حول هذه القيمة. يمكن حسابها على النحو التالي:
من جهة ثانية، كلما كانت سعة الغشاء أكبر، كلما زاد التيار اللازم لشحن وتفريغ رقعة من الغشاء، كلما استغرقت هذه العملية وقتًا أطول. كلما زادت مقاومة الغشاء كلما كان من الصعب على التيار أن يحفز تغييرًا في جهد الغشاء. لذا كلما ارتفع كلما كان انتقال النبض العصبي أبطأ، كلما كان ذلك أفضل. وهذا يعني أن إمكانات الغشاء (الجهد عبر الغشاء) تتأخر أكثر عن حقن التيار. تتراوح أوقات الاستجابة من 1 إلى 2 مللي ثانية في الخلايا العصبية التي تعالج المعلومات التي تحتاج إلى دقة زمنية عالية إلى 100 مللي ثانية أو أكثر. متوسط وقت الاستجابة هو نحو 20 مللي ثانية.
أو
وهي معادلة تفاضلية جزئية من الدرجة الثانية، (PDE).
علاوةً على ذلك، يمكن التعبير عنها بصيغة أخرى، عن طريق تضمين السعة. ستؤدي السعة إلى تدفق الشحنة (التيار) نحو الغشاء على جانب السيتوبلازم. يشار إلى هذا التيار عادةً باسم تيار الإزاحة (يُشار إليه هنا بـ ) لن يحدث التدفق إلا عندما لا يتم الوصول إلى سعة التخزين الخاصة بالغشاء. ومن ثم يمكن التعبير عنها على النحو التالي:
علاوةً على ذلك، يؤدي الجمع بين المعادلتين ( 6 ) و( 11 ) إلى الحصول على النسخة الأولى من معادلة الكابل:
كذلك، إن إعادة r m إلى الصورة يشبه عمل ثقوب في خرطوم الحديقة. كلما زاد عدد الثقوب، كلما كانت سرعة خروج الماء من الخرطوم أسرع، وكلما كانت كمية الماء التي تنتقل من بداية الخرطوم إلى نهايته أقل. وبالمثل، في المحور العصبي، فإن بعض التيار المسافر طوليًا عبر الغشاء المحوري سوف يهرب عبر الغشاء.
علاوةً على ذلك، أين هي سعة الغشاء و هو التغير في الجهد بمرور الوقت. التيار الذي يمر عبر الغشاء يمكن التعبير عنها على النحو التالي:
في هذا الإطار، من خلال إعادة ترتيب بسيطة للمعادلة ( 12 ) (انظر لاحقًا) من الممكن أن يظهر مصطلحان مهمان، وهما ثابت الطول (يشار إليه أحيانًا باسم ثابت المساحة) الذي يرمز إليه والثابت الزمني المشار إليه . وتركز الأقسام التالية على هذه المصطلحات.
أو باستخدام زيادات مستمرة صغيرة للغاية:
بحيث أن يمثل التغير لكل وحدة طول من التيار الطولي.
ومن جهة أخرى، و لأن المعادلة التالية لـ يمكن اشتقاقها إذا لم تتم إضافة أي تيار إضافي من القطب الكهربائي:
وفي هذا الصدد، إذا كان i m هو التيار المتسرب عبر الغشاء لكل وحدة طول، m، فإن التيار الكلي المتسرب على طول y وحدة يجب أن يكون y·i m. وبالتالي، يمكن كتابة تغير التيار في البلازم المحوري، Δ i l، على مسافة Δ x، من الموضع x = 0 على النحو التالي:
تاريخ
علاوةً على ذلك، وفي وقت لاحق، سمحت نظرية الكابلات مع مشتقاتها الرياضية باستكشاف نماذج عصبية أكثر تعقيدًا من قبل عمال مثل جاك، ورال، وريدمان، ورينزيل، وإيدان سيجيف، وتوكويل، وبيل، وإيانيلا. في الآونة الأخيرة، تم تطبيق نظرية الكابلات لنمذجة النشاط الكهربائي في الخلايا العصبية المجمعة في المادة البيضاء في الدماغ.
في هذا الإطار، وشهدت الخمسينيات من القرن العشرين تحسينات في تقنيات قياس النشاط الكهربائي للخلايا العصبية الفردية. وهكذا أصبحت نظرية الكابلات مهمة لتحليل البيانات التي تم جمعها من تسجيلات الميكروإلكترود داخل الخلايا وتحليل الخصائص الكهربائية للتغصنات العصبية. والآن يعتمد علماء مثل كومبس، وإيكليس، وفات، وفرانك، وفورتس، وغيرهم إلى حدّ كبير على نظرية الكابلات للحصول على رؤى وظيفية للخلايا العصبية وتوجيهها في تصميم تجارب جديدة.
إضافةً إلى ذلك، تعود جذور نظرية الكابلات في علم الأعصاب الحسابي إلى خمسينيات القرن التاسع عشر، عندما بدأ البروفيسور ويليام تومسون (المعروف لاحقًا باسم اللورد كلفن) في تطوير نماذج رياضية لتحلل الإشارة في الكابلات التلغرافية البحرية (تحت الماء). كانت النماذج تشبه المعادلات التفاضلية الجزئية التي استعملها فورييه لوصف التوصيل الحراري في السلك.
من جهة ثانية، وشهدت سبعينيات القرن التاسع عشر المحاولات الأولى التي قام بها هيرمان لنمذجة الإمكانات الكهربائية العصبية كذلك من خلال التركيز على القياسات مع التوصيل الحراري. ومع ذلك، كان هورويغ هو أول من اكتشف أوجه التشابه مع كابلات كلفن تحت البحر في عام 1898، ثم قام هيرمان وكريمر بتطوير نظرية الكابلات للألياف العصبية بشكل مستقل في أوائل القرن العشرين. تم تطوير المزيد من النظريات الرياضية لتوصيل الألياف العصبية استنادًا إلى نظرية الكابلات بواسطة كول وهودجكين (عشرينيات وثلاثينيات القرن العشرين)، وأوفنر وآخرون (1940)، وراشتون (1951).
وفي هذا السياق، بدأت الأدلة التجريبية على أهمية نظرية الكابلات في نمذجة سلوك المحاور العصبية في الظهور في ثلاثينيات القرن العشرين من خلال العمل الذي قام به كول، وكيرتس، وهودجكين، والسير برنارد كاتز، وراشتون، وتاساكي، وآخرون. ومن بين الأوراق البحثية الرئيسية التي صدرت في هذه الحقبة تلك التي قدمها ديفيس ولورينتي دي نو (1947) وهودجكين وراشتون (1946).
و
هكذا تكون دائمًا 36.8 بالمائة من .
وهذا يعني أنه عندما نقيس على مسافة من نحن نحصل
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟