أكتين
المحتويات
- في الأكتينات السيتوبلازمية
- F- أكتين
- دور أكتين في تقلص العضلات
- الأكتين النووي
- نقل الأكتين عبر الغشاء النووي
- الخميرة
- ACTG1 - جاما أكتين 1
- ACTB - أكتين بيتا
- في عضلة القلب
- دراسات في المختبر
- التطبيقات
- الهيكل الثالث - المجالات
- الهيكل الخلوي
- علم الوراثة
- البروتينات المرتبطة
- الهيكل الأساسي
- الوظائف والموقع
- التنوي والبلمرة
- الجينات
- انكماش العضلات
- الإكتشاف والتحقيق المبكر
- دور التحلل المائي ATP
- آلية التحفيز ATPase
- علم الأمراض الجزيئي
- مثبطات كيميائية
- في العضلات الملساء
- مكافئات في البكتيريا
- خيوط الأكتين
- ترتبط الصورة التقليدية لوظيفة الأكتين بصيانة الهيكل
- قابلة للطي
- G- أكتين
- بناء
- الأشكال الإسوية للأكتين في نواة الخلية
- ACTA1 - ألفا أكتين 1، العضلات الهيكلية
- النباتات
- وظائف الأكتين النووية
- تطور
- علم الأمراض المرتبط بـ ACTA1
- الخطوط العريضة لانقباض العضلات
- تنظيم الأكتين النووي
- هياكل مهمة أخرى
- آليات مرضية أخرى
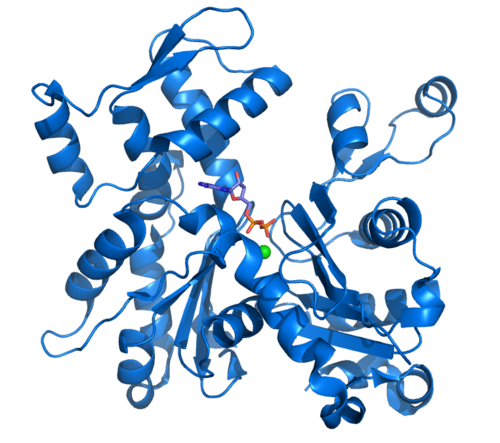
تعريفًا بالموضوع، أكتين (بالإنجليزية:Actin) هو بروتين، الوزن الجزيئي له ما يقارب 42 كيلو دالتون، وهذا البروتين موجود في جميع الخلايا حقيقية النواة (والاستثناء الوحيد المعروف عند الحيوانات المنوية للديدان الخيطية) حيث أنه قد يكون موجودا في تركيزات أكثر من 100 ميكرو مولار. ونتناول فيما يلي مزيدًا من التفاصيل.
وفي هذا الصدد، بروتين الأكتين هو الوحدة الفرعية المكونة من نوعين من الخيوط في الخلايا: الميكروفيلم، أحد المكونات الرئيسية الثلاثة للهيكل الخلوي، والخيوط الرقيقة، وهي جزء من الجهاز المقلص في الخلايا العضلية. يمكن أن تكون موجودة إما كمونومر حر يسمى G-actin (كروي) أو كجزء من microfilament خطية من البوليمر يسمى F-actin (خيطي)، وكلاهما ضروري لمهام الخلوية الهامة مثل قابلية الحركة والانكماش للخلايا أثناء انقسام الخلية.
وفي هذا السياق، يشارك الأكتين في الكثير من العمليات الخلوية المهمة، بما في ذلك تقلص العضلات، حركية الخلية، انقسام الخلايا والحركة الخلوية، حركة الحويصلة والعضية، إشارات الخلية، وإنشاء وصيانة تقاطعات الخلايا وشكلها. يتم التوسط في الكثير من هذه العمليات من خلال تفاعلات واسعة وحميمة من الأكتين مع الأغشية الخلوية. في الفقاريات، تم تحديد ثلاث مجموعات رئيسية من أشكال الأكتين، ألفا، بيتا، وغاما. الأكتين ألفا، الموجود في أنسجة العضلات، هي مكون رئيسي للجهاز الانقباضي. تتعايش أكتينات بيتا وغاما في أغلب أنواع الخلايا كمكونات في الهيكل الخلوي، وكوسطاء لحركية الخلية الداخلية. ويعتقد أن مجموعة متنوعة من الهياكل التي شكلتها أكتين تمكنها من تحقيق مثل هذه المجموعة الكبيرة من الوظائف يتم تنظيمها من خلال ربط التروبوميوسين على طول الخيوط.
ومن ناحية أخرى، يحدث عدد كبير من الأمراض والأمراض بسبب طفرات في أليلات الجينات التي تنظم إنتاج الأكتين أو البروتينات المرتبطة به. إنتاج الأكتين هو كذلك مفتاح لعملية العدوى من قبل بعض الكائنات الحية الدقيقة المسببة للأمراض. الطفرات في الجينات المختلفة التي تنظم إنتاج الأكتين عند البشر يمكن أن تسبب أمراضًا عضلية، وتغيرات في حجم القلب ووظيفته وكذلك الصمم. يرتبط تكوين الهيكل الخلوي كذلك بالتسبب في البكتيريا والفيروسات داخل الخلايا، خاصةً في العمليات المتعلقة بالتهرب من إجراءات الجهاز المناعي.
وعلى صعيد آخر، توفر قدرة الخلية على تشكيل حبيبات مجهرية ديناميكية السقالات التي تسمح لها بإعادة تشكيل نفسها بسرعة استجابة لبيئتها أو إلى الإشارات الداخلية للكائن الحي، مثلًا، لزيادة امتصاص غشاء الخلية أو زيادة الالتصاق بالخلايا من أجل تكوين أنسجة الخلية. يمكن تثبيت الإنزيمات أو العضيات الأخرى مثل الأهداب على هذه السقالات من أجل التحكم في تشوه غشاء الخلية الخارجي، والذي يسمح بالبطانة الداخلية والخلايا الخلوية. يمكن أن ينتج حركة إما بمفرده أو بمساعدة محركات جزيئية. لذلك يساهم الأكتين في عمليات مثل النقل داخل الحويصلات من الحويصلات والعضيات وكذلك تقلص العضلات والهجرة الخلوية. لذلك يلعب دورًا مهمًا في تكوين الأجنة وتضميد الجراح وغزو الخلايا السرطانية. يمكن تتبع الأصل التطوري للأكتين إلى الخلايا بدائية النواة، التي تحتوي على بروتينات مكافئة. متماثلات الأكتين من بدائيات النوى والبلمرة القديمة تتحول إلى خيوط حلزونية أو خطية مختلفة تتكون من خيوط أو عدة خيوط. ومع ذلك، يتم الاحتفاظ بجهات الاتصال الداخلية ومواقع ربط النوكليوتيدات في بدائيات النوى وفي الأركيا. أخيرًا، يلعب الأكتين دورًا مهمًا في التحكم في التعبير الجيني.
إضافةً إلى ذلك، يوجد من جزيئات الأكتين نوعان: نوع كروي G-Aktin ونوع متشابك فتيلي F-Aktin. من خصائص الأكتين الفتيلي انه يتغير شكليا بحيث يستطيل ويقصر. وهو يعتير من ضمن الفتيلات الميكرونية الموجودة في داخل الخلية. وهي تعمل كذلك على تماسك الشكل الخارجي للخلايا وتكوين أطراف للخلية، وتفرعات بين الخلايا، وتعمل على حركة اتجاهية للخلايا. في الكائنات متعددة الخلايا يُشكل الأكتين
إضافةً إلى ذلك، وهو بروتين هيكلي ويشكل جزءا من الهيكل الخلوي وأحد خمسة بروتينات غالبية في حقيقيات النوى؛ يوجد في الخلايا العضلية حيث يكون من كل 10 جزيئات بروتين واحد من الأكتين، أما في الخلايا الأخرى فهو يوجد بنسبة 1 إلى 5% فقط.
علاوةً على ذلك، فالأكتين هي عائلة من البروتينات الكروية متعددة الوظائف التي تشكل خيوط دقيقة. يوجد في جميع الخلايا حقيقية النواة (الاستثناء الوحيد المعروف هو الحيوانات المنوية الخيطية)، حيث قد يكون موجودًا بتركيز يزيد عن 100 ميكرومتر؛ تبلغ كتلتها قرابة 42 كيلو دالتون، بقطر 4 إلى 7 نانومتر.
علاوةً على ذلك، بروتين كروي بوزن جزيئي نحو 40,000 يشكل العضلات. تسمى المادة المفردة G actin ، والمبلمرة في شكل خيوط هي F actin ، والمادة التي يرتبط بها التروبونين والتروبوميوسين بهيكلها الحلزوني المزدوج هي المكون الرئيسي لألياف العضلات الرقيقة (الشعيرة الأولى). يحدث تقلص العضلات عن طريق التفاعل بين الألياف السميكة (خيوط) التي شكلتها الميوسين.
وعلى صعيد آخر، الأجزاء المركزية لانقباض العضلات. اختلالات في الأكتين ناشئة عن الجينات الوراثية يمكن أن تتسبب في مرض عضلي أو أمراض أخرى.
في الأكتينات السيتوبلازمية
كذلك، ورم الخلايا الحولية مع تي (7 و 12) (P22؛ Q13) -translocations هو فتنة نادر، فيه طفرة translocational يتسبب في انصهار ACTB الجينات على GLI1 في كروموسوم 12 .
ومن جهة أخرى، من حيث علم الأمراض، وارتبط ذلك مع عمليات مثل الداء النشواني ، التهاب الشبكية الصباغي ، وآليات العدوى، والكلى الأمراض، وأنواع مختلفة من فقدان السمع الخلقية.
كذلك، و ACTG1 رموز مكان للعصاري خلوي البروتين γ-الأكتين هي المسؤولة عن تشكيل هيكل الخلية خيوط دقيقة .يحتوي على ستة إكسونات ، مما أدى إلى ظهور 22mRNAs مختلفة ، والتي تنتج أربعة أشكال إسوية كاملة يعتمد شكل تعبيرها على نوع النسيج الموجود فيها. كما أن لديها اثنين من محفزات الحمض النووي المختلفة . وقد لوحظ أن التسلسلات المترجمة من هذا الموضع ومن تسلسل بيتا-أكتين تشبه إلى حد بعيد تلك المتنبأ بها ، مما يشير إلى تسلسل سلف مشترك عانى من الازدواجية والتحويل الجيني.
إضافةً إلى ذلك، ومع ذلك ، على الرغم من عدم وجود سجل لأي حالة ، فمن المعروف أن الأكتين يتم التعبير عنه كذلك في عضلات الهيكل العظمي ، وعلى الرغم من وجوده بكميات صغيرة، فقد أظهرت الكائنات الحية النموذجية أن غيابه يمكن أن يؤدي إلى اعتلال عضلي.
من جانب آخر، يصيب الأحداث خلل التوتر هو نادر الأمراض التنكسية التي تؤثر على الجهاز العصبي المركزي . على وجه الخصوص، فإنه يؤثر على مناطق القشرة المخية الحديثة والمهاد ، حيث قضيب مثل الحمضة تتشكل الادراج. يمثل الأفراد المصابون نمطًا ظاهريًا مع تشوهات في الخط المتوسط وفقدان السمع الحسي وخلل التوتر العضلي. يحدث بسبب طفرة نقطية حيث يحلالتربتوفان الأحماض الأمينية محل الأرجينين في الموضع 183. هذا يغير تفاعل الأكتين مع نظام ADF / cofilin ، الذي ينظم ديناميات الخلية العصبية تشكيل الهيكل الخلوي.
وعلى صعيد آخر، كما تم اكتشاف طفرة نقطية سائدة تسبب اختلال وظيفي للخلايا المحببة للعدلات والعدوى المتكررة . يبدو أن الطفرة تعدل المجال المسؤول عن الارتباط بين البروفيلين والبروتينات التنظيمية الأخرى. تقارب الأكتين للبروفيلين تقل بدرجة كبيرة في هذا الأليل.
علاوةً على ذلك، تم العثور على ستة طفرات نقطية سائدة في التسلسل تسبب أنواعًا مختلفة من فقدان السمع ، وخاصة فقدان السمع الحسي العصبي المرتبط بموضع DFNA 20/26.يبدو أنها تؤثر على الأهداب المجسمة للخلايا الهدبية الموجودة في عضو كورتي في الأذن الداخلية . -actin هو البروتين الأكثر وفرة في الأنسجة البشرية ، لكنه ليس بكثرة في الخلايا الهدبية ، مما يفسر موقع علم الأمراض. من ناحية أخرى ، يبدو أن غالبية هذه الطفرات تؤثر على المناطق المشاركة في الارتباط ببروتينات أخرى ، وخاصة الأكتوموسين. اقترحت بعض التجارب أن الآلية المرضية لهذا النوع من فقدان السمع تتعلق بـ F-actin في الطفرات التي تكون أكثر حساسية لـ cofilin من الطبيعي.
من جهة ثانية، تم حتى الآن اكتشاف ثلاث عمليات مرضية ناتجة عن تغيير مباشر في تسلسل الجينات:
كذلك، ACTB هو موضع معقد للغاية. يوجد عدد من الجينات الخادعة التي يتم توزيعها في جميع أنحاء الجينوم ، ويحتوي تسلسلها على ستة إكسونات يمكن أن تؤدي إلى ما يصل إلى 21 عملية نسخ مختلفة عن طريق التضفير البديل، والتي تُعرف باسم الأكتين. تمشيا مع هذا التعقيد ، توجد منتجاتها كذلك في عدد من المواقع وتشكل جزءًا من مجموعة متنوعة من العمليات (الهيكل الخلوي، مجمع NuA4 هيستون - مركب ناقل أسيل ، نواة الخلية) فضلًا عن أنها مرتبطة بآليات عدد كبير من العمليات المرضية (السرطانات ، خلل التوتر العضلي عندالأحداثوآليات العدوى وتشوهات الجهاز العصبي وغزو الأورام وغيرها). تم اكتشاف شكل جديد من الأكتين ، وهو كابا أكتين ، والذي يبدو أنه يحل محل بيتا-أكتين في العمليات المتعلقة بالأورام .
F- أكتين
وصف الكلاسيكية من F-الأكتين الدول التي لديها بنية
إضافةً إلى ذلك، هناك اتفاق أقل فيما يتعلق بقياسات نصف قطر الدوران وسماكة الفتيل: بينما حددت النماذج الأولى طولًا 25، تشير بيانات حيود الأشعة السينية الحالية، المدعومة بالمجهر الإلكتروني بالتبريد، إلى طول 23.7 Å. أظهرت هذه الدراسات نقاط الاتصال الدقيقة بين المونومرات. بعضها يتكون من وحدات من نفس السلسلة، بين النهاية «الشائكة» على مونومر واحد والنهاية «المدببة» للجزء التالي. في حين أن المونومرات في السلاسل المجاورة تقوم بالاتصال الجانبي من خلال الإسقاطات من النطاق الفرعي IV ، مع أن أهم الإسقاطات هي تلك التي تكونت بواسطة الطرف C والوصلة الكارهة للماء المكونة من ثلاثة أجسام تتضمن بقايا 39-42، 201-203، و 286. هذا يشير النموذج إلى أن الخيط يتكون من المونومرات في تشكيل «صفيحة»، حيث تدور النطاقات الفرعية حول نفسها،MreB .
وفي هذا الصدد، يعتبر بوليمر F-actin ذو قطبية هيكلية نظرًا لحقيقة أن جميع الوحدات الفرعية للخيوط الدقيقة تشير إلى نفس النهاية. يؤدي هذا إلى ظهور اصطلاح تسمية: النهاية التي تمتلك وحدة فرعية أكتين تعرض موقع ارتباط ATP الخاص بها تسمى «(-) النهاية»، بينما يسمى الطرف المقابل حيث يتم توجيه الشق إلى مونومر مجاور مختلف بـ «(+) النهاية». المصطلحات «مدببة» و «شائكة» تشير إلى طرفي الألياف الدقيقة مشتقة من مظهرها تحت المجهر الإلكتروني النافذ عند فحص العينات باتباع تقنية تحضير تسمى «زخرفة».. يشكل هذا الميوسين روابط قطبية مع مونومرات الأكتين، مما يؤدي إلى تكوين يشبه الأسهم مع قاذفات الريش على طول عمودها، حيث يكون العمود هو الأكتين والقفزات هي الميوسين. باتباع هذا المنطق، فإن نهاية الخيوط الدقيقة التي لا تحتوي على أي ميوسين بارز تسمى نقطة السهم (- النهاية) وتسمى النهاية الأخرى بالنهاية الشائكة (+ النهاية). يتكون الجزء S1 من مناطق الرأس والرقبة للميوسين الثاني . في ظل الظروف الفسيولوجية، يتم تحويل G-actin (شكل المونومر) إلى F-actin (شكل البوليمر) بواسطة ATP ، حيث يكون دور ATP ضروريًا.
من جهة ثانية، الخيطية التي يمكن أن تعتبر واحدة الذين تقطعت بهم السبل أيسري التدوير الحلزون مع دوران 166 درجة حول محور حلزوني وترجمة المحورية 27.5 Å ، أو واحد الذين تقطعت بهم السبل ميمن الحلزون مع صليب على تباعد 350-380 Å ، مع كل أكتين محاطة بأربعة أخرى. تناظر بوليمر الأكتين عند 2.17 وحدة فرعية في كل دورة من اللولب غير متوافق مع تكوين البلورات، وهو أمر ممكن فقط مع تناظر 2 أو 3 أو 4 أو 6 وحدات فرعية في كل دورة. لذلك، يجب بناء نماذج تشرح هذه الحالات الشاذة باستخدام بيانات من المجهر الإلكتروني، المجهر الإلكتروني بالتبريد، تبلور الثنائيات في أوضاع مختلفة وانحراف الأشعة السينية . وتجدر الإشارة إلى أنه ليس من الصحيح الحديث عن «بنية» لجزيء ديناميكي مثل خيوط الأكتين. في الواقع، نتحدث عن حالات هيكلية متميزة، حيث يظل قياس الترجمة المحورية ثابتًا عند 27.5 Å بينما تُظهر بيانات دوران الوحدة الفرعية تباينًا كبيرًا، مع عمليات نزوح تصل إلى 10 ٪ من موقعها الأمثل الذي يُرى بشكل شائع. يبدو أن بعض البروتينات، مثل cofilin ، تزيد من زاوية الانعطاف، ولكن مرة أخرى يمكن تفسير ذلك على أنه إنشاء حالات هيكلية مختلفة. يمكن أن تكون هذه مهمة في عملية البلمرة.
وفي هذا الصدد، تحتوي خيوط F-actin الحلزونية الموجودة في العضلات كذلك على جزيء تروبوميوسين، وهو بروتين بطول 40نانومترًا ملفوفًا حول حلزون F-actin. خلال مرحلة الراحة، يغطي التروبوميوسين المواقع النشطة للأكتين بحيث لا يحدث تفاعل الأكتين والميوسين وينتج تقلصًا عضليًا. هناك جزيئات بروتينية أخرى منضمة إلى موضوع التروبوميوزين، وهذه هي troponins التي لديها ثلاثة البوليمرات: التروبونين I ، التروبونين T ، وتروبونين C .
دور أكتين في تقلص العضلات
كذلك، Ca 2+ الالتقاط بواسطة الشبكة الساركوبلازمية ، مما يتسبب في تغيير توافقي جديد في التروبوميوسين الذي يثبط تفاعل الأكتين والميوسين. .
وفي هذا الصدد، يشارك كل من الأكتين والميوسين في تقلص العضلات واسترخاءها ويشكلان 90٪ من بروتين العضلات. تبدأ العملية الكلية بإشارة خارجية ، عادة من خلال جهد فعليحفز العضلات ، والتي تحتوي على خلايا متخصصة تكون داخلها غنية بخيوط الأكتين والميوسين. تتكون دورة الانقباض والاسترخاء من الخطوات التالية:
عمليات بيولوجية أخرى
وفي السياق ذاته، حركة رؤوس الميوسين فوق الخيوط الرقيقة ، يمكن أن تشمل ATP أو تكون مستقلة عن ATP. تتسبب الآلية السابقة ، التي يتوسط فيها نشاط ATPaseفي رؤوس الميوسين ، في حركة خيوط الأكتين نحو القرص Z-disc .
ومن ناحية أخرى، إزالة استقطاب غمد الليف العضلي وانتقال جهد الفعل من خلال الأنابيب التائية .
وفي هذا الصدد، زيادة في عصاري خلوي كا 2+ تركيزات والتفاعل بين هذه الكاتيونات مع التروبونين مما تسبب في تغيير متعلق بتكوين في تقريرها هيكل . وهذا بدوره يغير بنية التروبوميوسين ، الذي يغطي الموقع النشط للأكتين ، مما يسمح بتكوين روابط متقاطعة للميوسين - أكتين (الأخير موجود كخيوط رفيعة).
وفي هذا الصدد، تحتوي خيوط F-actin الحلزونية الموجودة في العضلات كذلك على جزيء تروبوميوسين ، وهو بروتين يبلغ 40نانومترًا ملفوفًا حول حلزون F-actin. خلال مرحلة الراحة ، يغطي التروبوميوسين المواقع النشطة للأكتين بحيث لا يحدث تفاعل الأكتين والميوسين وينتج تقلصًا عضليًا (يؤدي التفاعل إلى حركة بين البروتينين الذي ينتج عنه تقلص ، لأنه يتكرر عدة مرات). هناك جزيئات بروتينية أخرى منضمة إلى موضوع التروبوميوزين، وتشمل هذه troponins التي لديها ثلاثة البوليمرات: التروبونين I ، التروبونين T ، وتروبونين C . تعتمد الوظيفة التنظيمية لـ Tropomyosin على تفاعلها مع التروبونين في وجود أيونات Ca 2+ .
فتح في شبكية الهيولى العضلية الصورة كا 2+القنوات.
الأكتين النووي
وفي هذا الصدد، تمت ملاحظة الأكتين النووي ووصفه لأول مرة في سنة 1977 من قبل كلارك وميريام. يصف المؤلفون بروتينًا موجودًا في الجزء النووي ، تم الحصول عليه من البويضاتXenopus laevis ، والذي يُظهر نفس ميزات الأكتين العضلي الهيكلي. منذ ذلك الوقت ، كان هناك الكثير من التقارير العلمية حول بنية ووظائف الأكتين في النواة (للمراجعة ، انظر: Hofmann 2009. ) مستوى الأكتين الخاضع للرقابة في النواة ، وتفاعله مع بروتينات ربط الأكتين (ABP) ويسمح وجود الأشكال الإسوية المختلفة للأكتين بلعب دور مهم في الكثير من العمليات النووية المهمة.
نقل الأكتين عبر الغشاء النووي
كذلك، لا يحتوي تسلسل الأكتين على إشارة توطين نووية. يسمح الحجم الصغير للأكتين (نحو 43 كيلو دالتون) بدخول النواة عن طريق الانتشار السلبي. لكن الأكتين ينتقل بين السيتوبلازم والنواة بسرعة كبيرة ، مما يشير إلى وجود نقل نشط. يتم تسهيل استيراد الأكتين إلى النواة (ربما في مجمع مع cofilin) عن طريق استيراد البروتين 9.
علاوةً على ذلك، بناءً على النتائج التجريبية ، يمكن اقتراح آلية عامة لنقل الأكتين النووي:
ومن ناحية أخرى، تسمح تعديلات محددة ، مثل SUMOylation ، بالاحتفاظ بالأكتين النووي. تم إثبات أن الطفرة التي تمنع ارتباط SUMOylation تؤدي إلى تصدير سريع لبيتا أكتين من النواة.
ومن جهة أخرى، يبدو أن انخفاض مستوى الأكتين في النواة مهم للغاية ، لأن الأكتين يحتوي على إشارتين للتصدير النووي (NES) في تسلسله. تتم إزالة الأكتين المجهري بسرعة من النواة إلى السيتوبلازم. يتم تصدير الأكتين بطريقتين على الأقل ، من خلال التصدير 1 (EXP1) والتصدير في 6 (Exp6).
وفي هذا السياق، يعزز التركيز العالي لـ ATP في النواة (مقارنة بالسيتوبلازم) ADP إلى تبادل ATP في مجمع الأكتين-كوفيلين. هذا يضعف قوة ارتباط هذين البروتينين.
من جهة ثانية، في السيتوبلازم cofilin ربط مونومرات ADP-actin. يتم استيراد هذا المجمع بنشاط إلى النواة.
- يتفكك مجمع Cofilin-actin أخيرًا بعد الفسفرة cofilin بواسطة LIM كيناز النووي.
- الأكتين هو SUMOylated وفي هذا الشكل يتم الاحتفاظ به داخل النواة.
- يمكن أن يشكل الأكتين معقدات مع البروفيلين ويترك النواة عبر التصدير 6.
الخميرة
ومن ناحية أخرى، تحتوي الخميرة على ثلاثة عناصر رئيسية مرتبطة بالأكتين: البقع والكابلات والحلقات التي ، على الرغم من عدم وجودها لفترة طويلة ، تخضع لتوازن ديناميكي بسبب البلمرة المستمرة وإزالة البلمرة. لديهم عدد من البروتينات الملحقة بما في ذلك ADF / cofilin ، الذي يبلغ وزنه الجزيئي 16 كيلو دالتون ويتم ترميزه بواسطة جين واحد يسمى COF1 ؛ Aip1 ، عامل مساعد cofilin يعزز تفكيك الخيوط الدقيقة ؛ Srv2 / CAP ، منظم عملية متعلق ببروتينات محلقة أدينيلات ؛ بروفيلين بوزن جزيئي يقارب 14 كيلو دالتون يرتبط / يرتبط بمونومرات الأكتين ؛ و twinfilin ، وهو بروتين 40 كيلو دالتون يشارك في تنظيم البقع.
من جهة ثانية، الهيكل الخلوي الأكتين هو المفتاح لعمليات الإلتقام، السيتوبلازمي ، وتحديد قطبية الخلايا والتشكل فيالخمائر . فضلًا عن الاعتماد على الأكتين ، تشتمل هذه العمليات على 20 أو 30 بروتينًا مرتبطًا ، والتي تتمتع جميعها بدرجة عالية من الحفظ التطوري ، إلى جانب الكثير من جزيئات الإشارة. تسمح هذه العناصر معًا بتجميع مُعدَّل مكانيًا وزمنيًا يحدد استجابة الخلية لكل من المحفزات الداخلية والخارجية.
ACTG1 - جاما أكتين 1
انظر كذلك
ACTG2 - جاما أكتين 2، العضلات الملساء ، المعوية
ACTB - أكتين بيتا
ACTC1 - أكتين ، ألفا ، عضلة قلبية 1
في عضلة القلب
ومن جهة أخرى، تم وصف عدد من الاضطرابات الهيكلية المرتبطة بالطفرات النقطية لهذا الجين والتي تسبب خللًا في عمل القلب ، مثلاعتلال عضلة القلب التوسعي من النوع 1R واعتلال عضلة القلب الضخامي من النوع 11 . تم وصف عيوب معينة في الحاجز الأذيني مؤخرًا والتي يمكن كذلك أن تكون مرتبطة بهذه الطفرات.
في هذا الإطار، وقد تم دراسة حالتين من تمدد عضلة القلب التي تنطوي على استبدال غاية التمايز الأحماض الأمينية التي تنتمي إلى المجالات البروتين التي تربط وبعثر مع أقراص Z . وقد أدى ذلك إلى النظرية القائلة بأن التمدد ينتج عن خلل في انتقال القوة الانقباضية في الخلايا العضلية .
P166A: منطقة التفاعل بين مونومرات الأكتين.
A333P: منطقة تفاعل الأكتين والميوسين.
وفي السياق ذاته، يبدو أن عملية التسبب في المرض تنطوي على آلية تعويضية: تعمل البروتينات الطافرة مثل السموم ذات التأثير المهيمن ، مما يقلل من قدرة القلب على الانقباض مسببة سلوكًا ميكانيكيًا غير طبيعي مثل أن يكون التضخم ، الذي يتأخر عادةً ، نتيجة لاستجابة عضلة القلب الطبيعية للإجهاد.
ومن ناحية أخرى، الطفرات في ACTC1 مسؤولة عن 5٪ على الأقل من اعتلال عضلة القلب الضخامي. كما تم العثور على عدد من الطفرات النقطية:
من جهة ثانية، و ACTC1 رموز الجينات لα أكتين شكل الإسوي موجودة في عضلة القلب. تم تسلسله لأول مرة بواسطة حمادة وزملائه في عام 1982، عندما وجد أنه متقطع بخمس إنترونات. كان الأول من أصل ستة جينات حيث تم العثور على الأليلات المتورطة في العمليات المرضية.
علاوةً على ذلك، اكتشفت الدراسات الحديثة طفرات ACTC1 المتورطة في عمليتين مرضيتين أخريين: اعتلال عضلة القلب المقيدمجهول السبب عند الأطفال ، وعدم انضغاط عضلة القلب البطين الأيسر .
ومن جهة أخرى، طفرة E101K: تغييرات في صافي الشحنة وتشكيل رابط إلكتروستاتيكي ضعيف في موقع ربط الأتوميوسين.
دراسات في المختبر
يحدث الإنتاج في المختبر بطريقة متسلسلة:
وفي هذا السياق، يتم إجراء الدراسات التي تركز على تراكم وفقدان الوحدات الفرعية بواسطة الألياف الدقيقة في المختبر (أي في المختبر وليس على الأنظمة الخلوية) حيث تؤدي بلمرة الأكتين الناتج إلى نفس الأكتين F كما ينتج في الجسم الحي . و في الجسم الحي يتم التحكم العملية عن طريق الكثير من البروتينات من أجل جعلها تستجيب لمطالب الخلوية، وهذا يجعل من الصعب مراقبة الأوضاع الأساسية.
وفي السياق ذاته، أولاً ، هناك «مرحلة التنشيط»، عندما يحدث الترابط وتبادل الكاتيونات ثنائية التكافؤ في أماكن محددة على G-actin ، المرتبط بـ ATP. ينتج عن ذلك تغيير في التوافق ، يُسمى أحيانًا مونومر G * -actin أو F-actin لأنه يشبه إلى حد بعيد الوحدات الموجودة على الفتيل. هذا يجهزها لـ «طور التنوي»، حيث يؤدي الأكتين G إلى ظهور شظايا صغيرة غير مستقرة من F-actin تكون قادرة على البلمرة. يتم تشكيل الثنائيات والقواطع غير المستقرة في البداية. تبدأ «مرحلة الاستطالة» عندما يكون هناك عدد كبير بما فيه الكفاية من هذه البوليمرات القصيرة. في هذه المرحلة ، تتشكل الخيوط وتنمو بسرعة من خلال الإضافة القابلة للانعكاس لمونومرات جديدة في كلا الطرفين.أخيرًا ، يتم تحقيق توازن ثابت حيث يتم تبادل مونومرات G-actin عند طرفي الميكروفيلم دون أي تغيير في طوله الإجمالي. في هذه المرحلة الأخيرة ، يُعرَّف «التركيز الحرج C c» على أنه النسبة بين ثابت التجميع وثابت التفكك لـ G-actin ، حيث لا ينتج عن الديناميكية الخاصة بإضافة وإزالة الثنائيات والقواطع أي تغيير في طول الميكروفيلمنت. تحت في المختبر الظروف C ج هو 0.1 ميكرومتر، وهو ما يعني أنه في حدوث ارتفاع قيم البلمرة وفي انخفاض قيم يحدث التحلل.
التطبيقات
علاوةً على ذلك، تقنية النانو . تعمل أنظمة أكتين-ميوسين كمحركات جزيئية تسمح بنقل الحويصلات والعضيات في جميع أنحاء السيتوبلازم. من الممكن تطبيق الأكتين على تكنولوجيا النانو حيث تم تسخير قدرته الديناميكية في عدد من التجارب بما في ذلك تلك التي أجريت في أنظمة لا خلوية. الفكرة الأساسية هي استخدام الميكروفيلامين كمسارات لتوجيه المحركات الجزيئية التي يمكنها نقل حمولة معينة. يمكن استخدام الأكتين لتحديد دائرة يمكن من خلالها نقل الحمولة بطريقة أكثر أو أقل تحكمًا وتوجيهًا. من حيث التطبيقات العامة ، يمكن استخدامه للنقل الموجه للجزيئات للإيداع في مواقع محددة ، مما يسمح بالتجميع المتحكم فيه للبنى النانوية. يمكن تطبيق هذه السمات على العمليات المختبرية مثل المعامل على رقاقة ، وفي ميكانيكا المكونات النانوية وفي المحولات النانوية التي تحول الطاقة الميكانيكية إلى طاقة كهربائية.
وفي السياق ذاته، الصحة. بعض أليلات الأكتين تسبب الأمراض. لهذا السبب تم تطوير تقنيات للكشف عنها. وعلاوةً على ذلك، الأكتين يمكن استخدام علامة غير مباشرة في الأمراض الجراحية: من الممكن استخدام الاختلافات في نمط توزيعه في الأنسجة كعلامة للغزو في الأورام، التهاب الأوعية الدموية ، وغيرها من الشروط. علاوة على ذلك ، نظرًا لارتباط الأكتين الوثيق بجهاز الانقباض العضلي ، تقل مستوياته في العضلات الهيكلية عند ضمور هذه الأنسجة ، وبالتالي يمكن استخدامه كعلامة على هذه العملية الفسيولوجية.
وفي هذا الصدد، تكنولوجيا الغذاء . من الممكن تحديد جودة بعض الأطعمة المصنعة ، مثل النقانق ، عن طريق تحديد كمية الأكتين الموجودة في اللحوم المكونة. تقليديا ، تم استخدام طريقة تعتمد على اكتشاف 3-ميثيل هيستيدين في عينات متحللة مائيًا من هذه المنتجات ، حيث يوجد هذا المركب في السلسلة الثقيلة للأكتين و F-myosin (كلاهما مكونان رئيسيان للعضلات). الجيل من هذا المركب في يستمد الجسد من مثيلة من الحامض الاميني بقايا موجودة في كل من البروتينات.
من جانب آخر، يعتمد استخدام الأكتين كعنصر تحكم داخلي على افتراض أن تعبيره ثابت عمليًا ومستقل عن الظروف التجريبية. من خلال مقارنة تعبير الجين المعني بتعبير الأكتين ، يمكن الحصول على كمية نسبية يمكن مقارنتها بين التجارب المختلفة ، عندما يكون التعبير عن الأخير ثابتًا. تجدر الإشارة إلى أن الأكتين لا يتمتع دائمًا بالاستقرار المطلوب في تعبيره الجيني .
إضافةً إلى ذلك، يستعمل الأكتين في المختبرات العلمية والتكنولوجية كمسار للمحركات الجزيئية مثل الميوسين (سواء في الأنسجة العضلية أو خارجه) وكمكون ضروري للعمل الخلوي. يمكن كذلك استخدامه كأداة تشخيصية ، حيث ترتبط الكثير من المتغيرات الشاذة بظهور أمراض معينة.
علاوةً على ذلك، يستعمل الأكتين كعنصر تحكم داخلي في البقع الغربية للتأكد من أنه تم تحميل كميات متساوية من البروتين في كل ممر من الجل. في مثال اللطخة الموضح على الجانب الأيسر ، تم تحميل 75 ميكروغرام من البروتين الكلي في كل بئر. تم تفاعل اللطخة مع الجسم المضاد لـ β-actin (للحصول على تفاصيل أخرى عن اللطخة ، انظر المرجع )
الهيكل الثالث - المجالات
إضافةً إلى ذلك، ويتكون الهيكل العالي من قبل اثنين من المجالات المعروفة باسم الكبيرة والصغيرة، التي تكون مفصولة شق تتمحور حول موقع السندات مع ATP - ADP + P ط . يوجد أسفل هذا شق أعمق يسمى «الأخدود». في الولاية الأصلية، على الرغم من أسمائهم، كلاهما لهما عمق مماثل.
وفي السياق ذاته، الاصطلاح العادي في الطوبولوجي تعني الدراسات أن البروتين يظهر بأكبر مجال على الجانب الأيسر وأصغر مجال على الجانب الأيمن. في هذا الموضع، ينقسم النطاق الأصغر بدوره إلى قسمين: المجال الفرعي الأول (الموضع السفلي، المخلفات 1–32، 70-144، 338-374) والمجال الفرعي الثاني (الموضع العلوي، المخلفات 33-69). ينقسم النطاق الأكبر كذلك إلى قسمين: المجال الفرعي III (السفلي، المخلفات 145-180 و 270-337) والمجال الفرعي IV (الأعلى، المخلفات 181-269). يشار إلى المناطق المكشوفة للنطاقين الفرعيين الأول والثالث بالنهايات «الشائكة»، بينما تسمى المناطق المكشوفة للنطاقين الثاني والرابع بالنهايات «المدببة». تشير هذه التسمية إلى حقيقة أنه، نظرًا للكتلة الصغيرة للنطاق الفرعي الأكتين الثاني هو قطبي؛ ستتم مناقشة أهمية هذا أدناه في المناقشة حول ديناميكيات التجميع.يدعي بعض المؤلفين المجالات الفرعية Ia و Ib و IIa و IIb ،
الهيكل الخلوي
من جهة ثانية، شبكات الميكروفيلمنت - عادة ما تحتوي الخلايا الحيوانية على قشرة خلوية تحت غشاء الخلية تحتوي على عدد كبير من الخيوط الدقيقة ، مما يحول دون وجود العضيات . هذه الشبكة متصلة بالعديد من خلايا المستقبل التي تنقل الإشارات إلى خارج الخلية.
وفي السياق ذاته، كومة مدمجة من الصور (كنفوكل) تظهر خيوط الأكتين داخل الخلية. تم ترميز الصورة بالألوان في المحور z لتظهر في صورة ثنائية الأبعاد بارتفاعات يمكن العثور عليها داخل الخلايا.
وفي السياق ذاته، حزم الميكروفيلمنت - توجد هذه الألياف الدقيقة الطويلة للغاية في شبكات ، وبالاقتران مع بروتينات مقلصة مثل الميوسين غير العضلي ، فهي تشارك في حركة المواد على مستوى الخلايا.
وعلى صعيد آخر، بما في ذلك الأنواع غير العضلية والأدوية التي تعطل تنظيم F-actin (مثل السيتوكالاسين) تؤثر على نشاط هذه الخلايا. يشكل الأكتين 2٪ من إجمالي كمية البروتينات في خلايا الكبد ، و 10٪ في الخلايا الليفية ، و 15٪ فيالأميبات ، وما يصل إلى 50-80٪ في الصفائح الدموية المنشطة . هناك عدد من الأنواع المختلفة من الأكتين ذات الهياكل والوظائف المختلفة قليلاً. هذا يعني أن الأكتين موجود حصريًا في ألياف العضلات، بينما توجد الأنواع β وفي خلايا أخرى. علاوةً على ذلك ، نظرًا لأن الأنواع الأخيرة لديها معدل دوران مرتفع ، فإن الغالبية منها توجد خارج الهياكل الدائمة. هذا يعني أن الميكروفيلامين الموجود في الخلايا غير الخلايا العضلية موجود في ثلاثة أشكال:
تشارك الألياف الدقيقة في حركة جميع الخلايا المتنقلة ،
ومن جهة أخرى، حلقات الأكتين الدورية - تم العثور مؤخرًا على بنية دورية مبنية من حلقات أكتين متباعدة بشكل متساوٍ على وجه التحديد في المحاور (وليس التشعبات). في هذا الهيكل، وحلقات الأكتين، جنبا إلى جنب مع إسبكترن tetramers التي تصل المجاورة الأكتين الخواتم، وتشكيل متماسك الهيكل الخلوي التي تدعم غشاء محور عصبي. قد تنظم دورية الهيكل كذلك قنوات أيونات الصوديوم في المحاور.
علم الوراثة
وعلى صعيد آخر، على الرغم من أن أغلب الخمائر تحتوي على جين أكتين واحد فقط، فإن حقيقيات النوى الأعلى، بشكل عام، تعبر عن الكثير من الأشكال الإسوية من الأكتين المشفرة بواسطة عائلة من الجينات ذات الصلة. تحتوي الثديياتعلى ما لا يقل عن ستة أشكال إسوية أكتين مشفرة بواسطة جينات منفصلة، والتي تنقسم إلى ثلاث فئات (ألفا، وبيتا ، وجاما) بحسب نقاطها الكهربية . بشكل عام ، توجد الأكتينات ألفا في العضلات (α-skeletal ، α-aortic soft ، α-cardiac)، في حين أن الأشكال الإسوية بيتا وجاما بارزة في الخلايا غير العضلية (β-cytoplasmic ، γ1-cytoplasmic ، γ2- معوي أملس). على الرغم من تسلسل الأحماض الأمينية وفي المختبرتتشابه خصائص الأشكال الإسوية إلى حد كبير ، ولا يمكن لهذه الأشكال الإسوية أن تحل تمامًا محل بعضها البعض في الجسم الحي .
وعلى صعيد آخر، . عليها إلى حدّ كبير خلال التطور لأنه يتفاعل مع عدد كبير من البروتينات الأخرى. يحتوي على 80.2 ٪ من الحفظ المتسلسل على مستوى الجينات بين Homo sapiens و Saccharomyces cerevisiae (نوع من الخميرة)، و 95 ٪ الحفاظ على الهيكل الأساسي لمنتج البروتين.
ومن جهة أخرى، يحتوي جين الأكتين النموذجي على نحو 100 نيوكليوتيد 5 'UTR ، ومنطقة مترجمة 1200 نيوكليوتيد ، و 200 نيوكليوتيد 3' UTR . يتم مقاطعة غالبية جينات الأكتين عن طريق الإنترونات ، مع ما يصل إلى ستة إنترونات في أي من 19 موقعًا متميزًا. يجعل الحفظ العالي للعائلة الأكتين النموذج المفضل للدراسات التي تقارن بين نماذج الإنترونات المبكرة والإنترونات المتأخرة لتطور الإنترون.
ومن جهة أخرى، كل غير كروية بدائيات النوى ويبدو أن تمتلك جينات مثلMreB ، التي ترميز المتماثلات الأكتين. هذه الجينات مطلوبة للحفاظ على شكل الخلية. يقوم الجين المشتق من البلازميد بارم بتشفير بروتين شبيه بالأكتين يكون شكلَهُ المبلمر غير مستقر ديناميكيًا ، ويبدو أنه يقسم DNAالبلازميد إلى خلايا ابنته أثناء انقسام الخلية بواسطة آلية مماثلة لتلك المستعملة بواسطة الأنابيب الدقيقة في الانقسام حقيقية النواة . تم العثور على الأكتين في كل من الشبكيات الإندوبلازمية الملساء والخشنة.
كان الأكتين واحدًا من أكثر البروتينات التي تم الحفاظ
ديناميات التجميع
البروتينات المرتبطة
من جانب آخر، Profilin ، هو بروتين عصاري خلوي بوزن جزيئي 15 كيلو دالتون ، والذي يرتبط كذلك بـ G-actin-ATP أو -ADP بقياس متكافئ 1: 1، ولكن له وظيفة مختلفة لأنه يسهل استبدال نيوكليوتيدات ADP بواسطة ATP . كما أنه متورط في وظائف خلوية أخرى ، مثل ربط تكرارالبرولين في البروتينات الأخرى أو الدهون التي تعمل بمثابة رسل ثانوي . تقوم البروتينات الأخرى التي ترتبط بالأكتين بتنظيم طول الألياف الدقيقة عن طريق قطعها ، مما يؤدي إلى ظهور نهايات نشطة جديدة للبلمرة. مثلًا ، إذا تم قطع خيوط دقيقة ذات نهايتين مرتين ، فسيكون هناك ثلاثة خيوط دقيقة جديدة بستة أطراف. هذا الوضع الجديد يفضل ديناميكيات التجميع والتفكيك. ولعل أبرز هذه البروتينات هي gelsolin و cofilin . هذه البروتينات أولا تحقيق خفض ملزمة لمونومر الأكتين تقع في البوليمر أنها ثم تغيير مونومر الأكتين في التشكل في حين تبقى منضمة إلى نهاية (+) التي تم إنشاؤها حديثا. هذا له تأثير في إعاقة إضافة أو تبادل وحدات فرعية جديدة من G-actin. يتم تشجيع إزالة البلمرة حيث أن النهايات (-) غير مرتبطة بأي جزيء آخر.
وفي السياق ذاته، تم العثور على مجمع Arp2 / 3 على نطاق واسع في جميعالكائنات حقيقية النواة . وتتكون من سبع وحدات فرعية ، بعضها يمتلك طوبولوجيا ترتبط بوضوح بوظيفتها البيولوجية: اثنتان من الوحدات الفرعية ، ARP2 و ARP3 ، لها بنية مشابهة لمونومرات الأكتين. يسمح هذا التناظر لكلا الوحدتين بالعمل كعوامل تنوي في بلمرة G-actin و F-actin. هذا المركب مطلوب كذلك في عمليات أكثر تعقيدًا مثل إنشاء الهياكل التغصنية وأيضًا في التفاغر (إعادة توصيل بنيتين متفرعتين تم ربطهما سابقًا ، مثل الأوعية الدموية).
كذلك، تغطي البروتينات الأخرى التي ترتبط مع الأكتين أطراف F-actin من أجل تثبيتها ، لكنها غير قادرة على كسرها. أمثلة على هذا النوع من البروتين هي CapZ ، والتي تربط النهايات (+) اعتمادًا على مستويات الخلية من Ca 2+ / calodulin . تعتمد هذه المستويات على الإشارات الداخلية والخارجية للخلية وتشارك في تنظيم وظائفها البيولوجية). مثال آخر هو تروبومودولين (الذي يرتبط بالنهاية (-)). Tropomodulin في الأساس يعمل على استقرار F-الأكتين موجودة في اللييفات العضلية تقدم في العضلات ساركومير ، وهي الهياكل التي تتميز استقرارها كبير.
وعلى صعيد آخر، حصريًا من الأكتين ، فالبروتينات الأخرى مطلوبة لتكوينه واستمراريته ووظيفته. تسمى هذه البروتينات بروتيناتربط الأكتين (ABP) وهي تشارك في بلمرة الأكتين ، وإزالة البلمرة ، والاستقرار ، والتنظيم في حزم أو شبكات ، والتجزئة ، والتدمير. تنوع هذه البروتينات يُعتقد أن الأكتين هو البروتين الذي يشارك في أكبر عدد من تفاعلات البروتين والبروتين . مثلًا ، توجد عناصر عزل G-actin التي تعيق دمجها في الميكروفيلامين. هناك كذلك بروتينات تحفز البلمرة أو تعطي تعقيدًا لشبكات التركيب.
لا يتكون الهيكل الخلوي للأكتين في الجسم الحي
ومن ناحية أخرى، Thymosin β-4 هو بروتين 5 كيلو دالتون يمكن أن يرتبط بـ G-actin-ATP في 1: 1 متكافئ . مما يعني أن وحدة واحدة من ثيموسين β-4 ترتبط بوحدة واحدة من G-actin. يتمثل دوره في إعاقة دمج المونومرات في البوليمر المتنامي.
الهيكل الأساسي
إضافةً إلى ذلك، حدد Elzinga وزملاؤه لأول مرة تسلسل الببتيد الكامل لهذا النوع من الأكتين في عام 1973، مع عمل لاحق لنفس المؤلف أضاف مزيدًا من التفاصيل إلى النموذج. يحتوي على 374 بقايا من الأحماض الأمينية . في N-محطة هي غاية الحمضية ويبدأ مع acetyled اسبارتاتي في مجموعة الأمينية. في حين أن C-محطة هي القلوية وشكلت من قبلالفنيل الأنين يسبقه السيستين، والتي لديها درجة من الأهمية الوظيفية. كلا الطرفين على مقربة من النطاق الفرعي I. شذوذ N τ -methylhistidineيقع في الموقع 73.
الوظائف والموقع
علاوةً على ذلك، تشكل خيوط الأكتين ("F-actin" أو الخيوط الدقيقة) عناصر أساسية في الهيكل الخلوي حقيقية النواة ، قادرة على الخضوع لديناميكيات البلمرة وإزالة البلمرة بسرعة كبيرة. تشكل خيوط الأكتين في أغلب الخلايا شبكات واسعة النطاق والتي تعد ضرورية للعديد من الوظائف الرئيسية في الخلايا:
من جانب آخر، يتيح التجميع والتفكيك السريع لشبكة الأكتين للخلايا إمكانية الترحيل (ترحيل الخلية).
من جانب آخر، توفر أنواع مختلفة من شبكات الأكتين (المصنوعة من خيوط الأكتين) الدعم الميكانيكي للخلايا ، وتوفر طرقًا للتهريب عبر السيتوبلازم للمساعدة في نقل الإشارة.
في هذا الإطار، تم العثور على بروتين الأكتين في كل من السيتوبلازم والنواة خلية . يتم تنظيم موقعه عن طريق مسارات تحويل إشارة غشاء الخلية التي تدمج المحفزات التي تتلقاها الخلية لتحفيز إعادة هيكلة شبكات الأكتين استجابةً لذلك. في Dictyostelium ، تم العثور على phospholipase D للتدخل في مسارات فوسفات الإينوزيتول. خيوط الأكتين مستقرة بشكل خاص ووفرة في ألياف العضلات . داخل قسيم عضلي (الوحدة المورفولوجية والفسيولوجية الأساسية لألياف العضلات) الأكتين موجود في كل من العصابات I و A ؛ الميوسين موجود كذلك في الأخير.
كذلك، في الخلايا غير العضلية ، يجب أن يكون مسار نقل البضائع الميوسينات (الميوسينات غير التقليدية) مثل الميوسين الخامس والسادس. تستعمل الميوسينات غير التقليدية التحلل المائي ATP لنقل البضائع ، مثلالحويصلات والعضيات ، بطريقة موجهة أسرع بكثير من الانتشار. يسير Myosin V باتجاه النهاية الشائكة لخيوط الأكتين ، بينما يسير الميوسين السادس باتجاه النهاية المدببة. يتم ترتيب أغلب خيوط الأكتين مع الطرف الشائك باتجاه الغشاء الخلوي والنهاية المدببة باتجاه الداخل الخلوي. يسمح هذا الترتيب للميوسين V بأن يكون محركًا فعالاً لتصدير الشحنات ، وأن يكون الميوسين السادس محركًا فعالاً للاستيراد.
ومن ناحية أخرى، في خلايا العضلات الميتازوان ، تكون الدعامة التي تولد عليها بروتينات الميوسين القوة لدعم تقلص العضلات.
التنوي والبلمرة
في هذا الإطار، نمو شعيرات الأكتين يمكن ينظمها ثيموسين و profilin . يرتبط الثيموسين بـ G-actin لعزل عملية البلمرة ، بينما يرتبط البروفيلين بـ G-actin لتبادل ADP لـ ATP ، مما يعزز الإضافة الأحادية إلى الشائكة ، فضلًا عن نهاية خيوط F-actin.
من جانب آخر، F-actin قوي وديناميكي. على عكس البوليمرات الأخرى ، مثل الحمض النووي ، الذي ترتبط عناصره المكونة معروابط تساهمية ، يتم تجميع مونومرات خيوط الأكتين بواسطة روابط أضعف. تحل الروابط الجانبية مع المونومرات المجاورة هذه الحالة الشاذة ، والتي من الناحية النظرية يجب أن تضعف الهيكل حيث يمكن كسرها عن طريق التحريض الحراري. علاوةً على ذلك ، تمنح الروابط الضعيفة ميزة أن الأطراف الخيطية يمكنها بسهولة تحرير أو دمج المونومرات. وهذا يعني أنه يمكن إعادة تشكيل الخيوط بسرعة ويمكن أن تغير البنية الخلوية استجابةً لمحفز بيئي. التي ، جنبا إلى جنب مع الكيمياء الحيوية الآلية التي يتم بواسطتها تُعرف باسم «ديناميكية التجميع».
عوامل النواة ضرورية لتحفيز بلمرة الأكتين. أحد هذه
من جهة ثانية، العوامل هو مركب Arp2 / 3، الذي يحاكي ثنائيات G-actin من أجل تحفيز التنوي (أو تكوين الثلث الأول) لـ G-actin الأحادي. و Arp2 / 3 معقدة تربط لالأكتين خيوط في 70 درجة لتشكيل فروع جديدة الأكتين خارج القائمة الأكتين خيوط. التنوي Arp2 / 3 بوساطة ضروري للهجرة الخلوية الموجهة. كذلك ، تربط خيوط الأكتين نفسها بـ ATP ، ويؤدي التحلل المائي لـ ATP إلى زعزعة استقرار البوليمر.
الجينات
تشمل الجينات البشرية التي تشفر بروتينات الأكتين ما يلي:
انكماش العضلات
ومن جهة أخرى، هيكل قسيم عضلي ، الوحدة المورفولوجية والوظيفية الأساسية للعضلات الهيكلية التي تحتوي على الأكتين
الإكتشاف والتحقيق المبكر
وفي هذا الصدد، في تسلسل الأحماض الأمينية تم الانتهاء من الأكتين التي كتبها M. ايلزينجا وزملاء العمل في سنة 1973. والتركيب البلوري تم حلها من G-الأكتين في عام 1990 من قبل Kabsch والزملاء. في العام نفسه، اقترح هولمز وزملاؤه نموذجًا لـ F-actin بعد تجارب باستخدام التبلور المشترك مع بروتينات مختلفة. تم استخدام إجراء التبلور المشترك مع بروتينات مختلفة بشكل متكرر خلال السنوات التالية، حتى عام 2001 تمت بلورة البروتين المعزول مع ADP. ومع ذلك، لا يوجد حتى الآن هيكل عالي الدقة للأشعة السينية لـ F-actin. كان تبلور F-actin ممكنًا بسبب استخدام رودامينمتقارن يعيق البلمرة عن طريق منع الحمض الأميني cys-374 . توفت كريستين أوريول-تدوين في نفس العام الذي تبلور فيه الأكتين لأول مرة، لكنها كانت الباحثة التي تبلورت الأكتين لأول مرة في عام 1977 في غياب البروتينات الملزمة للأكتين (ABPs). ومع ذلك، كانت البلورات الناتجة صغيرة جدًا بالنسبة للتقنية المتاحة في ذلك الوقت.
من جانب آخر، تمت ملاحظة الأكتين لأول مرة تجريبيًا في سنة 1887 بواسطة WD Halliburton ، الذي استخرج بروتينًا من العضلات قام بتخثر مستحضرات الميوسين التي أطلق عليها اسم «تخمير الميوسين». ومع ذلك، لم يتمكن هاليبيرتون من تحسين النتائج التي توصل إليها، ويعزى اكتشاف الأكتين بدلاً من ذلك إلى برونو فيرينك ستراوب، عالم الكيمياء الحيوية الشاب الذي يعمل في مختبر ألبرت زينت جيورجي في معهد الكيمياء الطبية بجامعة سيغيد.المجر.
ومن جهة أخرى، متابعة لاكتشاف Ilona Banga & Szent-Györgyi في سنة 1941 أن التخثر يحدث فقط في بعض عمليات استخراج الميسوسين ويتم عكسه عند إضافة ATP ، حدد ستروب الأكتين وتنقيته من مستحضرات الميوسين التي تخثرت بالفعل. بناءً على طريقة استخلاص بانجا الأصلية، طور تقنية جديدة لاستخراج بروتين العضلات التي سمحت له بعزل كميات كبيرة من الأكتين النقي نسبيًا، والتي نُشرت عام 1942. طريقة ستروب هي نفسها المستعملة في المعامل اليوم. نظرًا لأن بروتين ستراوب كان ضروريًا لتنشيط تخثر الميوسين، فقد أطلق عليه اسمالأكتين . إدراكًا من Szent- Györgyi أنمستحضرات الميوسين المتخثر من Banga تحتوي على الأكتين كذلك، فقد أطلق على خليط البروتينات أكتموسين.
في هذا الإطار، أدت الأعمال العدائية في الحرب العالمية الثانية إلى أن Szent-Gyorgyi لم يكن قادرًا على نشر أعمال مختبره في المجلات العلمية الغربية. لذلك أصبح الأكتين معروفًا جيدًا في الغرب فقط في سنة 1945، عندما نُشرت ورقتهم كملحق لـ Acta Physiologica Scandinavica . واصلت ستروب للعمل على الأكتين، وفي عام 1950 ذكرت أن الأكتين تحتوي ملزمة ATP ، وأنه خلال البلمرة من البروتين إلى خيوط دقيقة، والنوكليوتيدات وتحلل إلى ADP وغير العضوية الفوسفات (التي تظل مرتبطة بالميكروفيلمنت). اقترح ستراوب أن تحول الأكتين المرتبط بـ ATP إلى الأكتين المرتبط بـ ADP يلعب دورًا في تقلص العضلات. في الواقع، هذا صحيح فقط في العضلات الملساء، ولم يتم دعمه من خلال التجارب حتى عام 2001.
وفي هذا السياق، على الرغم من عدم وجود نموذج عالي الدقة للشكل الخيطي للأكتين في الوقت الحالي، فقد تمكن فريق صوايا في سنة 2008 من إنتاج نموذج أكثر دقة لهيكله استنادًا إلى بلورات متعددة من ثنائيات الأكتين التي ترتبط في أماكن مختلفة. تم تنقيح هذا النموذج لاحقًا بواسطة صوايا ولورنز.نهج أخرى مثل استخدام المجهر البرد الإلكترون والإشعاع السنكروترون سمحت مؤخرا زيادة دقة وفهم أفضل لطبيعة التفاعلات والتغيرات متعلق بتكوين المتورطين في تشكيل الأكتين خيوط.
دور التحلل المائي ATP
من جانب آخر، كما هو موضح أعلاه ، على الرغم من أن الأكتين يحلل ATP ، فإن كل شيء يشير إلى حقيقة أن ATP ليس مطلوبًا لتجميع الأكتين ، بالنظر إلى أنه من ناحية ، يحدث التحلل المائي بشكل أساسي داخل الشعيرة ، ومن ناحية أخرى يمكن لـ ADP كذلك تحريض البلمرة. هذا يطرح السؤال عن فهم أي عملية غير مواتية للديناميكا الحرارية تتطلب مثل هذا الإنفاق الهائل للطاقة. تتكون دورة الأكتين ، التي تجمع بين التحلل المائي لـ ATP إلى بلمرة الأكتين ، من الإضافة التفضيلية لمونومرات G-actin-ATP إلى نهاية الشعيرة الشائكة ، والتفكيك المتزامن لمونومرات F-actin-ADP عند الطرف المدبب حيث يكون ADP لاحقًا تحولت إلى ATP ، وبالتالي إغلاق الدورة. يُعرف هذا الجانب من تكوين خيوط الأكتين «بالمطاحن».
وعلى صعيد آخر، إذا قارنا الخيوط التي تحتوي فقط على ADP-Actin مع تلك التي تتضمن ATP ، في السابق تكون الثوابت الحرجة متشابهة في كلا الطرفين ، بينما C c للنيوكليوتيدات الأخرى مختلفة: عند الطرف (+) Cc + = 0.1 μM ، بينما في الطرف (-) Cc - = 0.8 ميكرومتر ، مما يؤدي إلى المواقف التالية:
من جهة ثانية، لذلك من الممكن استنتاج أن الطاقة الناتجة عن التحلل المائي تُستعمل لإنشاء «حالة ثابتة» حقيقية ، أي تدفق ، بدلاً من توازن بسيط ، ديناميكي ، قطبي ، ومتصل بالخيوط. هذا يبرر إنفاق الطاقة لأنه يعزز الوظائف البيولوجية الأساسية. فضلًا عن ذلك ، يتم الكشف عن تكوين أنواع المونومر المختلفة بواسطة بروتينات ربط الأكتين ، والتي تتحكم كذلك في هذه الديناميكية ، كما سيتم وصفه في القسم التالي.
كذلك، بالنسبة لتركيزات G-actin-ATP الأكبر من Cc - ينمو الخيط الدقيق عند كلا الطرفين.
وفي هذا السياق، يتحلل ATP بالماء بسرعة نسبيًا بعد إضافة مونومر G-actin إلى الفتيل. هناك نوعان من الفرضيات حول كيفية حدوث ذلك ؛ على مؤشر ستوكاستيك ، مما يوحي بأن التحلل عشوائيا يحدث بطريقة ما في بعض الطريق تتأثر جزيئات المجاورة؛ والمتجهية ، مما يشير إلى أن التحلل المائي يحدث فقط بجوار الجزيئات الأخرى التي تم تحلل ATP فيها بالفعل. في كلتا الحالتين ، لا يتم تحرير P iالناتج ؛ يبقى لبعض الوقت مرتبطًا بشكل غير تساهمي بـ ADP في أكتين. بهذه الطريقة توجد ثلاثة أنواع من الأكتين في الشعيرة: ATP- Actin و ADP + P i -Actin و ADP-Actin. تعتمد كمية كل نوع من هذه الأنواع الموجودة في خيوط على طوله وحالته: مع بدء الاستطالة ، يحتوي الخيط على كمية متساوية على وجه التقريب من مونومرات الأكتين المرتبطة بـ ATP و ADP + P i وكمية صغيرة من ADP-Actin عند (-) النهاية. عندما يتم الوصول إلى الحالة الثابتة ، ينعكس الموقف ، مع وجود ADP على طول غالبية الفتيل والمنطقة الأقرب للنهاية (+) التي تحتوي على ADP + P i ومع وجود ATP فقط عند الطرف.
ومن جهة أخرى، بالنسبة لتركيزات G-actin-ATP أقل من Cc - لكن الاستطالة أكبر من Cc + يحدث عند النهاية (+).
وعلى صعيد آخر، بالنسبة لتركيزات G-actin-ATP أقل من Cc + لا يحدث استطالة في الفتيل.
من جانب آخر، تم العثور على تشكيل الميكروفيلم عن طريق جهاز المشي ليكون غير نمطي في الستريوسيليا . في هذه الحالة ، يكون التحكم في حجم الهيكل قميًا تمامًا ويتم التحكم فيه بطريقة ما عن طريق التعبير الجيني ، أي من خلال الكمية الإجمالية لمونومر البروتين المركب في أي لحظة معينة.
آلية التحفيز ATPase
من جهة ثانية، لا تزال التفاصيل الجزيئية الدقيقة لآلية التحفيز غير مفهومة تمامًا. على الرغم من وجود الكثير من الجدل حول هذه المسألة، يبدو من المؤكد أن التشكل «المغلق» مطلوب للتحلل المائي لـ ATP ، ويُعتقد أن البقايا المتضمنة في العملية تتحرك إلى المسافة المناسبة. و حمض الجلوتاميك Glu137 هي واحدة من بقايا الرئيسية، والذي يقع في نطاق فرعي 1. وتتمثل مهمتها في ربط جزيء الماء الذي ينتج هجوم أليف النواة على γ-الفوسفات ATP وفي السندات، في حين أن النيوكليوتيد مرتبط بشدة بالمجالات الفرعية 3 و 4. يرجع بطء العملية التحفيزية إلى المسافة الكبيرة والموضع المنحرف لجزيء الماء بالنسبة إلى المادة المتفاعلة. من المحتمل جدًا أن يؤدي التغيير التوافقي الناتج عن دوران المجالات بين شكلي G و F في أكتين إلى تحريك Glu137 أقرب مما يسمح بالتحلل المائي. يشير هذا النموذج إلى أن البلمرة ووظيفة ATPase سيتم فصلهما على الفور. و «فتح» إلى «مغلقة» اتسمت تحول بين G و F الأشكال وآثارها على الحركة النسبية للعديد من مخلفات مفتاح وتشكيل الأسلاك المياه في الديناميات الجزيئية و QM / MM المحاكاة.
من جانب آخر، الأكتين هو أتباز، مما يعني أنه هو الإنزيم الذيhydrolyzes ATP. تتميز هذه المجموعة من الإنزيمات بمعدلات تفاعلها البطيئة. من المعروف أن ATPase «نشط»، أي أن سرعته تزداد بنحو 40.000 مرة عندما يشكل الأكتين جزءًا من خيوط. تبلغ القيمة المرجعية لمعدل التحلل المائي هذا في ظل الظروف المثالية نحو 0.3ثانية −1 . فيما بعد، يظل P i مرتبطًا بالأكتين بجوار ADP لفترة طويلة، حتى يتم تحريره بشكل تعاوني من داخل الشعيرة.
علم الأمراض الجزيئي
من جهة ثانية، تمتلك غالبية الثدييات ستة جينات أكتين مختلفة . من بين هؤلاء ، هناك رمزان للهيكل الخلوي (ACTB و ACTG1) في حين أن الأربعة الأخرى متورطة في العضلات المخططة الهيكلية (ACTA1)، وأنسجة العضلات الملساء (ACTA2)، وعضلات الأمعاء (ACTG2) وعضلة القلب (ACTC1). يشارك الأكتين الموجود في الهيكل الخلوي في الآلياتالمسببة للأمراض للعديد من العوامل المعدية ، بما في ذلكفيروس نقص المناعة البشرية . الغالبية العظمى منالطفراتالتي تؤثر على الأكتين هي طفرات نقطية لها تأثير مهيمن ، باستثناء ستة طفرات متضمنة في الاعتلال العضلي النيمالي. هذا لأنه في كثير من الحالات يعمل متحور مونومر الأكتين «كغطاء» عن طريق منع استطالة F-actin.
مثبطات كيميائية
إضافةً إلى ذلك، Phalloidin ، هو سم تم عزله من فطر قبعة الموت Amanita phalloides . إنه يرتبط بالواجهة بين مونومرات الأكتين المجاورة في بوليمر F-actin ، مما يمنع إزالة البلمرة.
من جهة ثانية، وهناك عدد من السموم التي تتداخل مع ديناميات الأكتين، وإما عن طريق منعه من البلمرة (latrunculin ومثبط حركة الخلايا D) أو عن طريق تثبيت ذلك (phalloidin):
في هذا الإطار، Latrunculin هو مادة سامة تنتج عن الإسفنج . يرتبط بـ G-actin ويمنعه من الارتباط بالألياف الدقيقة.
ومن ناحية أخرى، Cytocalasin D ، هو قلويد تنتجه الفطريات ، والذي يرتبط بنهاية (+) من F-actin مما يمنع إضافة مونومرات جديدة. تم العثور على Cytocalasin D لتعطيل ديناميكيات الأكتين ، وتنشيط البروتين p53 في الحيوانات.
في العضلات الملساء
إضافةً إلى ذلك، هناك نوعان من الأشكال الإسوية التي ترمز للأكتين في أنسجة العضلات الملساء :
وفي هذا السياق، أكواد ACTG2 لأكبر شكل إسوي أكتين ، والذي يحتوي على تسعة إكسونات ، أحدها ، الموجود في نهاية 5، غير مترجم. وهو أكتين بيتا يتم التعبير عنه في العضلة الملساء المعوية. لم يتم العثور على طفرات في هذا الجين تتوافق مع الأمراض ، على الرغم من أن المصفوفات الدقيقة أظهرت أن هذا البروتين يتم التعبير عنه في كثير من الأحيان في الحالات التي تقاوم العلاج الكيميائي باستخدام السيسبلاتين.
وفي هذا الصدد، أكواد ACTA2 لأكتين يقع في العضلات الملساء ، وكذلك في الأوعية الدموية الملساء. لقد لوحظ أن طفرة MYH11 يمكن أن تكون مسؤولة عن 14٪ على الأقل من حالات تمدد الأوعية الدموية الأبهري الصدري الوراثيوخاصة النوع 6. وذلك لأن المتغير المتحور ينتج مجموعة خيطية غير صحيحة وقدرة منخفضة على تقلص العضلات الملساء الوعائي. تدهور وسائل الإعلام الأبهر وقد سجلت في هؤلاء الأفراد، مع مناطق الفوضى وتضخم وكذلك تضيق في الشريان الأورطي والوعائية الأوعية . يتزايد عدد الآلام التي يتورط فيها الجين. لقد ارتبط بمرض موياموياويبدو من المرجح أن بعض الطفرات في تغاير الزيجوت يمكن أن تمنح الاستعداد للعديد من أمراض الأوعية الدموية ، مثل تمدد الأوعية الدموية الأبهري الصدري وأمراض القلب الإقفارية . الأكتين الموجود في العضلات الملساء هو كذلك علامة مثيرة للاهتمام لتقييم تقدم تليف الكبد .
مكافئات في البكتيريا
في هذا الإطار، وبالتالي تمتلك البكتيريا على الهيكل الخلوي مع العناصر المتجانسة لالأكتين (مثلًا، MreB، ألفا، بارم ، FtsA ، وMamK)، على الرغم من أن الأمينية تسلسل الحمض لهذه البروتينات يحيد عن تلك الموجودة في الخلايا الحيوانية. ومع ذلك ، فإن هذه البروتينات لديها درجة عالية من التشابه الهيكلي مع الأكتين حقيقيات النوى.تعتبر الأغشية الدقيقة عالية الديناميكية التي يتكون منها تجميع MreB و ParM ضرورية لحيوية الخلية وتشارك في تكوين الخلية ، وفصل الكروموسومات ، وقطبية الخلية. ParM هو متماثل أكتين يتم ترميزه في بلازميد ويشارك في تنظيم DNA البلازميد. يمكن أن تشكل ParMs من البلازميدات البكتيرية المختلفة هياكل حلزونية متنوعة بشكل مذهل تتكون من اثنين أو أربعة خيوط للحفاظ على الميراث البلازميد الأمين.
وفي السياق ذاته، و الهيكل الخلوي البكتيري قد لا تكون معقدة مثل تلك التي وجدت في حقيقيات النوى . ومع ذلك ، فإنه يحتوي على بروتينات تشبه إلى حد كبير مونومرات الأكتين والبوليمرات. يتبلمر البروتين البكتيري MreB في خيوط رقيقة غير حلزونية وأحيانًا في هياكل حلزونية مشابهة لـ F-actin. علاوة على ذلك ، فإن هيكله البلوري مشابه جدًا لهيكل G-actin (من حيث تشكيله ثلاثي الأبعاد)، حتى أن هناك أوجه تشابه بين خيوط MreB الأولية و F-actin. يحتوي الهيكل الخلوي البكتيري كذلك على بروتينات FtsZ ، والتي تشبه التوبولين .
خيوط الأكتين
ميوسين (بروتين)
انقباض عضلي
ترتبط الصورة التقليدية لوظيفة الأكتين بصيانة الهيكل
ومن جهة أخرى، الحركية الخلوية . يتضمن انقسام الخلايا في الخلايا الحيوانية والخمائر عادةً فصل الخلية الأم إلى خليتين ابنتيتين من خلال انقباض المحيط المركزي. تتضمن هذه العملية حلقة مقيدة تتكون من الأكتين والميوسين والأكتينين ألفا . في الخميرة الانشطاريةSchizosaccharomyces pombe ، يتشكل الأكتين بنشاط في الحلقة الضيقة بمشاركة Arp3 ، و forminCdc12 ، و profilin ، و WASp ، جنبًا إلى جنب مع الألياف الدقيقة مسبقة التشكيل. بمجرد إنشاء الحلقة ، يتم الحفاظ على الهيكل من خلال التجميع والتفكيك المستمر بمساعدة Arp2 / 3المعقدة والفورمينات ، هو المفتاح لإحدى العمليات المركزية للحركة الخلوية. مجموع الحلقة المقلصة ، وجهاز المغزل ، والأنابيب الدقيقة ، والمواد المحيطية الكثيفة تسمى «الجسم الفليميني» أو «الجسم الوسيط».
ومن ناحية أخرى، الخلوي ، وبالتالي تنظيم وحركة العضيات ، فضلاً عن تحديد شكل الخلية. ومع ذلك ، فإن الأكتين له دور أوسع في فسيولوجيا الخلايا حقيقية النواة ، إلى جانب وظائف مماثلة في بدائيات النوى .
علاوةً على ذلك، موت الخلايا المبرمج . أثناء موت الخلية المبرمج ، تحلل عائلة البروتياز ICE / ced-3 (أحد بروتياز محول إنترلوكين -1 β) الأكتين إلى جزأين في الجسم الحي ؛ إحدى الشظايا 15 كيلو دالتون والأخرى 31 كيلو دالتون.يمثل هذا إحدى الآليات التي تشارك في تدمير قابلية الخلية للحياة التي تشكل أساس موت الخلايا المبرمج. وقد ثبت كذلك أن كالب البروتياز متورط في هذا النوع من تدمير الخلايا. تمامًا كما ثبت أن استخدام مثبطات الكالباين يقلل من تحلل بروتين الأكتين وتدهورالحمض النووي (عنصر آخر من العناصر المميزة للاستماتة). من ناحية أخرى ، فإن التوتريتسبب التسبب في موت الخلايا المبرمج في إعادة تنظيم الهيكل الخلوي للأكتين (والذي يتضمن كذلك بلمرة ه)، مما يؤدي إلى ظهور هياكل تسمى ألياف الإجهاد ؛ يتم تنشيط هذا عن طريق مسار كيناز MAP .
وفي هذا السياق، ديناميات ستريوسيليا . تقوم بعض الخلايا بتطوير نواتج حشوية دقيقة على سطحها لها وظيفة حسية ميكانيكية. مثلًا ، هذا النوع من العضية موجود في عضو كورتي الموجود في الأذن . السمة الرئيسية لهذه الهياكل هي أنه يمكن تعديل طولها. تشتمل البنية الجزيئية للأشكال الفراغية على قلب أكتينباراكريستالين في توازن ديناميكي مع المونومرات الموجودة في العصارة الخلوية المجاورة. يوجد الميوسين من النوع السادس والسابع أ في جميع أنحاء هذا القلب ، بينما يوجد الميوسين XVa في أطرافه بكميات تتناسب مع طول الستريوسيليا.
وعلى صعيد آخر، التصاق الخلايا والتنمية . الالتصاق بين الخلايا هو سمةمن سمات الكائنات متعددة الخلايا التي تمكن الأنسجة التخصص وبالتالي يزيد من تعقيد الخلية. يتضمن التصاق الظهارة الخلوية الهيكل الخلوي الأكتيني في كل من الخلايا المرتبطة فضلًا عن الكاديرينات التي تعمل كعناصر خارج الخلية مع الاتصال بين الاثنين بوساطة الكاتينين . للتدخل في ديناميكيات الأكتين تداعيات على تطور الكائن الحي ، في الواقع يعتبر الأكتين عنصرًا حاسمًا بحيث تتوفر أنظمة الجينات الزائدة عن الحاجة . مثلًا ، إذا كانت α-actinin أودبق تمت إزالة عامل الجينات فيDictyostelium الأفراد لا تظهر الشاذ النمط الظاهري ربما يرجع ذلك إلى حقيقة أن كل من البروتينات يمكن أن تؤدي وظيفة أخرى. ومع ذلك ، فإن تطور الطفرات المزدوجة التي تفتقر إلى كلا النوعين من الجينات يتأثر.
كذلك، شرالية جوهرية . لقد تورطت شبكات الأكتوميوسين في توليد شرولية داخلية في الخلايا الفردية. يمكن للخلايا التي تنمو على الأسطح اللولبية إظهار انحياز اتجاهي لليسار / لليمين يعتمد على الأكتوميوسين.
في هذا الإطار، تعديل التعبير الجيني تؤثر حالة بلمرة أكتين على نمطالتعبير الجيني . في سنة 1997، تم اكتشاف أن إزالة البلمرة التي تتم بوساطة السيتوكالاسين D في خلايا شوان تسبب نمطًا معينًا من التعبير عن الجينات المشاركة في عملية تكوّن النخاع في هذا النوع منالخلايا العصبية . ثبت أن F-actin يعدلالترنسكريبتوم في بعض مراحل حياة الكائنات وحيدة الخلية ، مثل فطر المبيضات البيض . علاوةً على ذلك ، تلعب البروتينات المشابهة للأكتين دورًا تنظيميًا أثناء تكوين الحيوانات المنوية في الفئران وفي الخميرة ، يُعتقد أن البروتينات الشبيهة بالأكتين تلعب دورًا في تنظيم التعبير الجيني . في الواقع ، الأكتين قادر على العمل كبادئ للنسخ عندما يتفاعل مع نوع من الميوسين النووي الذي يتفاعل مع بوليميرات الحمض النووي الريبي والإنزيمات الأخرى المشاركة في عملية النسخ.
قابلة للطي
يمكن أن يكتسب الأكتين تلقائيًا جزءًا كبيرًا من هيكله
من جهة ثانية، من أجل إكمال طيها بنجاح، يحتاج كل من الأكتينوالتوبيولين إلى التفاعل مع بروتين آخر يسمى بريفولدين، وهو مركب غير متجانس هكساميريكي (يتكون من ستة وحدات فرعية متميزة)، في تفاعل محدد جدًا لدرجة أن الجزيئات قد تطورت معًا [ بحاجة لمصدر ] . مجمعات الأكتين مع البروفولدين بينما لا تزال قيد التكوين، عندما يكون طولها قرابة 145 حمضًا أمينيًا، وتحديداً تلك الموجودة في N-terminal.
وفي هذا الصدد، الثالث . ومع ذلك، فإن الطريقة التي يكتسب بها شكله الوظيفي الكامل من شكله الأصلي المركب حديثًا خاصة وفريدة على وجه التقريب في كيمياء البروتين. قد يكون سبب هذا المسار الخاص هو الحاجة إلى تجنب وجود مونومرات الأكتين المطوية بشكل غير صحيح، والتي يمكن أن تكون سامة لأنها يمكن أن تعمل كمنهي بلمرة غير فعال. ومع ذلك، فهي أساسية لتحقيق استقرار الهيكل الخلوي، إلى جانب أنها عملية أساسية لتنسيق دورة الخلية .
وعلى صعيد آخر، لا تزال الطريقة الدقيقة التي يتم بها تنظيم هذه العملية غير مفهومة تمامًا، ولكن من المعروف أن البروتين PhLP3 (بروتين مشابه للفوسدوسين) يثبط نشاطه من خلال تكوين مركب ثلاثي.
من جهة ثانية، نموذج الشريط للمجال γ القمي لـ chaperoninCCT ثم يتسبب CCT في الطي المتسلسل للأكتين عن طريق تكوين روابط مع وحداته الفرعية بدلاً من مجرد وضعه في تجويفه. هذا هو السبب في أنها تمتلك مناطق تمييز محددة في مجالها القمي β. تتكون المرحلة الأولى من الطي من التعرف على المخلفات من 245 إلى 249. فيما بعد، تحدد المحددات الأخرى الاتصال. يرتبط كل من الأكتين والتوبيولين بـ CCT في مطابقة مفتوحة في غياب ATP. في حالة الأكتين، يتم ربط وحدتين فرعيتين أثناء كل تغيير توافقي، بينما يحدث ربط التوبولين بأربع وحدات فرعية. يحتوي الأكتين على تسلسلات ربط محددة، والتي تتفاعل مع الوحدات الفرعية δ و β-CCT أو مع δ-CCT و ε-CCT. بعد ربط AMP-PNP بـ CCT ، تتحرك الركائز داخل تجويف المرافق. يبدو كذلك أنه في حالة الأكتين، فإنمطلوب بروتين CAP كعامل مساعد محتمل في حالات الطي النهائية للأكتين.
ومن ناحية أخرى، تُستعمل وحدات تمييز فرعية مختلفة للأكتين أو التوبولين على الرغم من وجود بعض التداخل. في الأكتين، تكون الوحدات الفرعية التي ترتبط بالبريفولدين هي على الأرجح PFD3 و PFD4 ، والتي ترتبط في مكانين، أحدهما بين المخلفات 60-79 والآخر بين المخلفات 170-198. يتم التعرف على الأكتين وتحميله وتسليمه إلى مرافق عصاري خلوي (CCT) في شكل مفتوح من خلال النهاية الداخلية لـ «مخالب» بريفولدين (انظر الصورة والملاحظة). الاتصال عند توصيل الأكتين قصير جدًا بحيث لم يتم تشكيل مجمع العالي، وتحرير الفور prefoldin.
وفي هذا السياق، مطلوب CCT للتأكد من أن الطي يتم بشكل صحيح. CCT هي مجموعة تشبيرونين من المجموعة الثانية، وهي مركب بروتين كبير يساعد في طي البروتينات الأخرى. يتكون CCT من حلقة مزدوجة من ثماني وحدات فرعية مختلفة (غير متجانسة - ثماني النواة) ويختلف عن مرافقي المجموعة الأولى مثل GroEL ، الموجود في Eubacteria وفي عضيات حقيقية النواة، لأنه لا يتطلب مساعدًا مساعدًاليكون بمثابة غطاء. فوق التجويف الحفاز المركزي . ترتبط الركائز بـ CCT من خلال مجالات محددة. كان يُعتقد في البداية أنه يرتبط فقط بالأكتين والتوبيولين، على الرغم من أن دراسات الترسيب المناعي الحديثة أظهرت أنه يتفاعل مع عدد كبير من عديد الببتيدات، والتي ربما تعمل مثلركائز . إنه يعمل من خلال التغييرات التوافقية المعتمدة على ATP والتي تتطلب أحيانًا عدة جولات من التحرير والحفز من أجل إكمال التفاعل.
G- أكتين
علاوةً على ذلك، تشير صور المجهر الإلكتروني الماسح إلى أن G-actin له بنية كروية؛ ومع ذلك، يوضح علم البلورات بالأشعة السينية أن كل من هذه الكريات تتكون من فصين يفصل بينهما شق. تمثل هذه البنية «طية ATPase»، وهي مركزالتحفيز الأنزيمي الذي يربط ATP و Mg 2+ ويتحلل السابق بـ ADP إلى جانب الفوسفات . هذه الطية عبارة عن حافز هيكلي محفوظ يوجد كذلك في البروتينات الأخرى التي تتفاعل مع نيوكليوتيدات ثلاثي الفوسفات مثل هيكسوكيناز (إنزيم يستعمل في استقلاب الطاقة) أو فيبروتينات Hsp70 (عائلة بروتينية تلعب دورًا مهمًا في طي البروتين). G-actin إلا عندما يحتوي إما على ADP أو ATP في شقه ولكن الشكل المرتبط بـ ATP يسود في الخلايا عندما يكون الأكتين موجودًا في حالته الحرة.
من جانب آخر، و البلورات بالأشعة السينية نموذج من الأكتين التي تم إنتاجها من قبل Kabsch من الأنسجة العضلية المخططة من الأرانب هو الأكثر شيوعا في الدراسات البنيوية كما كان أول من تنقيته . وG-الأكتين تبلورت من خلال Kabsch نحو 67 × 40 × 37 Å في الحجم، لديها الكتلة الجزيئية من 41785 دا ويقدر نقطة تساوي الكهربائية من 4.8. في صافي تهمة في درجة الحموضة = 7 هو -7
بناء
وفي هذا السياق، الأكتين هو أحد البروتينات الأكثر وفرة في حقيقيات النوى، حيث يوجد في جميع أنحاء السيتوبلازم. في الواقع، تشكل الألياف العضلية 20٪ من البروتين الخلوي الكلي بالوزن وما بين 1٪ و 5٪ في الخلايا الأخرى. ومع ذلك، لا يوجد نوع واحد فقط من الأكتين؛ والجينات التي تم تعريفها رمز لالأكتين بمثابة عائلة الجينات (عائلة في النباتات تحتوي على أكثر من 60 عناصر، بما في ذلك الجينات والجينات الكاذبة وفي البشر أكثر من 30 عناصر). هذا يعني أن المعلومات الجينية لكل فرد تحتوي على تعليمات تولد متغيرات أكتين (تسمى الأشكال الإسوية) التي تمتلك وظائف مختلفة قليلاً. وهذا بدوره يعني أن الكائنات حقيقية النواة تعبر عن جينات مختلفة تؤدي إلى: α-actin ، الموجود في الهياكل الانقباضية؛ β-actin ، الموجود عند الحافة المتوسعة للخلايا التي تستعمل إسقاط هياكلها الخلوية كوسيلة للتنقل؛ وبيتا-أكتين الموجود في خيوط ألياف الإجهاد . فضلًا عن أوجه التشابه الموجودة بين الأشكال الإسوية للكائن، هناك كذلك حماية تطورية في التركيب والوظيفة حتى بين الكائنات الحية الموجودة في مجالات حقيقية النواة المختلفة . في البكتيريا، يكون متماثل الأكتين MreBتم التعرف عليه، وهو بروتين قادر على البلمرة إلى خيوط دقيقة؛ وفي العتائق يكون المتماثل Ta0583 أكثر تشابهًا مع الأكتينات حقيقية النواة.
وفي هذا السياق، الأكتين في الأمينية تسلسل الحمض هو واحد من أكثر جداالحفاظ عليها من البروتينات لأنها قد تغير يذكر على مدى تطور، واختلاف بنسبة لا تزيد على 20٪ في الأنواعمختلفة مثل الطحالب والبشر. ولذلك يعتبر أن لديهاهيكل أمثل. وله سمتان مميزتان: إنه إنزيم يحلل ببطءATP ، «عملة الطاقة العالمية» للعمليات البيولوجية. ومع ذلك، فإن ATP مطلوب من أجل الحفاظ على سلامتها الهيكلية. يتكون هيكلها الفعال من هيكل فريد تقريباعملية الطي. علاوةً على ذلك، فهو قادر على إجراء تفاعلات أكثر من أي بروتين آخر، مما يسمح له بأداء مجموعة متنوعة من الوظائف أكثر من البروتينات الأخرى في كل مستوى من مستويات الحياة الخلوية على وجه التقريب. الميوسين هو مثال على بروتين يرتبط بالأكتين. مثال آخر هو الشرير، الذي يمكنه نسج الأكتين إلى حزم أو قطع الخيوط اعتمادًا على تركيز كاتيونات الكالسيوم في الوسط المحيط.
ومن ناحية أخرى، يحتوي الأكتين الخلوي على شكلين: كريات أحادية تسمى G-actin وخيوط بوليمرية تسمى F-actin (أي كخيوط مكونة من الكثير من مونومرات G-actin). يمكن كذلك وصف F-actin بأنه خيوط دقيقة. يجب أن تدور خصلتان متوازيتان من نوع F-actin بمقدار 166 درجة لتستقر بشكل صحيح فوق بعضها البعض. يؤدي هذا إلى إنشاء الهيكل الحلزوني المزدوج للألياف الدقيقة الموجودة في الهيكل الخلوي. يبلغ قطر الألياف الدقيقة قرابة 7 نانومترمع تكرار اللولب كل 37 نانومتر. يرتبط كل جزيء من الأكتين بجزيء من ثلاثي فوسفات الأدينوسين (ATP) أو ثنائي فوسفات الأدينوسين (ADP) المرتبط بـ Mg 2+الكاتيون. أكثر أشكال الأكتين شيوعًا، مقارنة بجميع التركيبات الممكنة، هي ATP-G-Actin و ADP-F-actin.
الأشكال الإسوية للأكتين في نواة الخلية
من جهة ثانية، يتم إيلاء القليل من الاهتمام للأشكال الإسوية للأكتين ؛ ومع ذلك ، فقد ثبت وجود أشكال مختلفة من الأكتين في نواة الخلية. على الرغم من التشابه العالي في التسلسل ، فإن الأشكال الإسوية للأكتين لها خصائص كيميائية حيوية مختلفة مثل البلمرة وإزالة البلمرة الحركية. كما أنها تُظهر توطين ووظائف مختلفة.
أكتين عضلات الهيكل العظمي ألفا في نوى الخلايا العضلية للفأر
في هذا الإطار، عادة ما تركز المخاوف البحثية حول الأكتين النووي على الشكل الإسوي بيتا. ومع ذلك ، فإن استخدام الأجسام المضادة الموجهة ضد الأشكال الإسوية المختلفة للأكتين يسمح بتحديد ليس فقط بيتا السيتوبلازمي في نواة الخلية ، ولكن كذلك:
من جهة ثانية، قد يكون لوجود أشكال مختلفة من الأكتين تأثير كبير على وظيفتها في العمليات النووية ، خاصةً لأنه يمكن التحكم في مستوى الأشكال الإسوية الفردية بشكل مستقل.
جاما أكتين في نواة خلية سرطان الجلد البشري
علاوةً على ذلك، قد يتغير مستوى الأشكال الإسوية للأكتين ، في كل من السيتوبلازم والنواة ، مثلًا استجابة لتحفيز نمو الخلية أو توقف الانتشار ونشاط النسخ.
وفي السياق ذاته، أكتين جاما السيتوبلازمي وأيضًا أكتين العضلات الملساء ألفا في نواة الأرومة الليفية للفأر الجنيني
ACTA1 - ألفا أكتين 1، العضلات الهيكلية
ACTA2 - ألفا أكتين 2، العضلات الملساء ، الشريان الأورطي
النباتات
وفي السياق ذاته، من أبرز البروتينات المرتبطة بهيكل خلوي الأكتين في النباتات: فيلين ، الذي ينتمي إلى نفس عائلة جيلسولين/ سيفرين ، وهو قادر على قطع الألياف الدقيقة وربط مونومرات الأكتين في وجود كاتيونات الكالسيوم ؛ فيمبرين، القادر على التعرف على مونومرات الأكتين وتوحيدها والذي يشارك في تكوين الشبكات (من خلال عملية تنظيم مختلفة عن تلك الخاصة بالحيوانات والخمائر)؛ الفورمينات ، القادرة على العمل كعامل نواة لبلمرة أكتين F ؛ الميوسين ، محرك جزيئي نموذجي خاص بحقيقيات النوى والذي يوجد في Arabidopsis thalianaيتم ترميزه بواسطة 17 جينًا في فئتين متميزتين ؛ CHUP1 ، الذي يمكنه ربط الأكتين ومتورط في التوزيع المكاني للبلاستيدات الخضراء في الخلية ؛ KAM1 / MUR3 التي تحدد مورفولوجيا جهاز جولجي وكذلك تكوينالزيلوغلوكان في جدار الخلية ؛ NtWLIM1 ، مما يسهل ظهور هياكل خلايا الأكتين ؛ و ERD10 ، الذي يشارك في ارتباط العضيات داخل الأغشية والخيوط الدقيقة والذي يبدو أنه يلعب دورًا يشارك في تفاعل الكائن الحي مع الإجهاد .
علاوةً على ذلك، على الرغم من أن غالبية الخلايا النباتية لها جدار خلوييحدد شكلها ويعيق حركتها ، يمكن أن تولد أليافها الدقيقة قوة كافية لتحقيق عدد من الأنشطة الخلوية ، مثل التيارات السيتوبلازمية الناتجة عن الألياف الدقيقة والميوسين. يشارك الأكتين كذلك في حركة العضيات والتكوين الخلوي ، والذي يتضمن انقسام الخلية إلى جانب استطالة وتمايز الخلية.
في هذا الإطار، كشفت دراسات الجينوم النباتي عن وجود متغيرات البروتين داخل عائلة جينات الأكتين. داخل Arabidopsis thaliana ، وهو ثنائي الفلقة يستعمل ككائن نموذجي ، هناك عشرة أنواع من الأكتين ، وتسعة أنواع من α-tubulins ، وستة-tubulins ، وستة بروفيلن ، وعشرات من الميوسينات. يتم تفسير هذا التنوع من خلال الضرورة التطورية لامتلاك متغيرات تختلف قليلاً في تعبيرها الزمني والمكاني. تم التعبير عن غالبية هذه البروتينات بشكل مشترك في الأنسجة التي تم تحليلها. يتم توزيع شبكات الأكتين في جميع أنحاء سيتوبلازم الخلايا التي تمت زراعتها في المختبر. يوجد تركيز للشبكة حول النواة متصل بالقشرة الخلوية عبر مكبرات الصوت ، وهذه الشبكة ديناميكية للغاية ، مع بلمرة مستمرة وإزالة البلمرة.
وظائف الأكتين النووية
ومن ناحية أخرى، تكامل الأجزاء الخلوية المختلفة . الأكتين هو جزيء يدمج مسارات تحويل الإشارات السيتوبلازمية والنووية. مثال على ذلك هو تنشيط النسخ استجابة لتحفيز المصل للخلايا في المختبر .
كذلك، نظرًا لقدرته على الخضوع لتغييرات توافقية والتفاعل مع الكثير من البروتينات ، يعمل الأكتين كمنظم لتكوين ونشاط مجمعات البروتين مثل مجمع النسخ.
في هذا الإطار، النسخ - يشارك أكتين في إعادة تنظيم الكروماتين ، بدء النسخ والتفاعل مع مجمع النسخ. يشارك الأكتين في تنظيم بنية الكروماتين ، يتفاعل مع بوليميريز الحمض النووي الريبي الأول ، الثاني والثالث. في نسخ Pol I ، يعمل الأكتين والميوسين (MYO1C ، الذي يربط الحمض النووي) كمحرك جزيئي. بالنسبة لنسخ Pol II ، فإن β-actin ضروري لتشكيل معقد preinitiation. يحتوي Pol III على β-actin كوحدة فرعية. يمكن أن يكون الأكتين كذلك أحد مكونات مجمعات إعادة تشكيل الكروماتين إلى جانب جزيئات ما قبل mRNP (أي ، RNA السلائف المجمعة في البروتينات)، ويشارك في التصدير النووي لـ RNAs والبروتينات.
من جهة ثانية، .ترتبط وظائف الأكتين في النواة بقدرتها على البلمرة والتفاعل مع مجموعة متنوعة من ABPs ومع العناصر الهيكلية للنواة. يشارك الأكتين النووي في:
من جهة ثانية، الاستجابة المناعية - يتبلمر الأكتين النووي عند تحفيزمستقبل الخلايا التائية وهو ضروري للتعبير الخلوي وإنتاج الأجسام المضادة في الجسم الحي .
وفي هذا السياق، بنية النواة - يعتبر تفاعل الأكتين مع alpha II-Spectrin والبروتينات الأخرى أمرًا مهمًا للحفاظ على الشكل المناسب للنواة.
إضافةً إلى ذلك، تنظيم نشاط الجينات - الأكتين يرتبط بالمناطق التنظيمية لأنواع مختلفة من الجينات. قدرة الأكتين على تنظيم نشاط الجينات في طريقة إعادة البرمجة الجزيئية ، والتي تسمح للخلايا المتمايزة بالعودة إلى حالتها الجنينية.
من جهة ثانية، إزاحة جزء الكروموسوم المنشط من منطقة الغشاء إلى كروماتين حقيقي حيث يبدأ النسخ. تتطلب هذه الحركة تفاعل الأكتين والميوسين.
تطور
وفي السياق ذاته، يحتوي الهيكل الخلوي حقيقي النواة للكائنات بين جميعالمجموعات التصنيفية على مكونات مماثلة للأكتين والتوبيولين. مثلًا ، البروتين الذي تم ترميزه بواسطة جين ACTG2 في البشر يعادل تمامًا المتماثلات الموجودة في الجرذان والفئران ، على الرغم من أن التشابه على مستوى النوكليوتيدات ينخفض إلى 92٪. ومع ذلك، هناك اختلافات كبيرة مع حكمه في بدائيات النوى (بروتين زد و MreB)، حيث التشابه بين متواليات النوكليوتيدات ما بين 40-50٪ بين مختلف البكتيريا والعتائق محيط. يقترح بعض المؤلفين أن بروتين الأسلاف الذي أدى إلى ظهور الأكتين النموذجي حقيقي النواة يشبه البروتينات الموجودة في الهياكل الخلوية البكتيرية الحديثة.
وفي السياق ذاته، يشير بعض المؤلفين إلى أن سلوك الأكتين والتوبيولينوالهيستون ، وهو بروتين يشارك في تثبيت وتنظيم الحمض النووي ، متشابه في قدرتها على ربط النيوكليوتيدات وقدرتها على الاستفادة من الحركة البراونية . كما تم اقتراح أن لديهم جميعًا سلف مشترك. لذلك، التطورية أسفرت العمليات في تنويع البروتينات الأجداد في أصناف موجودة اليوم، والمحافظة، من بين أمور أخرى، actins كما الجزيئات الفعالة التي كانت قادرة على معالجة العمليات البيولوجية الأجداد الأساسية، مثل الإلتقام .
علم الأمراض المرتبط بـ ACTA1
ومن جهة أخرى، تغير الطفرة بنية ووظيفة عضلات الهيكل العظمي مما ينتج عنه أحد أشكال الاعتلال العضلي الثلاثة : اعتلال عضلي منالنوع الثالث ، اعتلال عضلي خلقي مع وجود فائض من الخيوط العضلية الرقيقة (CM) والاعتلال العضلي الخلقي مع عدم تناسق نوع الألياف (CMFTD). كما تم العثور على الطفرات التي تؤدي إلى اعتلال عضلي أساسي . على الرغم من أن أنماطهم الظاهرية متشابهة ، إلا أن بعض المتخصصين ، إلى جانب الاعتلال العضلي النمالي النموذجي ، يميزون نوعًا آخر من الاعتلال العضلي يسمى الاعتلال العضلي النيمالي الشعاعي. في السابق ، تتشكل كتل الأكتين بدلاً من القضبان النموذجية. من المهم الإشارة إلى أنه يمكن للمريض إظهار أكثر من واحد من هذه الأنماط الظاهرية في الخزعة. الأعراض الأكثر شيوعًا تتكون من شكل نموذجي للوجه (الوجه العضلي) وضعف عضلي وتأخر في النمو الحركي وصعوبات في التنفس. تم العثور على مسار المرض ، وخطورته ، والعمر الذي يظهر فيه كلها أشكال متغيرة ومتداخلة من اعتلال عضلي. من أعراض الاعتلال العضلي النيمالي ظهور «قضبان النيمالين» في أماكن مختلفة في ألياف العضلات من النوع الأول. هذه القضبان هي هياكل غير مرضية لها تركيبة مشابهة للأقراص Z الموجودة في قسيم عضلي .
في هذا الإطار، ACTA1 هو الجين الذي يرمز لـ α- isoform من الأكتين السائد في العضلات المخططة للهيكل العظمي البشري، على الرغم من أنه يتم التعبير عنه كذلك في عضلة القلب والغدة الدرقية . لها تسلسل الحمض النووي يتكون من سبعة الإكسونات التي تنتج خمس المعروف النصوص . تتكون غالبية هذه الطفرات النقطية مما يؤدي إلى استبدالالأحماض الأمينية . ترتبط الطفرات في كثير من الحالات بنمط ظاهري يحدد شدة ومسار الإصابة.
ومن ناحية أخرى، و المرضية من هذا عضلي متنوعة جدا. تحدث الكثير من الطفرات في منطقة المسافة البادئة للأكتين بالقرب من مواقع الار.تباط بالنيوكليوتيدات ، بينما تحدث طفرات أخرى في المجال 2، أو في المناطق التي يحدث فيها التفاعل مع البروتينات المرتبطة. هذا يفسر بعض الطرق لشرح التنوع الكبير للكتل التي تتشكل في هذه الحالات ، مثل Nemaline أو الأجسام الداخلية أو الأجسام Zebra. التغييرات في الأكتين ل لطي تحدث في اعتلال عضلي خيطي فضلا عن التغيرات في تجميع وهناك كذلك تغييرات في التعبير من البروتينات الأخرى المرتبطة بها. في بعض المتغيرات حيث توجد الأجسام داخل النواة ، تخفي التغييرات في الطي إشارة تصدير البروتين في النواة بحيث يحدث تراكم شكل طفرة الأكتين في نواة الخلية . من ناحية أخرى ، يبدو أن طفرات ACTA1 التي تؤدي إلى CFTDM لها تأثير أكبر على وظيفة قسيم عضلي أكثر من بنيتها. حاولت التحقيقات الحديثة فهم هذا التناقض الظاهري ، مما يشير إلى عدم وجود علاقة واضحة بين عدد القضبان والضعف العضلي. يبدو أن بعض الطفرات قادرة ع.لى إحداث معدل موت الخلايا المبرمج أكبر في الألياف العضلية من النوع الثاني.
الخطوط العريضة لانقباض العضلات
ومن ناحية أخرى، في خلايا العضلات، أكتوميوزين اللييفات العضلية تشكل الكثير من المواد هيولي. تتكون هذه اللييفات العضلية منخيوط رفيعة من الأكتين (يبلغ قطرها عادة نحو 7 نانومتر)، وخيوط سميكة من بروتين الميوسين الحركي (عادة يبلغ قطره قرابة 15 نانومتر). تستعمل اللييفات العضلية هذه الطاقة المشتقة من ATP لإنشاء حركات الخلايا ، مثل تقلص العضلات . باستخدام التحلل المائي لـ ATP للحصول على الطاقة ، تخضع رؤوس الميوسين لدورة تلتصق خلالها بالخيوط الرفيعة ، وتؤدي إلى شد ، وفيما بعد ، اعتمادًا على الحمل ، تقوم بضربة كهربائية تتسبب في انزلاق الشعيرات الرقيقة إلى الماضي ، وتقصيرها عضلة.
وفي هذا السياق، في حزم مقلص، والبروتين تجميع الأكتين ألفا actininيفصل كل خيوط رقيقة من قبل ≈35 نانومتر. هذه الزيادة في المسافة تسمح للخيوط السميكة أن تتلاءم وتتفاعل ، مما يتيح التشوه أو الانكماش. في حالة التشوه ، يرتبط أحد طرفي الميوسين بغشاء البلازما ، بينما «يسير» الطرف الآخر باتجاه الطرف الزائد لخيوط الأكتين. يؤدي هذا إلى سحب الغشاء إلى شكل مختلف بالنسبة لقشرة الخلية. في حالة الانكماش ، يرتبط جزيء الميوسين عادةً بشيطين منفصلين و «يسير» كلا الطرفين في نفس الوقت باتجاه الطرف الزائد للخيوط ، مما يؤدي إلى تحريك خيوط الأكتين بالقرب من بعضها البعض. ينتج عن هذا تقصير أو تقلص حزمة الأكتين (ولكن ليس الفتيل). هذه الآلية مسؤولة عن تقلص العضلاتوالتحرك الخلوي ، وتقسيم خلية واحدة إلى خليتين.
تنظيم الأكتين النووي
وفي هذا الصدد، يوجد الأكتين النووي بشكل أساسي كمونومر ، ولكن يمكنه كذلك تكوين أوليغومرات ديناميكية وبوليمرات قصيرة. يختلف تنظيم الأكتين النووي باختلاف أنواع الخلايا. مثلًا ، في البويضات Xenopus(مع مستوى أكتين نووي أعلى مقارنة بالخلايا الجسدية) يشكل الأكتين خيوطًا ، والتي تعمل على استقرار بنية النواة. يمكن ملاحظة هذه الخيوط تحت المجهر بفضل تلطيخ phalloidin المترافق بالفلوروفور.
من جانب آخر، ومع ذلك ، في نوى الخلايا الجسدية ، لا يمكن ملاحظة خيوط الأكتين باستخدام هذه التقنية. كشف اختبار تثبيط DNase I ، وهو الاختبار الوحيد حتى الآن الذي يسمح بتحديد كمية الأكتين المبلمر مباشرة في العينات البيولوجية ، أن الأكتين النووي الداخلي يحدث بالفعل بشكل أحادي.
علاوةً على ذلك، مستوى الأكتين الذي يتم التحكم فيه بدقة في نواة الخلية ، أقل مما هو عليه في السيتوبلازم ، يمنع تكوين الشعيرات. يتم تقليل البلمرة كذلك من خلال الوصول المحدود إلى مونومرات الأكتين ، والتي ترتبط في مجمعات مع ABPs ، بشكل أساسي cofilin.
هياكل مهمة أخرى
كذلك، هناك بنية في فرعي 2 الذي يسمى «D-حلقة» لأنه يربط مع الدناز I ، وهي تقع بين His40 و Gly48 المخلفات. لها مظهر عنصر غير منظم في غالبية البلورات، لكنها تبدو مثل ورقة β عندما تكون معقدة مع DNase I. وقد تم اقتراح أن الحدث الرئيسي في البلمرة هو على الأرجح انتشار تغيير توافقي من مركز الرابطة مع النيوكليوتيدات إلى هذا المجال، والذي يتغير من حلقة إلى لولب. ومع ذلك، تم دحض هذه الفرضية من قبل دراسات أخرى.
إضافةً إلى ذلك، يقع موقع الارتباط الكاتيوني ثنائي التكافؤ أسفل موقع نوكليوتيد الأدينوزين. غالبًا ما يتم تكوينه في الجسم الحي بواسطة Mg 2+ أو Ca 2+ بينما يتم تكوينه في المختبر من خلال هيكل مخلب يتكون من Lys18واثنين من الأكسجين من النوكليوتيدات α-and- فوسفات . يتم تنسيق هذا الكالسيوم مع ستة جزيئات ماء يتم الاحتفاظ بها بواسطة الأحماض الأمينية Asp11 و Asp154 و Gln137. تشكل معقدًا مع النيوكليوتيد الذي يقيد حركات ما يسمى بالمنطقة «المفصلية»، الواقعة بين البقايا 137 و 144. هذا يحافظ على الشكل الأصلي للبروتين حتى يفسد انسحابه مونومر أكتين. هذه المنطقة مهمة كذلك لأنها تحدد ما إذا كان شق البروتين في التشكل «المفتوح» أو «المغلق».
علاوةً على ذلك، وأبرز هيكل ثانوي هو ورقة بيتا من خمس سلاسل تتكون من β-تعرج ووحدة β-α-β في اتجاه عقارب الساعة. إنه موجود في كلا المجالين مما يشير إلى أن البروتين نشأ من تكرار الجينات.
وفي السياق ذاته، من المحتمل جدًا وجود ثلاثة مراكز أخرى على الأقل ذات تقارب أقل (وسيط) وأخرى ذات تقارب منخفض للكاتيونات ثنائية التكافؤ. لقد تم اقتراح أن هذه المراكز قد تلعب دورًا في بلمرة الأكتين من خلال العمل أثناء مرحلة التنشيط.
من جهة ثانية، يقع موقع ربط نوكليوتيد الأدينوزين بين بنيتين على شكل دبوس شعر بيتا تتعلقان بالمجالات I و III. البقايا المتورطة هي Asp11-Lys18 و Asp154-His161 على التوالي.
آليات مرضية أخرى
وفي السياق ذاته، Listeria monocytogenes ، وبعض أنواع الريكتسيا ،والشيغيلا فليكسنري وغيرها من الجراثيم داخل الخلايا تهرب منفجوات البلعمة عن طريق تغليف نفسها بكبسولة من خيوط الأكتين. يولد كل من L. monocytogenesو S. flexneri ذيلًا على شكل «ذيل مذنب» يمنحهما القدرة على الحركة. يُظهر كل نوع اختلافات صغيرة في آلية البلمرة الجزيئية لـ «ذيول المذنب». وقد لوحظ السرعات التشريد مختلفة، مثلًا، مع الليستيريا و الشيجلا جدت لتكون أسرع. أظهرت الكثير من التجارب هذه الآلية في المختبر. يشير هذا إلى أن البكتيريا لا تستعمل محركًا بروتينيًا يشبه الميوسين ، ويبدو أن دفعها يتم الحصول عليه من الضغط الذي تمارسه البلمرة التي تحدث بالقرب من جدار خلية الكائن الدقيق. سبق يحيط البكتيريا عن طريق ABPs من المضيف، وكحد أدنى يحتوي على غطاء Arp2 / 3 معقدة ، إينا / VASP البروتينات ، cofilin، وهو بروتين التخزين المؤقت والتنوي المروجين، مثل فينكولين تعقيدا. من خلال هذه الحركات تشكل نتوءات تصل إلى الخلايا المجاورة وتصيبها كذلك حتى لا يتمكنالجهاز المناعي من محاربة العدوى إلا من خلال مناعة الخلية. يمكن أن تكون الحركة ناتجة عن تعديل المنحنى وإزالة الشعيرات. الأنواع الأخرى ، مثل المتفطرة البحرية و Burkholderia pseudomallei ، قادرة كذلك على بلمرة موضعية للأكتين الخلوي للمساعدة في حركتها من خلال آلية تتمحور حول مركب Arp2 / 3.فضلًا عن ذلك، يستعمل فيروس اللقاح Vacciniaأيضًا عناصر من الهيكل الخلوي للأكتين لنشره.
وعلى صعيد آخر، لم يتم بعد تحديد الدور الذي يلعبه الأكتين في عملية غزو الخلايا السرطانية.
وفي السياق ذاته، الزائفة الزنجارية هي قادرة على تشكيل واقية بيوفيلم من أجل الهروب من الكائنات المضيفة دفاعات، وخاصة خلايا الدم البيضاء والمضادات الحيوية . يتكون البيوفيلم باستخدامخيوط الحمض النووي والأكتين من الكائن الحي المضيف.
وفي السياق ذاته، إلى جانب المثال المذكور سابقًا ، يتم تحفيز بلمرة الأكتين في الخطوات الأولية لاستيعاب بعض الفيروسات ، ولا سيما فيروس نقص المناعة البشرية ، عن طريق ، مثلًا ، تعطيل مركب cofilin.
علاوةً على ذلك، تستعمل بعض العوامل المعدية الأكتين ، وخاصة الأكتين السيتوبلازمي ، في دورة حياتها . يوجد شكلين أساسيين في البكتيريا :
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟