أنيبيب دقيق
المحتويات
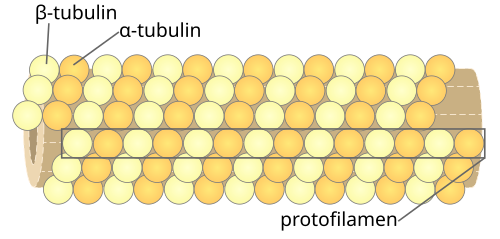
تعريفًا بالموضوع، الأنيبيبات الدقيقة أكبر مكونات الهيكل الخلوي توجد في سيتوبلازم الخلايا حقيقية النوى وفي بعض أنواع البكتيريا ، وشكلها أنبوبي دقيق ، ولهذا أسمها. هذه البوليمرات الأنبوبية المكونة من بروتين التيوبيولين (tubulin) تستطيع أن تنمو حتى 50 ميكروميتر، بالإضافة لكونها تتمتع بديناميكية عالية. القطرالخارجي للإنيبيبات تقربيا 24 نانوميتر أما الداخلي نحو 12 نانوميتر، تتشكل عن طريق بلمرة دايمر (مركب ينتج عن ارتباط جزيئتين متشابهتين) (dimer) من اثنين من البروتينات الكروية ألفا وبيتا تيوبيولين. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
علاوةً على ذلك، المكون الرئيسي للخيوط المغزلية لسحب كروموسومات الخلايا حقيقية النوى.
وفي السياق ذاته، كما أنها تشكل البنية الداخلية للأهداب والأسواط، وتوفر منابر للنقل داخل الخلايا وتشارك في مجموعة متنوعة من العمليات
ومن ناحية أخرى، البروتينات المحركة كينيسين (Kinesin) وداينين (Dynein) وبروتينات القطع مثل (katanin) وغيرها من البروتينات المهمة لديناميكية الأنيبيبات الدقيقة.
المتوسطة التي تشكل معاً الهيكل الخلوي.
وفي هذا السياق، هنالك الكثير من البروتينات التي ترتبط بالأنيبيبات الدقيقية بما في ذلك
أو الأجسام القاعدية التي توجد في الأسواط والأهداب.
وفي هذا الصدد، الأنيبيبات الدقيقة تبدأ التكوين من أنوية صغيرة وتمتد منها، تنظم من خلال مراكز تنظيم الأنيبيبات الدقيقة (MTOCs) مثل السنتروسوم الذي يوجد في مركز الكثير من الخلايا الحيوانية
إضافةً إلى ذلك، الأنيبيبات الدقيقة ضرورية لمجموعة من واسعة من الوظائف الخلوية، فهي تشارك في الحفاظ على بنية الخلية جنبا إلى جنب مع الخيوط الدقيقة والخيوط
وفي هذا السياق، الخلوية بما في ذلك حركة الحويصلات الإفرزاية، والعضيات، وتجميع الجزيئات داخل
وعلى صعيد آخر، الخلايا. كما تلعب دورا في فصل الكروموسومات (الإنقسام المتساوي والمنصف)، وهي كذلك
الانقسام
من جهة ثانية، انقسام الخلايا في حقيقيات النوى النموذجية، ينتهي بتكوين جزء سايتوبلازمي بين الخلايا الابنة تسمى أوساط الجذع. تم بناء الهيكل الخلوي من الأنيبيات الدقيقة التي كانت أصلا جزء من المغزل الانقسامي.
علاوةً على ذلك، أنيبيب الحيز الحركي، يرتبط بالكرموسومات في الحيزات الحركية، كل كرموسوم لديه اثنان من الكرومتيد وكل كرومتيد لديه حيز حركي واحد، الحيزان الحركييان الاثنان المتربطان بمنطقة من الكرموسوم تسمى السنترومير، الأنابيب الدقيقة القطبية من مراكز تنظيم الأنيبيات الدقيقة واحد تتشابك مع الأنيبيات الدقيقة من مراكز أخرى البروتينات الحركية تجعلها تدفع عكس بعضها البعض مما يساعد على فصل الكرموسومات إلى خلايتين ابنتين اثنتين.
في هذا الإطار، هيكل ملحوظ يتكون إلى حدّ كبير من الأنيبيات الدقيقة هو المغزل التفتلي، يستعمل من قبل الخلايا حقيقية النوى لفصل الكرموسومات خلال انقسام الخلية. المغزل الانقسامي يضم الأنيبيات الدقيقة المغزلية، والبروتينات المرتطبة بالأنيبيات الدقيقة، ومراكز تنظيم الأنيبيات الدقيقة. الأنيبيات الدقيقة تنشأ من مراكز تنظيم الأنيبيات الدقيقة، وتخرج منها باتجاه الخلية وكل خلية تحتوي على اثنان من مراكز تنظيم الأنيبيات الدقيقة.
إضافةً إلى ذلك، عملية الانقسام تسهل من قبل ثلاث مجموعات فرعية من الأنيبيات الدقيقة، والمعروفة باسم النجمي، والقطبي، الحيز الحركي، والأنيبيب النجمي ينشأ من مراكز تنظيم الأنيبيات الدقيقة ولايرتبط بالكروموسوم، بدلا من ذلك فإنه يرتبط بالهيكل الخلوي بالقرب من الغشاء الخلوي ويعمل بالتنسيق مع محركات الداينين المتخصصة، محركات الداينين تسحب مراكز تنظيم الأنابيب نحو غشاء الخلية وبالتالي المساعدة في التموضع الصحيح وتوجيه الجهاز بأكمله.
البروتينات التي تتفاعل مع الأنابيب الدقيقة
البروتينات المتتبعة ل النهاية (+) (+TIPs)
وفي السياق ذاته، لقد تبين أن MAPs تلعب دورا حاسما في تنظيم ديناميكات الأنابيب في جسم الكائن الحي. معدلات البلمرة، والتحلل، والكارثة تختلف تبعا لأي نوع من البروتينات المرتطية بالأنيبيب موجودة. ويمكن تصنيف MAPs التي تم تحديدها أصلا في أنسجة المخ إلى نوعين بناء على الوزن الجزيئي. الفئة الأولى تشمل MAPs ذات الوزن الجزيئي أقل من 55-62 KDa، وتسمى بروتينات تاو وقد ثبت في المختبر أنها ترتبط مباشرة في الأنابيب الدقيقة، وتحث عملية ة التنوي، وتمنع التفكك، وتحث على تشكيل صفوف متوازية.36 فضلًا عن ذلك، أظهرت بروتينات تاو تحقيق الاستقرا في النابيب الدقيقة في المحاور وأيضا تورطها في مرض ألزهايمر.37 الفئة الثانية تضم MAPs ذات الوزن الجزيئي 200-1000 KDa ، والت ييوجود منها أربعة أنواع معروفة: MAP-1،MAP-2 MAP-3 MAP-4، بروتينات MAP-1 تتكون من ممجوعة من ثلاث بروتينات مختلفة A وBوC، وبروتين C يلعب دورا كبيرا في النقل الرجعي للحويصلات ويسمى كذلك ب دايني السيتوبلازم. يقع MAP-2 في التشعبات وفي جسم الخلايا العصبية حيث يرتبط مع خيوط الهيكل الخلوي الأخرى. توجد بروتينات ال MAP-4 في أغلب الخلايا والأنابيب الدقيقة المستقرة. بالإضافة يمكن أن يكون MAPs تأثير على استقرار هيكل الأنيبيب، بحيث تزعزع استقرارها عن طريق تفسيخها أو عن طريق تحفيز التحلل للأنيبيبات الدقيقة.
وعلى صعيد آخر، البروتينات المتتبعة لنهاية (+) هي عبارة عن بروتينات مرتبطة بالأنابيب (MAPs) حيث ترتيط ب أطراف الأنابيب النامية، وتلعب دورا مهما في تنظيم ديناميكات الأنابيب. على سيبل المثال (TIPs) لوحظ أنها تشارك في تفاعلات الأنيبيبات الدقيقة مع الكروموسومات خلال عملية الانقسام.
البروتينات المرتبطة بالأنيبيب (MAPs)
تنظيم الجينات
ومن جهة أخرى، الهيكل الخلوي هو نظام ديناميكي يعمل على عدة مستويات مختلفة: إلى جانب إعطاء الخلية شكل معين ودعم النقل من الحويصلات والعضيات، كما يمكن أن تؤثر على التعبير الجيني. ومع ذلك، يتم فهم آليات نقل الإشارة المشاركة في هذه الاتصالات قليلا. بالرغم من ذلك، وقد وصفت العلاقة بين التحلل بوساطة المخدرات من الأنيبيات الدقيقة وتعبيرا محددا من عوامل النسخ، التي وفرت معلومات عن التعبير التفاضلية من الجينات يتوقف على وجود هذه العوامل وهذا التواصل بين يرتبط الهيكل الخلوي وتنظيم الاستجابة الي كذلك إلى العمل من عوامل النمو: مثلًا، وجود هذه العلاقة لالضام عامل نمو الأنسجة.
- انظر كذلك
- ألفا توبولين 3 سي
- جهاز مغزلي
- حيز حركي
- دورة الخلية
- تيوبيولين
- مثبطات التفتل
- مثبطات التيوبيولين
التركيب
كذلك، ألفا وبيتا تيوبيولين دايمر تتبلمر إلى خيوط أولية (بدئِية) (protofilaments) خطية التي ترتبط أفقيا لكي تشكل أنيبيب واحد، والتي يمكن أن تُمدد عن طريق إضافة المزيد من ألفا وبيتا تيوبيولين دايمر، عادة يتم تشكيل الأنيبيبات الدقيقة عن طريق تجميع ثلاثة عشر خيوط أولية متوازية، وعلى الرغم من ذلك لوحظ في المختبر أنها قد تحتوي عدد أكثر أو أقل من الخيوط الأولية.
ومن جهة أخرى، الأنيبيبات الدقيقة لديها قطبية مميزة التي تعتبر ضرورية لتمكينها من القيام بوظائفها البيولوجية. التيوبيولين يتبلمر من أقصاه إلى أقصاه وحدة بيتا الفرعية من أحد التيوبيولين دايمر ترتبط مع وحدة ألفا الفرعية من الدايمر المجاور، ولذلك في خيط اولي (بدئي) سوف نجد نهاية واحدة تحتوي على وحدات ألفا الفرعية مكشوفة بينما في النهاية سوف نجد وحدات بيتا الفرعية مكشوفة. هذه النهايت تمثل (-) و (+) على التوالي، حزمة الخيوط الأولية ذات القطبية المتشابهة تكون موازية لبعضها البعض لذلك نجد في أنيبيب دقيق نجد نهاية واحد (+) تحتوي فقط على β بيتا تيوبيولين مكشوفة بينما النهاية الأخرى (-) تحتوي فقط على α ألفا تيوبيولين مكشوفة، في حين أن استطالة الأنيبيب يمكن أن تحدث في كل من النهايتان (+)و (-) إلا أن الاستطالة تكون أسرع إلى حد كبيرعلى النهاية (+).
ومن ناحية أخرى، التَجَمُع الجانبي للخيوط الأولية (البدئية) يولد هيكل شبه حلزوني، كل دورة حلزونية تحتوي على ثلاثة عشر تيوبيولين دايمر كلا من خيط أولي مختلف. هنالك نوعان مختلفان من التفاعلات التي تحدث بين الوحدات الفرعية للخيوط الأولية الجانبية داخل الأنيبيب تسمى تشابكات نوع أ (A-type) وتشابكات نوع ب (B-type). في تشابكات نوع أ، التَجمِيع الجانبي للخيوط الأولية يحدث بين وحدات ألفا وبيتا الفرعية المجاورة (أي أن الوحدات الفرعية ألفا α تيوبيولين من خيط أولي تتفاعل مع الوحدات الفرعية β بيتا تيوبيولين من خيط أولي مجاور. في تشابكات النوع ب، الوحدات الفرعية ألفاα وبيتاβ تيوبيولين من خيط أولي واحد تتفاعل مع الوحدات الفرعية ألفاα وبيتاβ تيوبيولين في خيط أولي مجاور، على التوالي.
من جانب آخر، المعلومات التي نمتلكها اليوم عن تركيب الأنيبيبات الدقيقة أغلبها آت من المجهر الإلكتروني، في الخلايا حقيقية النوى هي عبارة عن تراكيب أسطوانية طويلة جوفاء مصنوعة من ألفا α وبيتا β تيوبيولين دايمر، وحدات ألفا وبيتا تحتويان تقربيا على 50% من الأحماض الأمينية المتماثلة، وكلا منهما لديها 50 KDa وزن جزيئي.
كذلك، بعض أنواع البكتيريا (Prosthecobacter) تحتوي على الأنيبيبات الدقيقة، تركيب هذه الأنيبيبات الدقيقة مماثل لتركيب الأنيبيبات الدقيقة في الخلايا حقيقية النوى، ويتكون من أنبوب مجوف من الخيوط الأولية يتم تجميعها من دايمرات متخالفة من تيوبيولين البكتيريا أ (BtubA) وتيوبيولين البكتيريا ب (BtubB)، كلا من تيوبيولن البكتيريا أ وتيوبيولين البكتيريا ب يتشاركان ببعض السمات مع ألفا وبيتا تيوبيولين.
تنظيم الخلايا
من جانب آخر، الخلايا الليفية وغيرها من أنواع الخلايا الوسيطة ترتكز الأنيبيبات الدقيقة في الجسيم المركزي وتشع منها النهاية (+) إلى الخارج
بلمرة الأنيبيبات الدقيقة
والعضيات على طول محور القمي القاعدي للخلية. في
من جانب آخر، تنظيم الأنيبيبات الدقيقة في الخلية يختلف حسب نوعها، في (epithelia) الظهارة النسيج الذي يبطن التجاويف النهاية (-) لبوليمر الأنيبيب الدقيق مثبتة بالقرب من مواقع اتصال الخلية بالخلايا الأخرى ومنظمة على طول المحور القمي القاعدي. . بعد التَّنَوِّي يتم إطلاق
وفي السياق ذاته، سراح النهاية (-) وينم أعادة تثبيتها بواسطة عوامل عدة. بهذه الطريقة يمكن تسهيل نقل البروتينات، الحويصلات
مكونات الخلية، بما في ذلك الشبكة الإندوبلازمية وجهاز جولجي.
من جانب آخر، باتجاه محيط الخلية في هذه الخلايا الأنيبيبات الدقيقة تلعب أدوارا هامة في هجرة الخلية. وعلاوة على ذلك، فإنها تنظم الكثير من
إضافةً إلى ذلك، تعتبر الأنيبيبات الدقيقة جزء من الشبكة الهيكلية (الهيكل الخلوي) داخل سيتوبلازم الخلية. تضم أدوار أنيبيبات الهيكل الخلوي الدقيقة الدعم الميكانيكي، وتنظيم السيتوبلازم، والنقل، والحركة، وفصل الكروموسومات. الأنيبيب الدقيق قادر على النمو والتقلص من أجل توليد القوة، وهنالك البروتينات المحركة التي تسمح للعضيات والمكونات الخلوية الأخرى أن تُحمل على الأنيبيبات الدقيقة.هذا المزيج من الأدوار يجعل الأنيبيبات الدقيقة مهمة لتنظيم وتحريك المكزنات داخل الخلايا.
التَّنَوِّي
من جانب آخر، الجسيم المركزي هو مركز تنظيم الأنيبيبات الدقيقة الأولي في أغلب الخلايا.وعلى الرغم من ذلك يمكن أن تنوى الأنيبيبات الدقيقة من مواقع أخرى كذلك. مثلًا، الأسواط والأهداب تمتلك مراكز تنظيم الأنيبيب في قاعدتها وتسمى الأجسام القاعدية. فضلًا عن ذلك، العمل من مجموعة Kaverina في الفاندربيلت، فضلا عن غيرهم، تشير إلى أن جهاز جولجي يمكن أن تكون بمثابة منصة هامة ل التنوي الأنيبيبات الدقيقة.
من جهة ثانية، التنوي هو الحدث الذي يبدأ تشكيل الأنيبيبات الدقيقة من جديد، هذه الشعيرات من الهيكل الخلوي تشكل عادة عن طريق بلمرة دايمر ألفا وبيتا تيوبيولين، الوحدات الأساسية لبناء الأنيبيبات الدقيقة التي تتفاعل بداية لتشكل نواة البذرة التي سوف تسطيل منها الخيوط.
إضافةً إلى ذلك، في بعض أنواع الخلايا مثل الخلايا النباتية، لا تحتوي على مراكز محددة لتنظيم الأنيبيبات، في هذه الخلايا الأنيبيبات الدقيقة تنوى من مواقع منفصلة في السيتوبلازم، في أنواع أخرى مثل الطفيليات المثقبية تحتوي على مراكز تنظيم أنيبيبات دقيقة، لكنها موجدة بشكل دائم في قاعدة السوط، هنا تنوي الأنيبيات الدقيقة للقيام بأدوار هيكلية وتوليد الخيوط المغزلية للانقسام ليست مقبولة كمراكز تنظيم الأنيبيبات الدقيقة في المريكز.
البلمرة
وفي هذا السياق، الأنيبيات الدقيقة عي عادة منوية ويتم تنظيمها من قبل عضيات متخصصة تسمى مراكز تنظيم الأنيبيب الدقيق (MTOCs) تحتوي هذه المراكز على نوع آخر من التيوبيولين وهو ɣ تيوبيولين، والتي تختلف عن الوحدات الفرعية ألفا وبيتا تيوبيولين لللأنيبيبات الدقيقة نفسها.وɣ تيوبيولين يجمع الكثير من البروتينات الأخرى المرتبطة بها لتشكيل هيكل مثل الغسالة معروف باسم " ɣ-tubulin ring complex" (ɣ-TuRC). هذا المركب يتصرف كنموذج ل ألفا وبيتا تيوبيولين دايمر لبدأ البلمرة، فهو هي بمثابة غطاء للنهاية (-) بينما يستمر نمو الأنيبيب بعيدا عن MTOC في اتجاه (+).
نموذج " البحث والقبض
تنظيم ديناميكا الأنيبيبات الدقيقة
من جانب آخر، في سنة 1986، اقرح مارك كرشنير وتيم ميتشيسون أن الأنبيبات الدقيق تستعمل خصائصها الديناميكية من النمو والانكماش هل النهاية (+) لتحقق الشكل الثلاثي الأبعاد للخلية في الفضاء. النهايات (+) التي تقابل kinetochores أو مواقع القطبية يتم القبض عليها (تصبح مستولى عليها) ولا مزيد من النمو أو الانكماش يحدث، وعلى النقيض من الأنيبيبات الدقيقة الحيوية العادية، التي تمتلك عمر نصف من 5-10 دقائق، الأنيبيبات المستولى عليها يمكن أن تدوم لساعات. هذه الفكرة معرفة ب نموذج «البحث والقبض». في الواقع العديد العمل منذ ذلك الحين إلى حد كبير أيد صحة هذه النظرية. في الحيز الحركي وجد الكثير من المركبات المتنوعة لالتقاط النهايات (+) الإنيبيبات الدقيقة.
عدم الإستقرار الديناميكي
كذلك، يشير عدم الإستقرار الديناميكي إلى حصول التفكيك والتجميع في نهاية الأنيبيبات في الوقت نفسه، الأنيبيب الدقيق يسطتيع أن بحيوية أن يبدل بين حالة التمدد والانكماش في هذه المنطقة. دايمرات التيوبيولين تسطتيع ربط جزيئين من GTP واحدة منها يمكن أن تتحلل لاحقا في التجميع. خلال البلمرة، دايمرات التيوبيولين تكون في حالة الربط ب GTP . 7 الGTP المرتبط بألفا تيوبيولين مستقر وفي هذه الحالة يلعب وظيفة هيكلية. ومع ذلك، فإن الGTP المرتبط ب بيتا تيوبيولين يمكن أن يتحلل إلى GDP بعد وقت قصير من التجميع. خصائص تجميع ال GDP تيوبيولين تختلف عن خصائص GTP تيوبيولين، ال GDP تيوبيولين أكثر عرضة للتحلل. الوحدة الفرعية GDP تيوبيولين في طرف الأنيبيب تميل إلى أن تسقط على الرغم من أن GDP تيوبيولين في وسط الأنيبيب لا يمكن أن تظهر تلقائيا من البوليمر. عندما يضاف التيوبيولين إلى نهاية الأنيبيب الذي يرتبط ب GTP تنشأ قبعة من GTP المرتبط بالتيوبيولين على طرف الأنيبيب الدقيق لحمايته من التفكك، عندما يصل التحلل طرف الأنيبيب الدقيق فإنه يبدأ في التحلل السريع والأنكماش. ويسمى هذ التحول من النمو إلى التقلص كارثة catastroph. GTP تيوبيولين يبدأ الأضافة إلى طرف الأنيبيب الدقيق مجددا موفرا بذلك غطاء جديد وبذلك يشكل حماية للأنيبيب الدقيق من الانكماش، وهذا ما يمسى بالإنقاذ (rescue).
بعد أن تتم عملية التنوية
ديناميكا الأنيبيبات الدقيقة
من جانب آخر، الأولية، يجب إضافة مونوميرات التيوبيولين إلى البوليمر النامي، عملية إضافة أو إزالة المونوميرات تعتمد على تركيز دايمرات ألفا وبيتا تيوبيولين في المحلول والتي تتعلق بالتركيز الحرج، وهو تركيز الدايمرات في الحالة المستقرة حيث أنه لم يعد يوجد تجميع صافي أو تفكيك في في نهاية الأنيبيب، إذا كان تركيز الدايمر أكبر من التركيز الحرج فإن الأنيبيب تتبلمر وتنمو، أما إذا كان تركيز الدايمر أقل من التركيز الحرج فإن طول الأنايبيب سوف يتناقص.
العقاقير التي ترتيط بالتيوبيلين وأثارها الكيميائية
ومن جهة أخرى، Eribulin يربط النهاية (+) النامية الأنابيب الدقيقة،Eribulin تمارس الآثار المضادة للسرطان من خلال إحداث موت الخلايا المبرمج للخلايا السرطانية التالية لفترات طويلة ولايمكن عكسه للخلايا الت يتمت محاصرتها.
من جهة ثانية، بوليمرات الانابيب الدقيقة حساسة للغاية للعوامل البيئية المختلفة، انخفاض متوى أيونات الكالسيوم الحر وتعمل على زعزعة استقرار الأنابيب الدقيقة، وهذا منع الباحثبن من دراسة البوليمر مبكرا في المختبرات. 7 كما تسبب درجات الحرارة الباردة التحلل السريع للأنابيب الدقيقة. في المقابل، الماء الثقيل يعزز الاستقرار أنيبيب البوليمر.
كذلك، Nocodazole, vincristine, and colchicine، تعطي تأثير عكسي تمنع بلمرة التيوبيولين إلى أنيبيب.
من جانب آخر، مجموعة واسعة من الأدوية قادرة على الربط بالتيوبيولين، وتعديل خصائص تجميعها. هذه الأدوية يمكن أن يكون لها تأثير أقل بكثير على التراكيز داخل الخلايا من التيوبيولين. هذا التدخل مع ديناميكا الأنابيب الدقيقة يمكن أن يكون له تأثير على وقف دورة الخلية أو موت الخلية المبرمج ومع ذلك، هناك بيانات تشير إلى أن تدخل ديناميكات الأنيبيب غير كافية لمنع الخلايا التي تمر بالانقسام. وقد أثبتت هذه الدراسات أن قمع الدينامكيات يحتاج لتراكيزأقل من تلك اللازمة لمنع الانقسام
العقاقير التي يمكن أن تغير ديناميكات الأنابيب الدقيقة تضم:
ومن جهة أخرى، The epothilones, e.g. Ixabepilone، تعمل بطريقة مشابهة لسابقتها.
في هذا الإطار، فئة عقاقير التاكسن المكاغحة للسرطان (paclitaxel (taxol) and docetaxel) تمنع عدم الاستقرار الديناميكي عن طريق تثبيت GDP مرتبط بالتيوبيولين في الأنيبيب الدقيق، وهكذا حتى عندما التحلل من GTP يصل إلى طرف الأنيبي الدقيق، لايوجد عدم بلمرة والأنيبيب لا يتقلص مرة أخرى.
التعديلات
ومن ناحية أخرى، Acetylation أستلة: إضافة مجموعة الاسيتيل ليسين 40 ألفا تويولين. يحدث هذا التعديل على lysine التي يمكن الوصول إليها إلا من داخل الأنيبيب، ويبقى من غير الواضح كيفية وصول الانزيمات بقايا lysine. طبيعة أسيتيل تويولين لا تزال موضع جدل. ومع ذلك، ومن المعروف أن رد الفعل العكسي لأن يحفزه HDAC6.
من جهة ثانية، Polyglycylation: إضافة بوليمر الجلايسين إلى مجموعة جاما الكربوكسيل من أي واحد من الغلوتومات عثر عليها قرب نهاية بيتا تويولين. TTL3 و8 إضافة الجلايسين المتفرعة الأولي، في حين TTL10 يطيل سلسلة polyglycine.
في هذا الإطار، Delta2: إزالة بقايا اخر اثنين من C-terminus من ألفا تيوبيولين. على عكس detyrosination يعتقد أن هذا التفاعل لا رجعة فيه، وقد وثقت فقط في الخلايا العصبية.
ومن جهة أخرى، Polyglutamylation: إضافة بوليمر الغلوتامات إلى مجموعة ال جاما كربوكسيل إلى أي واحدة من خمسة غلوتامات الموجدوة قرب نهاية ألفا تيوبيولين
من جهة ثانية، Detyrosination: إزالة C-terminal tyrosine من ألفا تيوبيولين هذا التفاعل يكشف الغلوتومات على C-terminal الجديدة. كنتيجة غالبا ما يشار الأنابيب الدقيقة التي تراكم هذا التعديل عليها أنه حمض الغلوتاميك-الأنابيب الدقيقة، على الرغم من أن كربوكسي ببتيداز تويولين لم يتم بعد تحديدها، إلا أن tubulin—tyrosine ligase)) (TTL) معروف.
كذلك، على الرغم من أن أغلب الأنابيب الدقيقة لها عمر نصف من 5-10 دقائق إلا أنه يمكن لبعضها أن تبقى مستقرة لعدة ساعات.23الأنابيب الدقيقة المستقرة تراكم التعديلات post على الوحدات الفرعية للتيوبيولين عن طريق عمل إنزيمات مرتبطة بالأنانبيب الدقيقة. ومع ذلكن بمجرد أن تزال البلمرة أغلب التعديلات يتم عكسها عن طريق الإنزيمات قابلة للذوبان. أغلب تفاعلات التعديل بطيئة بينما تفاعلاتها العكسية سريعة، تم الكشف عن التيوبيولين المعدل فقط في الأنابيب الدقيقة المستقرة طويلة العمر.أغلب هذه التعديلات تحدث على C-terminal في ال ألفا تيوبيولين. هذه المنطقة وهي غنية بالغلوتامات سالبة الشحنة، تشكل ذيول غير منظمة نسبيا التي التي تخرج من الأنيبيب الدقيق وتشكل اتصالات مع المحركات. وهكذا، فإنه يعتقد أن تعديلات التويولين تنظم تتفاعل المحركات مع الأنيبيب. عادة ما تكون هذه الأنابيب الدقيقة المعدلة المستقرة موجهة نحو موقع قطبية الخلية في الخلايا البينية، هذه المجموعة الفرعية المعدلة من الانابيب الدقيقة توفر طريق متخصص تساعد في إيصال الحويصلات إلى مناطق الإستقطاب. هذه التعديلات تشمل:
البروتينات المحركة
الوظائف
من جانب آخر، يمكن للأنابيب الدقيقة أن تشكل ركائز للبروتينات المحركة التي تشارك في الوظائف الخلوية الهامة مثل حركة الحويصلات وانقسام الخلايا. على عكس البروتينات المرتبطة بالأنابيب الأخرى البروتينات المحركة تستعمل الطاقة من الناتجة عن التحليل المائي ATP لتوليد شغل ميكانيكي لتحريك البروتين على طول الركيزة، البروتينات المحركات الرئيسية التي تتفاعل مع الأنابيب الدقيقة هي كينيسين والذي يتحرك باتجاه النهاية (+) والداينين الذي يتحرك باتجاه النهاية (-) في الأنيييب.
الأهداب والأسواط
وفي هذا السياق، الأنيبيات الدقيقة تلعب أدوارا هيكلية رئيسية في أهداب الخلايا حقيقية النوى والأسواط. والأسواط تمتد من مراكز تنظيم الأنيبيات الدقيقة وفي هذه الحالة تسمى الأجسام القاعدية. حركة بروتينات الداينين على مختلف الأنيبيات الدقيقة، يسمح العضية لثني وتوليد القوة للسباحة، ونقل المواد خارج الخلية، وأدوار أخرى. بدائيات النوى تمتلك البروتينات مثل تويولين بما في ذلك FtsZ. ومع ذلك، سياط بدائية مختلفة تماما في هيكل من سياط حقيقية النواة ولا تحتوي على هياكل القائم على أنيبيب.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟