تطور العين
المحتويات
قبل الخوض في التفاصيل، تطور العين هو سلسلة من التطورات التي طرأت لتكوين عين الكائن الحي على مدار ملايين السنين. بعض مكونات العين مثل الأصباغ البصرية تبدو وكأنها من أصل مشترك. وعلى الرغم من أن العين البدائية البسيطة الحساسة للضوء ظهرت فجأة قبل التشعب الحيواني إلا أن العين المعقدة المكونة للصور تطورت قرابة 50 إلى 100 مرة من نفس الجينات وبنفس البروتينات في بناءها، عبر فترة زمنية بدأت في العصر الكامبري قبل نحو 540 مليون سنة. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
ومن ناحية أخرى، العين المعقدة تطورت في البداية في بضع ملايين السنين في مرحلة انفجار التطور المعروف بانفجار كامبري. لا يوجد دليل على انه كان يوجد عين قبل العصر الكامبري لكن هناك معدل كبير في التنوع واضح للأحياء وجدت أخفوراتها في طبقات أحجار سجيل صفائحية في طفل برجس في كولومبيا البريطانية بكندا من الكمبري الوسطى وكذلك وجدت أحافير حيوانات بدائية تبدي أجزاء رخوة متحجرة مثلما في طبقات السجيل في خليج سجيل إيمو باي بجنوب أستراليا. يعود ترسب تلك الطبقات الرسوبية إلى العصر الكامبري الأوسط قبل نحو 505 مليون سنة.
علاوةً على ذلك، تكيفت العين لتقابل متطلبات المعيشة من طبيعة الأعضاء التي تحملها، وتلعب الجينات في ذلك دورا هاما. يمكن ان تختلف العيون في شكلها وحدتها وكفاءتها، وفي مدي حساسيتها للموجات الضوئية المختلفة، وكذلك بالنسبة لحساسيتها بالنسبة إلى الرؤية بالنهار وفي الظلام أو الليل. ويعتبر قدرة رؤية العين للألوان قد حدث في العصور الجيولوجية الحديثة.
العيون البدائية
إضافةً إلى ذلك، وحدة معالجة الضوء الأساسية للعيون هي الخلية المستقبلة للضوء، وهي خلية متخصّصة تحتوي على نوعين من الجزيئات في الغشاء: أحدهما بروتين حساس للضوء يدعى الأوبسين، والآخر خضاب يميز الألوان يدعى حامل اللون. سُمِّيَت المجموعات المماثلة لهذه الخلايا «بقعًا عينيةً»، ويُعتَقد بأنّها تطورت بشكلٍ مستقلٍ في مكان ما بين 40 و 65 مرة. أتاحت البقع العينية هذه للحيوانات إدراكًا أوليًا جدًا للاتجاه ولشدة الضوء، ولكنها لم تكن كافيةً للتمييز بين الشيء وما يحيطه.
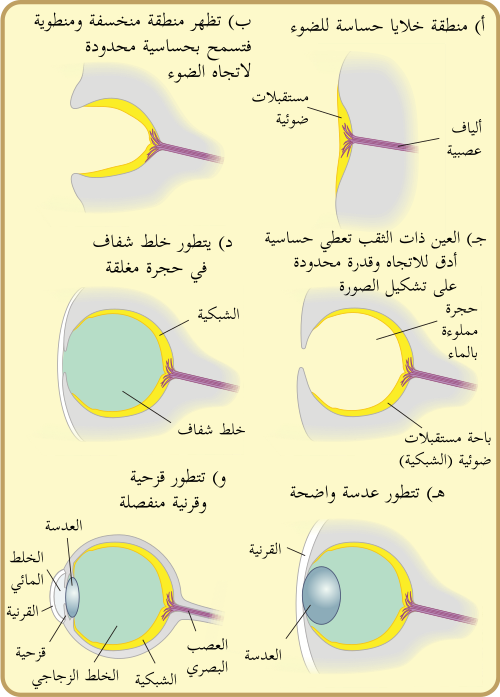
من جهة ثانية، أصبح دور تقليل عرض فتحة الضوء فيما بعد أكثر فعالية من زيادة عمق التقعر في تحسين الدقة البصرية، إذ وصلت الكائنات الحية عبر ذلك إلى التصوير الحقيقي، الأمر الذي سمح بإدراك دقيق للاتجاهات، إضافةً إلى إدراك قليل للأشكال. تتواجد هذه العيون في الوقت الحالي لدى النواتي، لكنها توفر دقة رديئة وتصويرًا خافتًا بسبب افتقارها للقرنية أو العدسة. مع ذلك، لا تزال تُشكّل تحسّنًا كبيرًا مقارنةّ بالعيون البدائية.
من جانب آخر، تكون القرنية -إضافةً للعدسات والخلطين الشفافين- مسؤولةً عن تجميع الضوء، والمساهمة في تركيزه على الجزء الخلفي لشبكية العين. تحمي القرنية مقلة العين وفي الوقت نفسه تكون مسؤولة عن نحو ثلثي إجمالي قوة الانكسار في العين.
إضافةً إلى ذلك، تسارع تطور العين خلال الانفجار الكامبري بدرجة كبيرة، وشمل ذلك تطورًا جذريًا لكل من معالجة الصور وتحديد اتجاه الضوء.
في هذا الإطار، مَنَعَ نمو الخلايا الشفافة التلوث والإصابة بالطفيليات، الأمر الذي سمح لمحتويات الحجرة العينية بالتخصص ببطء ضمن خلط شفاف، وبالتالي امتلاك تحسينات كتصفية اللون، معامل الانكسار الأعلى، إعاقة الأشعة فوق البنفسجية، القدرة على العمل داخل وخارج الماء. قد تكون هذه الطبقة مرتبطة بالانسلاخ الذي تمر به بعض الطوائف الحيوانية، كما في حاملات المخالب مثلًا.
من جانب آخر، أحد الأسباب الرئيسية المحتملة وراء قدرة العيون على التقاط مجموعة أطوال موجية ضيقة ومحددة من الطيف الكهرومغناطيسي -الطيف المرئي، هو تطوّر الحساسية الضوئية لدى أنواعٍ مائيةٍ في البدء؛ فقط الضوء الأخضر والأزرق المرئيين يمكنهما الانتقال عبر الماء. أثّرت خاصية تصفية الضوء هذه ذاتها على الحساسية الضوئية للنبات.
وفي هذا السياق، بدأت هذه النظم الضوئية المعقدة بالتزامن مع التقعّر التدريجي للرقع العينية متعددة الخلايا، مما أتاح القدرة على تمييز اتجاهات السطوع، الأمر الذي ازداد دقةً مع زيادة عمق التقعر. لم تكن الرقع العينية المسطحة فعّالة في تحديد اتجاه الضوء، لأنّ الشعاع الضوئي سينشط نفس الخلايا الحساسة للضوء بغض النظر عن اتجاهه، وعلى ذلك، سمح تقعر العيون المجوّفة بتمايز اتجاهي محدود بسبب اختلاف الخلايا التي سينشطها الضوء اعتمادًا على زاويته.
ومن ناحية أخرى، من الواضح أنّ تطوير نظام بصري يمكنه تمييز اتجاه الضوء ضمن بضعة درجات هو أمر أكثر صعوبة بكثير، إذ تمتلك مثل هذا النظام ست شعب فقط من بين ثلاث وثلاثين شعبة. ومع ذلك، تُشَكِّل هذه الشعب 96٪ من الأنواع الحية.
من جانب آخر، امتلكت الحلزونات القديمة العيون المجوّفة التي ظهرت في العصر الكامبري، ويمكن مشاهدتها اليوم لدى بعض الحلزونات وغيرها من اللافقاريات المعاصرة كالمستورقة. ومع ذلك، كانت هذه العين الأولية مفيدة في تحديد وجود أو غياب الضوء أكثر من تحديدها اتجاهه؛ تغيّر ذلك تدريجيًا مع تعمّق حفرة العين، وتزايد عدد الخلايا المستقبلة للضوء، الأمر الذي زوّد الكائن الحي بمعلوماتٍ بصريةٍ أدق بشكلٍ متزايد.
سرعة التطور
علاوةً على ذلك، ولأن السجل الأحفوري – خاصة في بداية الحقبة الكامبرية – فقير جداً، فإنه من الصعب تقدير سرعة تطور العين. حدوث طفرات صغيرة للنماذج البسيطة وتعرضها للاصطفاء الطبيعي توضح أن عضو الإحساس البصري البدائي المستند إلى أصبغة ضوئية فعالة يمكنه أن يتطور إلى عين معقدة كعين الإنسان في 400.000 سنة على وجه التقريب.
كذلك، تعود أقدم الأحافير التي اكتشفت العين حتى الآن إلى الحقبة الكامبيرية (منذ قرابة 540 مليون سنة). شهدت هذه الحقبة تطور سريع يعرف باسم الانفجار الكامبري. واحدة من الفرضيات عن أسباب حدوث هذا التنوع هي نظرية «المبدال الضوئي» لأندرو باركر والتي تقول أن تطور العين بدأ بسباق تسلح والذي أدى إلى حدوث فيض من التطور. وفي المراحل التي سبقت ذلك يمكن ان تكون الأعضاء ذات قد استعملت مل أجل التنقل السريع عن طريق الرؤية.
العين في مملكة الحيوان
أصل واحد أم عدة أصول؟
ومن جهة أخرى، تلك الأغلبية في المملكة الحيوانية ربما ترجع إلى أن تطور العين كان قد بدأ قبل 540 مليون سنة في تريلوبيت، وان العين ساعدت على تطور السلالات الحيوانية خلال انفجار الكامبري؛ في تلك الفترة حدثت تتطورات كثيرة أدى إلى تنوع كبير في المملكة الحيوانية. وطبقا لفرض «أندرو باركر» عالم التاريخ الطبيعي، أن البصر يؤدي إلى توفيق حيوي لواقع العلاقة بين الحيوان المفترس وغنيمته. كما أن البصر يلعب دورا مهما في تعرف الذكور والإناث للجنس اللآخر في مملكة الحيوان.
من جهة ثانية، لكي نقول أن العين قد تطورت مرة واحدة أو عدة مرات فيتوقف هذا على تعريف العين. أغلب الآلية الجينية التي يحدث بها نمو العين مشتركة بين كل الكائنات الحية التي لديها عين، مما يؤدي إلى استنتاج ان سلفهم استعمل نوعا من الية الحساسية للضوء حتى لو لم يكن لديه عضو بصري. لكن حتى الخلايا المستقبلة للضوء يمكن ان تكون قد تطورت أكثر من مرة من مستقبلات كيميائية مشابهة، وأن الخلايا الحساسة للضوء يمكن ان تكون موجودة قبل الانفجار الكامبري بفترة طويلة. الخصائص الأكثر تشابها - مثل استخدام بروتين غلوبولين العدسة في الرأسقدميات وعدسات الفقاريات - تعكس تبدل دور بروتين من دور اولي إلى وظيفة جديدة داخل العين.
علاوةً على ذلك، نحو 95 % من المملكة الحيوانية له أعين. ومن ضمن الحيوانات ذات الأعين يوجد من الفقريات نحو 40.000 نوع، ومن الرخويات وثنائيات الصدفة والغمديات نحو 100.000 نوع، ومن مفصليات الأرجل القشريات والعنكبوتيات والحشرات أكثر من مليون نوع. يغلب وجود سلالات الحيوانات ذات أعين في المملكة الحيوانية.
علاوةً على ذلك، ويعتبر تطور الحيوانات وزيادة كبرها جسميا خلال تلك المرحلة كان عاملا ضروريا لتطور عينة مركبة. فالشبكية الواسعة المساحة والعدسة الكبيرة والدماغ الكبير الذي به مناطق لمعالجة الإشارات، كل ذلك لا يوجد سوى في حيوانات كبيرة، مثلما تواجدت هذه في العصر الكامبري المبكر في بنيات متعددة مختلفة من الحيوان.
نقرة مركزية
- تكرار (وراثة)
- اعتلال الشبكية بالخلايا المنجلية
- مراجع
تاريخ الأبحاث
إضافةً إلى ذلك، اقترح داروين تدرج من «عصب بصري بالكاد مغلف بالصبغيات دون ان يكون لديه اية آليات أخرى» إلى «درجة أعلى في الكمال» معطيا امثلة لمراحل منقرضة في التطور. اقتراح داروين اكتشف انه صحيح وتحقق الأبحاث الحالية في الآليات الجينية المسئولة عن تطور العين.
وفي هذا السياق، في عصرنا الحاضر تطورت كذلك أبحاث التطور وأصبحت تستعمل وسائل في متناولنا الآن وهي التحليل الجيني لدراسة الآلية المسؤولة عن تطور العين والتطور الحيوي بصفة عامة.
علاوةً على ذلك، التركيب المعقد للعين استُخدِم كدليل في تدعيم نظرية أن العين صممت بواسطة خالق حيث قيل انه من غير الوارد ان تكون قد تطورت بواسطة الاصطفاء الطبيعي. في سنة 1802 أطلق عليها الفيلسوف ويليام بالي «معجزة تصميم». تشارلز داروين نفسه كتب في كتابه أصل الأنواع ان تطور العين بواسطة الاصطفاء الطبيعي لأول وهلة يبدو «سخيفا» لكنه أخذ في الشرح، أنه بالرغم من صعوبة تخيل الفكرة الا أنها معقولة.
تطور آلية التركيز
وفي هذا الصدد، تحرك بعض الأنواع العدسة للخلف والأمام باستخدام عضلة مصرة القزحية، وبعضها يجعل العدسة مسطحة. تنظم آلية أخرى التركيز بشكل كيميائي مستقل عن هذين، عن طريق التحكم في نمو العين والحفاظ على البعد البؤري. إضافةً إلى ذلك، يمكن استخدام شكل البؤبؤ للتنبؤ بالنظام البؤري المُستَخدَم. يمكن أن تشير فرجة البؤبؤ الطولية إلى النظام المشترك متعدد البؤر، بينما يميز البؤبؤ الحلقي عادةً النظام أحادي البؤرة. يتضيق البؤبؤ تحت الضوء الساطع في الشكل الحلقي، مما يزيد البعد البؤري، ويتوسع في الظلام لتقليل عمق التركيز. لاحظ أنّ استخدام آلية التركيز ليست شرطًا. كما يعلم المصورون، تزداد الأخطاء البؤرية مع زيادة الفتحة. وبالتالي، فإنّ عددًا لا يحصى من الكائنات ذات العيون الصغيرة تنشط في ضوء الشمس المباشر، وتعيش بدون آلية تركيز على الإطلاق. لم تظهر وسائل الحاجة للتركيز إلا تدريجيًا، كلما كان النوع أكبر أو عند الانتقال إلى بيئاتٍ أعتم.
- انظر كذلك
- عين الإنسان
- الشبكية
مراحل تطور العين
وفي السياق ذاته، كانت أسلاف العين الأولى المتواجدة لدى الكائنات أحادية الخلية، عبارة عن مستقبلات ضوئية بروتينية حسّاسة للضوء، تسمّى بـ «بقع العين». لا يمكن لبقع العين سوى الإحساس بالسطوع المحيط؛ أي يمكنها التمييز بين الضوء والظلام، وذلك مناسبًا لاستجابة العضويات لطول ساعات النهار (الفترة الضوئية)، وللمزامنة اليومية الخاصة بالنظم اليوماوي. لكنها غير كافية للرؤية، لأنها لا تستطيع التمييز بين الأشكال أو تحديد اتجاه الضوء.
ومن ناحية أخرى، تمتلك العيون -على المستوى الخلوي- تصميمين رئيسيين؛ أحدهما لدى أوليات الفم (الرخويات، الحلقيات، ومفصليات الأرجل)، والآخر لدى ثانويات الفم (الحبليات، وشوكيات الجلد).
وعلى صعيد آخر، تتواجد الأصباغ البصرية في أدمغة الكائنات الأكثر تعقيدًا، ويُعتقَد أنّها تمتلك دورًا في مزامنة التفريخ مع الدورات القمرية. فمن خلال الكشف عن التغييرات الطفيفة في الإضاءة الليلية، يمكن للكائنات الحية مزامنة إطلاق الحيوانات المنوية والبيض لتعزيز احتمال الإخصاب.
كذلك، تتواجد بقع العين في جميع المجموعات الحيوانية الرئيسية على وجه التقريب، وهي شائعة بين الكائنات أحادية الخلية، بما في ذلك الأوغلينا. حيث تقع بقعة الأوغلينا العينية في نهايتها الأمامية، وهي بقعة صغيرة من الصباغ الأحمر الذي يظلل مجموعة من البلورات الحساسة للضوء. تسمح البقعة العينية -مع السوط الموجِّه- للكائن الحي بالتحرك استجابةً للضوء، وغالبًا نحو الضوء الذي يساعدها في عملية التمثيل الضوئي، وكذلك في التنبؤ بالليل والنهار -وهو الوظيفة الأساسية للنظم اليوماوي.
إضافةً إلى ذلك، تحتوي الخلية المستقبلة للضوء على بروتينات الأوبسين، وهي الوحدة الوظيفية للعين التي تقوم بإطلاق الإشارة العصبية استجابةً للضوء. تُحمَل الأوبسينات الحسّاسة للضوء على طبقة شعرية، لتعظيم مساحة السطح، وتختلف طبيعة هذه «الشعرات»، حيث يوجد شكلان أساسيان لذلك، وهي: الزغيبات والأهداب. ففي عيون أوليات الفم هي زغيبات: امتدادات أو نتوءات من الغشاء الخلوي، بينما تكون في عيون ثانويات الفم أهدابًا؛ أي بنىً منفصلة. ومع ذلك، قد يستعمل الكائن الحي نوعًا آخرًا من المستقبلات الضوئية خارج العينين، مثلًا: تستعمل الدودة الحلقية (بلاتينيريس ديوميريلياي- Platynereis dumerilii) خلايا زغيبية في العيون، ولكنها تملك كذلك مستقبلة ضوء هدبية في الدماغ. قد يكون الاشتقاق الفعلي أكثر تعقيدًا، حيث تحتوي بعض الزغيبات على آثارٍ للأهداب. مع ذلك، تدعم الملاحظات الأخرى فرقًا جوهريًا بين أوليات وثانويات الفم. تركّز هذه الاعتبارات على استجابة الخلايا للضوء؛ إذ يستعمل بعضها الصوديوم لإحداث الإشارة الكهربائية التي ستشكل سيالةً عصبيةً، بينما يستعمل البعض الآخر البوتاسيوم. إضافةً إلى ذلك، تقوم أوليات الفم -على العموم- بإحداث الإشارة من خلال السماح للصوديوم بالمرور عبر جدران خلاياها بشكل أكبر، بينما تسمح ثانويات الفم بمرور أقل للصوديوم.
وفي هذا الصدد، يقترح ذلك امتلاك السلالتين نمطًا بدائيًا من المستقبلات الضوئية، وذلك عندما انفصلتا في العصر ما قبل الكامبري، حيث تطوّرت فيما بعد إلى عيونٍ أكثر تعقيدًا بشكلٍ منفصل.
في هذا الإطار، تعتمد الرؤية نفسها على الكيمياء الحيوية الأساسية المشتركة بين كل العيون. ومع ذلك، تختلف الطريقة التي تترجم فيها هذه الأدوات الكيميائية الحيوية بيئة العضوية: تحتوي العين على مجموعة واسعة من البُنى والأشكال، التي تطوّرت جميعها بمرحلة متأخرة جدًا مقارنةً بالبروتينات والجزيئات الأساسية.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟