تقاسم جيني
المحتويات
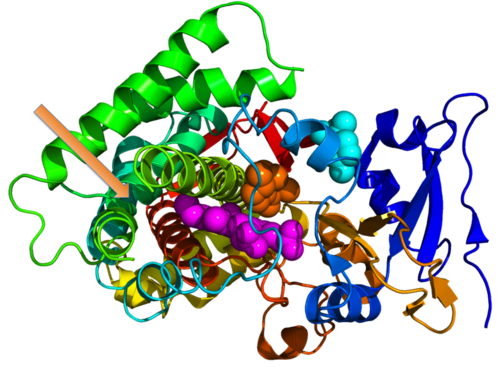
على سبيل التعريف، التقاسم الجيني يكون عندما تؤدي سلسلة ببتيد واحدة، مشفرة بواسطة جين واحد، عده وظائف مختلفة في سياقات بيولوجية مختلفة. تعتبر البروتينات الشفافة أو الكريستالين من أكثر الامثله المدروسة لتقاسم الجينات. تعمل هذه البروتينات، عند الإشارة لها في مستويات منخفضة في الكثير من الانسجة كأنزيمات، ولكن عند الإشارة لها في مستويات عالية وبالذات في نسيج العين، تصبح متجمعة بشكل كثيف مشكله العدسات. مع أن الاعتراف بعمليه تقاسم الجينات لم يكن نسبياً إلا مؤخراً—إلا أن هذا المصطلح قد صيغ في سنة 1988, بعد إيجاد أن البروتينات الشفافة الموجودة في الدجاج والبط مماثله إلى حد ما للإنزيمات التي تم تحديدها — ولقد وجدت الدراسات التي أجريت مؤخراً الكثير من الامثله في جميع أنحاء العالم الحي. وأشارت joram piatigorsky بأن الكثير من البروتينات أو جميعها تبدي تقاسم جينات إلى حد ما، وإن هذا التقاسم الجيني يمثل جانبا رئيسياً من جوانب التطور الجزيئي. وقد يحدث التقاسم الجيني على نطاق واسع من الطبيعة. يختلف تقاسم الجينات عن استخدام جين واحد لتوليد بروتين مختلف عن طريق ربط حمض نووي ريبوزي البديل، إعادة ترتيب الحمض النووي حمض نووي ريبوزي منقوص الأكسجين، وعمليه تجهيز بعد متعدية. وتختلف هذه العملية كذلك عن تعددية الوظائف للبروتين، والتي يكون فيها للبروتين مجالات عدة، يخدم كل منها وظيفة مختلفة. التقاسم الجيني يعني بأن الجين قد يكسب ويحتفظ بوظيفة أخرى بدون ازدواجية الجينات ودون فقدان الوظيفة الأساسية. وتظل مثل هذه الجينات تحت اثنين أو أكثر من الشروط المنتقاة والمختلفة تماما، وفي حالة الكريستالين، لابد أن تحتفظ الجينات بتسلسلات لوظيفة الحفاز ووظيفة تعزيز الشفافية. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
تقاسم الجينات في الكريستالين
وفي السياق ذاته، في حاله الكريستالين، لابد أن تحتفظ الجينات بتسلسلات لوظيفة الحفاز ووظيفة تعزيز الشفافية. ولقد نظر إلى البلورات العدسية الكثيرة بشكل عام كبروتينات ثابتة تخدم الدور البنيوي بشكل دقيق في الشفافية والماء الأبيض، إلا أن الدراسات التي أجريت مؤخراً أظهرت بأن البلورات العدسية أكثر تنوعا مما كان معروفا من قبل وان العديد منها مماثل لإنزيمات التمثيل الغذائي وبروتينات التوتر الموجودة في الكثير من الانسجه. وخلافاً لغيره من البروتينات في أداء مهام ذات درجه عالية من التخصص، مثل الجلوبين والرودهبسون، فان الكريستالين متنوعة جداً وتظهر الكثير من الاختلافات بين الأنواع. وجميع عدسات الفقاريات أساساً تحتوي على ممثلات للبروتينات الشفافة أي وبي/واي، «بروتينات كل الوجود», والتي هي في حد ذاتها غير متجانسة، وأنواع قليله فقط أو مجموعات تصنيفيه مختارة تستعمل بروتينات مختلفة تماماً كالعدسات البلورية. هذه المفارقة في الكريستالين كونها يتم الاحتفاظ بها بدرجة كبيرة في تسلسل بينما تتنوع إلى حدّ كبير في العدد والنوع أظهرت أن الكثير من الكريستالين لديها ادوار حيوية خارج العدسة والقرنية، وتعدديه الوظائف هذه للكريستالين تتحقق عن طريق تقاسم الجينات.
Biol 13, pp. 1824–1835
وفي هذا السياق، Bhat, S. P. and Nagineni, C. N., 1989. αB subunit of lens-specific protein α-crystallin is present in other ocular and non-ocular tissues. Biochem. Biophy. Res. Comm. 158, pp. 319–325
في هذا الإطار، Dubin, R. A., Wawrousek, E. F. and Piatigorsky, J., 1989. Expression of the murine αB-crystallin gene is not restricted to the lens. Mol. Cell. Biol. 9, pp. 1083–1091
وعلى صعيد آخر، Kato, K., Shinohara, H., Kurobe, N., Goto, S., Inaguma, Y. and Ohshima, O., 1991. Immunoreactive αA crystallin in rat non-lenticular tissues detected with a sensitive immunoassay method. Biochim. Biophys. Acta 1080, pp. 173–180
كذلك، Blakytny, R. and Harding, J. J., 1996. Prevention of the fructation-induced inactivation of glutathione reductase by bovine α-crystallin acting as a molecular chaperone. Ophthalmic Res. 28, pp. 19–22
وفي السياق ذاته، King, G. and Holmes, R. S., 1993. Human corneal aldehyde dehydrogenase: purification, kinetic characterization and phenotypic variation. Biochem. Mol. Biol. Int. 31, pp. 49–63
من جهة ثانية، Algar, E. M., Abedinia, M., VandeBerg, J. L. and Holmes, R. S. (1991) Purification and properties of baboon corneal aldehyde dehydrogenase. Proposed UVR protective role. In: Enzymology and Molecular Biology of Carbonyl Metabolism (H. Werner, and D. W. Crabb eds) pp. 53–60. Plenum, New York
كذلك، Wang, K. and Spector, A., 1994. The chaperone activity of bovine α-crystallin. Interaction with other lens crystallins in native and denatured states. J. Biol. Chem. 269, pp. 13601–13608
ومن ناحية أخرى، Holt, W. S. and Kinoshita, J. H., 1973. The soluble proteins of the bovine cornea. Invest. Ophthalmol. 12, pp. 114–126
علاوةً على ذلك، Kegel, K. B., Iwaki, A., Iwaki, T. and Goldman, J. E., 1996. αB-crystallin protects glial cells from hypertonic stress. Am. J. Physiol. 270, pp. C903–C909
دليل تقاسم الجينات بواسطة كريستالين بيتا جاما
من جانب آخر، كريستالين- β/γ مختلفة عن كريستالين α-في كونها عائله كبيره متعددة الجينات. تحتوي البروتينات الأخرى مثل غطاء البوغ البكتيرية، بروتين عفن غروي، وبروتين تمايز البشرة المحدد، على نفس السمات الرئيسية اليونانية وتندرج تحت مجموعه البروتينات β/γ الشفافة. تدعم هذه العلاقة فكره انه قد تم توظيف كريستالين - β/γ من خلال الية تقاسم الجينات. ومع ذلك، باستثناء بعض التقارير، فإن وظيفة عدم الانكسار لكريستالين - β/γ لم يتم العثور عليها بعد.
ادوار الكريستالين العديمة الانكسار في العدسات والقرنية
علاوةً على ذلك، ولئن كان من الواضح بان تقاسم الجينات نتج عنه كون الكثير من البلورات العدسية بروتينات متعددة الوظائف، فانه لايزال غير مؤكد إلى أي مدى ستستعمل الكريستالين خصائصها غير الانكسارية في العدسات، أو على أي أساس تم تحديدها. تعطي كريستالين - αحاله مقنعه لاستخدام البلورة العدسية قدرتها غير الانكسارية في العدسات لمنع تجميع البروتين تحت تأثير مجموعه من الضغوط النفسية ولتحمي ضد تعطيل الإنزيم عن طريق التعديلات الكيميائية التي يمكن القيام بها بعد آخر مرحلة من تخليق البروتين الحيوي مثل.glycationقد تلعب كريستالين- α كذلك دوراً وظيفياً في استقرار واعاده تشكيل الهيكل الخلوي خلال تمايز الخلايا الليفية في العدسات. في القرنية، يقترح كذلك أن يكون ALDH3 مسؤولاً عن امتصاص أشعه الضوء الفوق بنفسجية.
وعلى صعيد آخر، استناداً إلى أوجه التشابه بين العدسات والقرنية، مثل الإنزيمات وفيرة الذوبان في الماء، وكونها مشتقه من الأديم الظاهر، يعتقد أن العدسة والقرنية مشتركه في التطور «كوحدة انكسار». ستقوم عمليه تقاسم الجينات بتعظيم انتقال الضوء والانكسار إلى شبكية العين من قبل وحده الانكسار هذه. وقد أظهرت الدراسات أن الكثير من الإنزيمات /البروتينات القابلة للذوبان في الماء التي أشارت إليها القرنية مطابقة لبلورات عدسيه محدده الاصنوفه، مثل ALDH1A1/ η-crystallin, α-enolase/τ-crystallin, وlactic dehydrogenase/ -crystallin. كذلك، يحتوي نسيج القرنية الطلائي الأبتر، والذي يمكنه أن يتمايز إلى أنماط خلوية لنسيج آخر لتجديد العدسات إلى حدّ كبير، على البروتينات العدسية الشفافة أي، وبي، وواي الموجودة في كل عين، إلى جانب أصنوفه بروتينات مخصصة وهي a-enolase/t-crystallin, فإن التشابه في التعبير عن هذه البروتينات في القرنية والعدسة، سواء في وفره وتخصص الاصنوفه، يؤيد فكره التطور المشترك للعدسة والقرنية عن طريق تقاسم الجينات.
التطور المشترك للعدسة والقرنية من خلال تبادل الجينات
دليل تقاسم الجينات من خلال كريستالين القرنية
من جانب آخر، كما في العدسة، فالقرنية شفافة، وهي النسيج اللوعائي المستمد من الأديم الظاهر المسؤول عن تركز الضوء على شبكه العين. ولكن، خلافاً للعدسة، تعتمد القرنية على سطح الخلية الهوائي وانحناءه من اجل الانكسار. وأظهرت دراسات المناعة المبكرة بان 54 BCP تضم 20-40% من المجموع الكلي للبروتين الذائبة في القرنية البقريه. وقد أشارت الدراسات التي اجريت لاحقاً بان 54 BCP هو ALDH3, ورم وإنزيم عصاري وغريب حيوي محرض موجود في البشر، والفئران، والثديات الأخرى.
دليل تقاسم الجينات عن طريق كريستالين الفا
وفي هذا الصدد، لقد دعمت الكريستالين - a، التي ساهمت في اكتشاف الكريستالين كبروتينات مقترضه، نظرية تقاسم الجينات، وساعدت كذلك في رسم الآليات المستعملة لتقاسم الجينات. هناك نوعان من جينات الكريستالين (αA وαB)، والتي تشكل قرابة 55% متطابقة في تسلسل الأحماض الامينيه. أظهرت الدراسات التعبيرية في الخلايا غير العدسية بأن كريستالين- αB، عدا كونه بروتين عدسه وظيفي، فهو بروتين الصدمة الحرارية الصغيرة الفعال. يحفز كريستالين- αB بواسطة الحرارة وغيرها من الضغوط النفسية، ويمكن أن يحمي الخلايا من درجات حرارة مرتفعه وضغط إفراط التوتر. ويشار إلى كريستالين - αB بدرجة كبيرة كذلك في الكثير من الأمراض، بما في ذلك الأمراض العصبية، الخلايا الليفية مع المرضى الذين يعانون من مرض ويرنرعرض الشيخوخة المبكرة، وتشوهات النمو. فضلًا عن كونه يشار إليه بدرجة كبيرة تحت ظروف غير طبيعيه، فانه يعبر عن كريستالين - αB بشكل جوهري في القلب، وعضلات الهيكل العظمي، والكلى، والرئة وانسجه أخرى كثيرة. وعلى النقيض من كريستالين αB-، وباستثناء انخفاض مستوى التعبير في الغدة الصعتريه، والطحال وشبكه العين، فان كريستالين – αA متخصص بدرجه كبيره للتعبير في العدسات وغير محرض للإجهاد. ومع ذلك، فان كريستالين- αA كاكريستالين- αB، يمكن أن يعمل كذلك كوصي الجزيئية ويحمي ضد الإجهاد الحراري.
العلاقة مع مفاهيم مماثله
ومن جهة أخرى، يرتبط مفهوم تقاسم الجينات، ولكن يختلف عن، مفاهيم عده في مجال علم الوراثة، التطور، والبيولوجيا الجزيئية. يستلزم تقاسم الجينات آثار متعددة من نفس الجين، لكن خلاف تعدد النمط الظاهري، فإنه ينطوي بالضرورة على ادوار متميزة على المستوى الجزيئي. ويمكن للجين أن يحمل متعدد النمط الظاهري عندما يؤثر دور إنزيم فريد على الصفات المظهرية المتعددة؛ يمكن أن تؤثر طفرات الجينات المشتركة على سمه واحده فقط. تعتبر ازدواجية الجينات المتبوعة بطفرة تفريقية ظاهره أخرى يعتقد انها عنصراً أساسيا في تطور وظيفة البروتين، ولكن في تقاسم الجينات، لايوجد هناك اختلافاً في تسلسل الجينات عندما تأخذ البروتينات ادوار جديدة؛ ويتخذ الببتيد الواحد أدواراً جديدة مع الاحتفاظ بالقديم منها. يمكن أن ينتج عن الربط البديل إنتاج الببتيدات المتعددة (ذات الأدوار العديدة) من جين واحد، ولكن بحكم تعريفها، يحتوي تقاسم الجينات على ادوار متعددة من ببتيد واحد.
التنظيم الجيني في الجينات البلورية
كذلك، قد يحدث التوظيف البلوري بسبب تغيرات في تنظيم الجينات والتي تؤدي إلى تعبير عدسه عالي. أحد الامثله على ذلك gluthathione S-transferase/S11-crystallin والتي كانت متخصصة في التعبير عن العدسة بواسطة تغير في تنظيم الجينات وازدواجية الجينات. وتشير حقيقة أن العوامل الترانسكربتي المتشابهة مثل باكس-6, مستقبلات حمض الريتنوك، وتنظيم جينات بلوريه مختلفة، إلى انه قد لعب تعبير محدد لعدسه دور حاسم في توظيف بروتين متعدد الأدوار مثل الكريستالين. قد حدث تطويع الكريستالين على حد سواء مع وبدون ازدواجية الجينات، ويقع ازدواج الجينات المترادف بين بعض الكريستالين مع أحد التكرارات المتخصصة للتعبير عن العدسة. تعتبر كريستالين – α الموجود في كل مكان وكريستالين– δ الموجود في الطيور مثالين على ذلك.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟