جاسمونات
المحتويات
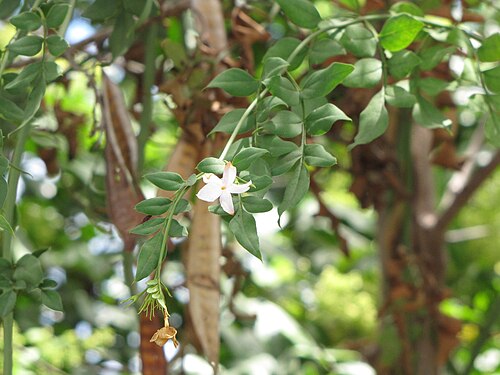
تعريفًا بالموضوع، الجاسمونات (حمض الياسمين) ومشتقاتها هي هرمونات نباتية مبنية من الدهون وتنظم مجموعة واسعة من العمليات في النباتات، بدءًا من النمو والتمثيل الضوئي إلى التطور التناسلي. على وجه الخصوص، تعتبر أحماض الياسمين ضرورية للدفاع عن النبات ضد العواشب ولاستجابات النبات للظروف البيئية السيئة ولأنواع أخرى من التحديات الحيوية وغير الحيوية. يمكن كذلك إطلاق بعض مركبات الغالاكتوز على شكل مركبات عضوية متطايرة (VOCs) للسماح بالتواصل بين النباتات تحسبًا للمخاطر المتبادلة. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
تاريخ
وفي هذا الصدد، أدى عزل ميثيل الجاسمونات (MeJA) من زيت الياسمين المشتق من الياسمين كبير الأزهار إلى اكتشاف التركيب الجزيئي للجاسمونات واسمها في عام 1962 بينما تم عزل حمض الياسمين نفسه من Lasiodiplodia theobromae بواسطة ألديريدج وآخرين في سنة 1971.
التواصل مع مسارات الدفاع الأخرى
وفي هذا السياق، أخيرًا، لا يقتصر الحديث المتبادل على الدفاع: تفاعلات حمض الياسمين وET مهمة في التطوير كذلك، والتوازن بين المركبين ضروري لتطور الخطاف القمي بشكل صحيح في شتلات نبات رشاد أذن الفأر. ومع ذلك، لا يزال هناك حاجة إلى مزيد من البحث لتوضيح الجزيئات التي تنظم مثل هذا التفاعل المتبادل.
من جهة ثانية، يبدو أن الاستجابة للجروح والممرض تتفاعل بشكل سلبي. مثلًا، يؤدي إسكات إنزيم فينيل ألانين الأمونيا (PAL)، وهو إنزيم يقوم بتصنيع المواد الأولية لـ SA، إلى تقليل SAR ولكنه يعزز مقاومة الأعشاب ضد الحشرات. على نحو مماثل، فإن الإفراط في التعبير عن فينيل ألانين الأمونيا يعزز المقاومة المكتسبة الجهازية ولكنه يقلل من استجابة الجرح بعد أكل الحشرات للأعشاب. وبشكل عام، وجد أن مسببات الأمراض التي تعيش في خلايا النباتات الحية تكون أكثر حساسية للدفاعات التي يستحثها حمض الصفصاف، في حين أن الحشرات العاشبة ومسببات الأمراض التي تستفيد من موت الخلايا تكون أكثر عرضة لدفاعات حمض الصفصاف. وبالتالي، فإن هذا التوازن في المسارات يعمل على تحسين الدفاع وتوفير موارد النبات.
إضافةً إلى ذلك، يحدث كذلك تفاعل متبادل بين حمض الياسمين ومسارات هرمونات النبات الأخرى، مثل حمض التسقيط (ABA) والإيثيلين. وتعمل هذه التفاعلات كذلك على تحسين الدفاع ضد مسببات الأمراض والحيوانات العاشبة ذات أنماط الحياة المختلفة. مثلًا، يمكن تحفيز نشاط MYC2 من خلال مسارات حمض الياسمين وحمض التسقيط، مما يسمح له بدمج الإشارات من كلا المسارين. تنشأ عوامل النسخ الأخرى مثل ERF1 نتيجة لإشارات حمض الياسمين والإيثيلين. يمكن لجميع هذه الجزيئات أن تعمل معًا لتنشيط مورثات استجابة الجروح المحددة.
وفي هذا السياق، أحد أفضل الأمثلة التي تمت دراستها للتفاعل المتبادل بين حمض الياسمين يحدث مع حمض الصفصاف. حمض الصفصاف، وهو هرمون، يتوسط الدفاع ضد مسببات الأمراض من خلال تحفيز كل من التعبير عن المورثات المرتبطة بالمرض والمقاومة المكتسبة الجهازية، حيث يكتسب النبات بأكمله مقاومة لمسببات الأمراض بعد التعرض الموضعي لها.
إضافةً إلى ذلك، في حين أن مسار الجاسمونات مهم للاستجابة للجروح، إلا أنه ليس مسار الإشارة الوحيد الذي يتوسط الدفاع في النباتات. لبناء دفاع مثالي وفعال، يجب أن تكون مسارات الدفاع المختلفة قادرة على التواصل المتبادل لضبط وتحديد الاستجابات للتحديات الحيوية وغير الحيوية.
التخليق الحيوي
علاوةً على ذلك، يمكن استقلاب حمض الياسمين نفسه إلى مشتقات نشطة أو غير نشطة. ميثيل حمض الياسمين (MeJA) هو مركب متطاير مسؤول عن التواصل بين النباتات. يؤدي اقتران حمض الياسمين مع إيزوليوسين حمض أميني (Ile) إلى إنتاج JA-Ile ((+)-7-iso-jasmonoyl- -isoleucine)، والذي وجد فونسكا وآخرون عام 2009 أنه يشارك في أغلب إشارات حمض الياسمين - انظر كذلك المراجعة التي أجراها كاتسير وآخرون عام 2008. ومع ذلك، وجد فان بويكيه وديكي (2003) أن انبعاث المواد المتطايرة من رشاد أذن الفأر لا يتطلب JA-Ile، وكذا وجد فاندورن وآخرون (2011) عند مقاومة نبات المغد الأسود للحيوانات العاشبة. يخضع حمض الياسمين لعملية إزالة الكربوكسيل لإعطاء cis-jasmone .
كذلك، بديل=|100x100بك حمض الجاسمونيك (JA)بديل=|100x100بكميثيل JA هياكل مشتقات الجاسمونات النشطةتمت مراجعة التخليق الحيوي بواسطة أكوستا وفارمر 2010 وواسترناك وهاوس 2013 وواسترناك وسونغ 2017 . الجاسمونات (JA) هي أوكسيليبينات، أي مشتقات من الأحماض الدهنية المؤكسدة. يتم تصنيعها حيويا من حمض اللينولينيك في أغشية البلاستيدات الخضراء. يتم البدء في عملية التخليق بتحويل حمض اللينولينيك إلى حمض 12-أوكسو فيتودينويك (OPDA)، والذي يخضع فيما بعد للاختزال وثلاث جولات من الأكسدة لتكوين (+)-7-iso-JA، حمض الياسمين. يحدث تحويل حمض اللينولينيك إلى OPDA فقط في البلاستيدات الخضراء؛ تحدث جميع التفاعلات اللاحقة في البيروكسيسوم.
آلية الإشارة
ومن جهة أخرى، علاوةً على ذلك، سوف يعود MYC2 إلى مستويات التعبير عن JAZ وينظمها، مما يؤدي إلى حلقة تغذية مرتدة سلبية . تتمتع كل عوامل النسخ هذه بتأثيرات مختلفة على مستويات JAZ بعد إشارات JA. وتؤثر مستويات JAZ بدورها على عوامل النسخ ومستويات التعبير الجيني. بعبارة أخرى، فضلًا عن تنشيط جينات الاستجابة المختلفة، يمكن لعوامل النسخ تغيير مستويات JAZ لتحقيق الخصوصية في الاستجابة لإشارات حمض الياسمين.
ومن جهة أخرى، نظرًا لأن JAZ لم يختف في الخلفيات النباتية الطافرة الخالية من coi1، فقد ثبت أن البروتين COI1 يتوسط تحلل JAZ. ينتمي COI1 إلى عائلة بروتينات F-box المحفوظة للغاية، ويقوم بتجنيد ركائز لـ E3 ubiquitin ligase SCF COI1 . المركبات التي تتشكل في النهاية تُعرف باسم مركبات SCF. ترتبط هذه المركبات بـ JAZ وتستهدفه لتحلل البروتيازوم. ومع ذلك، ونظراً للطيف الكبير من جزيئات حمض الياسمين، فإن ليس كل مشتقات حمض الياسمين تنشط هذا المسار للإشارة، ونطاق المشاركين في هذا المسار غير معروف. حتى الآن، ثبت أن JA-Ile فقط ضروري لتحلل JAZ11 بوساطة COI1. يمكن أن ترتبط JA-Ile والمشتقات ذات الصلة هيكليًا بمجمعات COI1-JAZ وتعزز اليوبيكويتين وبالتالي تحلل الأخير.
وفي السياق ذاته، بشكل عام، تعكس الخطوات في إشارات الجاسمونات تلك الخاصة بإشارات الأوكسين: تتضمن الخطوة الأولى معقدات يوبيكويتين ليجاز E3، والتي تقوم بوضع علامة على الركائز باستخدام اليوبيكويتين لوضع علامة عليها للتحلل بواسطة أجسام بروتينية. الخطوة الثانية هي استخدام عوامل النسخ لإحداث تغييرات فسيولوجية. أحد الجزيئات الرئيسية في هذا المسار هو JAZ، الذي يعمل كمفتاح تشغيل وإيقاف لإشارات حمض الياسمين. في حالة عدم وجود حمض الياسمين، ترتبط بروتينات JAZ بعوامل النسخ اللاحقة وتحد من نشاطها. ومع ذلك، في وجود حمض الياسمين أو مشتقاته النشطة بيولوجيًا، تتحلل بروتينات JAZ، مما يحرر عوامل النسخ للتعبير عن الجينات اللازمة في استجابات الإجهاد.
في هذا الإطار، يثير هذا النموذج الميكانيكي احتمالية أن يعمل COI1 كمستقبل داخل الخلايا لإشارات حمض الياسمين. وقد أكدت الأبحاث الحديثة هذه الفرضية من خلال إظهار أن مركب COI1-JAZ يعمل كمستقبل مشارك لإدراك JA. على وجه التحديد، يرتبط JA-Ile بكل من جيب ربط الربيطة في COI1 وامتداد مكون من 20 حمضًا أمينيًا من نمط Jas المحفوظ في JAZ. تعمل بقايا JAZ هذا كسدادة للجيب في COI1، مما يحافظ على JA-Ile مرتبطًا بالجيب. علاوةً على ذلك، قام شيرد ورفاقه Sheard et al 2010 بتنقية مشتركة ثم إزالة بنتاكي فوسفات الإينوزيتول (InsP 5 ) من COI1، مما يدل على أن InsP 5 هو مكون ضروري للمستقبل المشارك ويلعب دورًا في تعزيز مجمع المستقبل المشارك. قد تظهر نتائج شيرد اختلافات في خصوصية الارتباط لمجمعات SCF -InsP -JAZ المختلفة.
وفي هذا السياق، بمجرد التحرر من JAZ، يمكن لعوامل النسخ تنشيط المورثات اللازمة لاستجابة محددة من حمض الياسمين. تنتمي أفضل عوامل النسخ التي تمت دراستها والتي تعمل في هذا المسار إلى عائلة MYC من عوامل النسخ، والتي تتميز بنمط ربط الحمض النووي الحلزوني الحلقي الأساسي (bHLH). تميل هذه العوامل (التي يوجد منها ثلاثة: MYC2، و3، و4) إلى العمل بشكل إضافي. مثلًا، يصبح النبات الذي فقد MYC واحد فقط أكثر عرضة لهجمات الحشرات العاشبة من النبات العادي. إن النبات الذي يفقد هذه المورثات الثلاثة سيكون عرضة للضرر مثل الطفرات coi1، والتي لا تستجيب على الإطلاق لـحمض الياسمين ولا يمكنها بناء دفاع ضد الأعشاب. ومع ذلك، في حين أن جميع جزيئات MYC تشترك في وظائف، فإنها تختلف إلى حدّ كبير في أنماط التعبير ووظائف النسخ. مثلًا، يمتلك MYC2 تأثيرًا أكبر على نمو الجذور مقارنةً بـ MYC3 أو MYC4.
وظيفة
من جانب آخر، ربطت مركبات حمض الياسمين كذلك بموت الخلايا وشيخوخة الأوراق. يمكن أن يتفاعل حمض الياسمين مع الكثير من الكينازات وعوامل النسخ المرتبطة بالشيخوخة. يمكن أن يؤدي حمض الياسمين كذلك إلى موت الميتوكوندريا عن طريق تحفيز تراكم أنواع الأكسجين التفاعلية (ROSs). تؤدي هذه المركبات إلى تعطيل أغشية الميتوكوندريا وإضعاف الخلية عن طريق التسبب في موت الخلايا المبرمج. تشير أدوار حمض الياسمين في هذه العمليات إلى الأساليب التي يستعملها النبات للدفاع عن نفسه ضد التحديات الحيوية والحد من انتشار العدوى.
كذلك، يعمل كل من حمض الياسمين وميثيل حمض الياسمين على تثبيط إنبات البذور غير الخاملة وتحفيز إنبات البذور الخاملة.
إضافةً إلى ذلك، يلعب حمض الياسمين الكثير من الأدوار في نمو الأزهار. تؤدي الطفرات في تخليق حمض الياسمين أو في إشارات حمض الياسمين في نبات رشاد أذن الفأر إلى العقم الذكوري، وعادة ما يكون ذلك بسبب تأخر النمو. تعمل نفس المورثات التي تعزز الخصوبة الذكورية في نبات رشاد أذن الفأر على تعزيز الخصوبة الأنثوية في البندورة. يمكن أن يؤدي الإفراط في التعبير عن كذلك إلى تأخير الإزهار.
إضافةً إلى ذلك، تلعب أحماض الياسمين كذلك دورًا في التكافل بين النباتات والكائنات الحية الدقيقة؛ ومع ذلك، لا يزال دورها الدقيق غير واضح. يبدو أن حمض الياسمين ينظم في الوقت الحالي تبادل الإشارات وتنظيم العقد بين البقوليات والمستجذرة. من ناحية أخرى، يبدو أن مستويات حمض الياسمين المرتفعة تعمل على تنظيم توزيع الكربوهيدرات وتحمل الإجهاد في نباتات الفطريات الجذرية.
ومن جهة أخرى، على الرغم من أن حمض الياسمين ينظم الكثير من العمليات المختلفة في النبات، إلا أن دوره في الاستجابة للجروح هو الأكثر فهمًا. بعد تعرض النبات لجرح ميكانيكي أو آكلات الأعشاب، تُنشط عملية تخليق حمض الياسمين بسرعة، مما يؤدي إلى التعبير عن جينات الاستجابة المناسبة. مثلًا، في البندورة، يؤدي الجرح إلى إنتاج جزيئات دفاعية تمنع هضم الأوراق في أمعاء الحشرات. النتيجة غير المباشرة الأخرى لإشارات حمض الياسمين هي الانبعاث المتطاير للمركبات المشتقة من هذا الحمض. يمكن أن ينتقل ميثيل حمض الياسمين الموجود على الأوراق عن طريق الجو إلى النباتات القريبة ويرفع مستويات النسخ المرتبطة باستجابة الجرح. بشكل عام، يمكن أن يؤدي هذا الانبعاث إلى زيادة تنظيم تخليق حمض الياسمين وإشارات الخلايا، وبالتالي حث النباتات القريبة على تعزيز دفاعاتها في حالة تناول الأعشاب.
في هذا الإطار، تعمل المستويات العالية من حمض الياسمين على تشجيع تراكم بروتينات التخزين؛ حيث تستجيب المورثات التي تشفر بروتينات التخزين النباتية لحمض الياسمين. على وجه التحديد، حمض التوبرونيك، وهو مشتق من حمض الياسمين، يحفز تكوين الدرنات.
في هذا الإطار، من خلال دراسة الطفرات التي تفرط في التعبير عن حمض الياسمين، كان أحد أقدم الاكتشافات التي تم التوصل إليها هو أن حمض الياسمين يمنع نمو الجذور. لم يتم فهم الآلية وراء هذا الحدث بعد، ولكن الطفرات في مسار الإشارة المعتمد على COI1 تميل إلى إظهار تثبيط منخفض، مما يدل على أن مسار COI1 ضروري بطريقة ما لتثبيط نمو الجذور.
من جانب آخر، رُبط حمض الياسمين بتطور النباتات آكلة اللحوم مثل خناق الذباب. تشير الأبحاث إلى أن إعادة استخدام مسار إشارات الجاسمونات، الذي يتوسط الدفاع ضد الحيوانات العاشبة في النباتات غير آكلة اللحوم، قد دعم تطور النباتات آكلة اللحوم. يمكن استخدام الجاسمونات للإشارة إلى إغلاق المصائد والتحكم في إطلاق الإنزيمات وناقلات المغذيات المستعملة في هضم النبات. ومع ذلك، لا تعتمد جميع النباتات آكلة اللحوم على مسار الجاسمونات بنفس الطريقة. تختلف صائد الحشرات بدرجة كبيرة عن نباتات خناق الذباب ونباتات الندية ، وربما تكون قد طورت طرقًا لتنظيم الإنزيمات الهضمية التي لا تعتمد على حمض الياسمين.
إضافةً إلى ذلك، وقد تم ربط حمض الياسمين ومشتقاته كذلك بتطور النبات، والتعايش ، ومجموعة من العمليات الأخرى المدرجة في القائمة أدناه.
دور الهرمون في التسبب بالمرض
ومن ناحية أخرى، أحد الجزيئات المتضمنة في هذا الخليط هو الفيتوتوكسين كوروناتين (COR). تتميز النباتات غير الحساسة لحمض الياسمين بمقاومة عالية لـ P. syringae ولا تستجيب لـ COR. فضلًا عن ذلك، كانت إضافة ميثيل حمض الياسمين كافية لإنقاذ الضراوة في البكتيريا متحولة الكوروناتين. كذلك، أظهرت النباتات المصابة كذلك مورثات لحمض الياسمين والاستجابة للجروح ولكن مستويات أقل من المورثات المرتبطة بالمرض (PR). تشير كل هذه البيانات إلى أن الكوروناتين يعمل من خلال مسار حمض الياسمين لغزو النباتات العائلة. يُفترض أن تنشيط استجابة الجرح يأتي على حساب دفاع مسببات الأمراض. من خلال تنشيط مسار حمض الياسمين للاستجابة للجروح، يمكن لـ P. syringae تحويل الموارد من الجهاز المناعي لمضيفه وإصابة الآخرين بشكل أكثر فعالية.
كذلك، تنتج النباتات N-acylamides تمنح مقاومة لمسببات الأمراض الطفيلية المميتة عن طريق تفعيل تخليق حمض الياسمين وتأشيراته. تدرك النباتات حمض الأراكيدونيك (AA)، وهو نظير المادة السلفية α-LeA الموجودة في الأنواع الحيوانية ولكن ليس في النباتات، ويعمل من خلال زيادة مستويات حمض الياسمين بالتزامن مع مقاومة مسببات الأمراض المميتة. حمض الأراكيدونيك هو جزيء إشارات محفوظ تطوريًا يعمل في النباتات استجابةً للإجهاد بشكل مشابه لما يحدث في الأنظمة الحيوانية.
وعلى صعيد آخر، تسبب بكتيريا Pseudomonas syringae مرض البقع البكتيرية في البندورة عن طريق اختطاف مسار إشارات حمض الياسمين في النبات. تستعمل هذه البكتيريا نظام إفراز من النوع الثالث لحقن مزيج من البروتينات المؤثرة الفيروسية في الخلايا المضيفة.
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟