عائلة راس
المحتويات
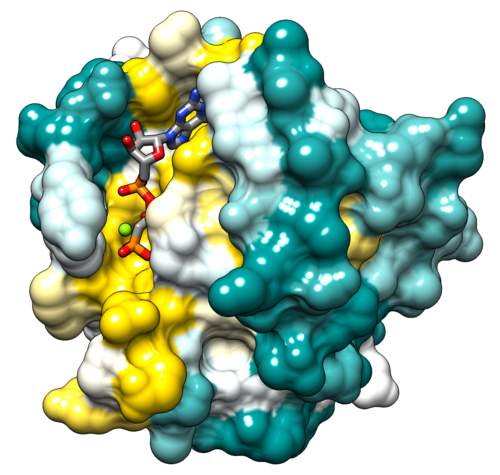
على سبيل التعريف، عائلة راس عائلة بروتينات معربة في جميع خلايا أعضاء الحيوانات. جميع بروتينات هذه العائلة تنتمي إلى فئة من البروتين تسمى GTPase الصغيرة (بالإنجليزية:small GTPase)، وتشترك في نقل الإشارات داخل الخلية (التنبيغ الخلوي). راس هي العضو النموذجي في فصيلة راس (بالإنجليزية:Ras superfamily)، حيث أن أعضاء هذه الفصيلة تتشابه في الهيكل ثلاثي الأبعاد وتقوم بتنظيم سلوكات ووظائف متنوعة داخل الخلية. وتعرض الأقسام التالية جوانب أخرى من الموضوع.
من جهة ثانية، تؤدي الطفرات التي تصيب الجينات المترجمة لبروتينات راس إلى إنتاج بروتين راس دائم النشاط والفاعلية. نتيجة لذلك، تتكون إشارات غير مقصودة وشديدة النشاط داخل الخلية، حتى في حالة غياب إشارات واردة من خارج الخلية تحفز تكونها داخل الخلية. وبما أن هذه الإشارات تؤدي إلى نمو الخلية وانقسامها، فالنشاط الشديد لإشارات راس سوف تؤدي إلى نمو غير طبيعي للخلية الذي ينتج عنه تكون الورم السرطاني.
من جانب آخر، تحتوي خلايا الإنسان على ثلاث جينات مترجِمة لبروتينات راس تسمى «جينات راس الثلاث» وهي:KRAS ،HRAS، وNRAS. تعد هذه الجينات من أكثر الجينات المسرطنة شيوعاً، من خلال الطفرات التي تسبب نشاط دائم لبروتينات راس. تتواجد هذه الطفرات من 20% إلى 25% من مجموع الأورام التي تصيب الإنسان، وفي أنواع معينة من السرطان تتواجد بنسبة 90% (مثل سرطان البنكرياس). ولهذا السبب، يتم دراسة مثبطات راس لاستخدامها كعلاج للسرطان وأمراض أخرى تتصف بإنتاج مفرط لبروتينات راس.
وفي هذا الصدد، بعد أن يتم تشغيل البروتين راس بواسطة الإشارات الواردة، يقوم راس بتشغيل بروتين آخر، والذي بدوره يقوم بتشغيل جينات، حيث أن هذه الجينات لها دور في عمليات: تكاثر الخلايا، وتمايزها، فضلًا عن بقائها على قيد الحياة.
الوظيفة
وفي هذا الصدد، ينشط البروتين راس الكثير من المسارات، التي تمت دراستها بشكل جيد. ينقل هذا البروتين الإشارات باتجاه محدد وينتج عنه نسخ الجينات المعنية بنمو الخلايا وتقسيمها. وينقل البروتين راس اشارات تنشيط مسار آخر هو مسار (PI3K/AKT/mTOR pathway)، الذي يحفز تخليق البروتين والنمو الخلوي، ويحول دون موت الخلايا المنظم.
إضافةً إلى ذلك، تعمل بروتينات راس كمفاتيح جزيئية ثنائية تتحكم في شبكات الإشارات داخل الخلايا. تتحكم بمسارات توصيل الاشارة للتنظيم في مثل هذه العمليات كسلامة الهيكل الخلوي للاكتين، وتكاثر الخلايا، وتمايز الخلايا، والتصاق الخلايا، واستماتة الخلية، وترحيل الخلايا . غالبًا ما يتم تحرير البروتينات ذات الصلة بالبروتين راس وبروتين راس في السرطانات، مما يؤدي إلى زيادة الغزو والانبثاث، وتراجع الموت المنظم للخلية.
التنشيط والغاء التنشيط
وبالتالي، تعمل GAP على تسريع تعطيل نشاط بروتين راس.
ومن جهة أخرى، لأن GTP داخل الخلايا وفيرة نسبة إلى الناتج المحلي الإجمالي (حوالياكثر من 10 أضعاف) [15] GTP في الغالب يقوم بإعادة إدخال جيب الربط النوكليوتيد من البروتبن راس وإعادة تحميل الربيع.
علاوةً على ذلك، البروتين راس هو جي بروتين، أو بروتين ربط غوانوزين - النوكليوتيد. على وجه التحديد، وهو عبارة عن وحدة (بروتين الGTPase) وهي وحدة صغيرة أحادية، وهو مرتبط في بنية الوحدة الفرعية (جα).
إضافةً إلى ذلك، وبالتالي فإن GEF تسهل تفعيل رأس. وتشمل GEFs المعروفة جيدا (Son of Sevenless) و cdc25 التي تتضمن نطاق RasGEF.
علاوةً على ذلك، تعمل البروتينات (ج) كمفاتيح تشوير ثنائية مع حالات «التشغيل» و«ايقاف التشغيل». في حالة «إيقاف التشغيل»، يكون مرتبطًا بنواة ثنائي أكسيد الجوانوزين .
من جهة ثانية، تقوم GEF بتحفيز رد فعل «الدفع والجذب» الذي يطلق الناتج المحلي الإجمالي من بروتين راس. أنها تضاف قريبة من موقع ربط حلقة بي وايون المغنيسيوم وتمنع تفاعل هذه مع أيون فوسفات جاما. البقايا الحمضية (السلبية) في التبديل II «سحب» ليسين في P-lo بعيدا عن الناتج المحلي الإجمالي الذي «يدفع» التبديل بعيدا عن الجوانين. تم كسر جهات الاتصال التي تحتفظ بالناتج المحلي الإجمالي في المكان ويتم إطلاقها في السيتوبلازم.
في هذا الإطار، في التصميم المكوّن من GTP ، فإن راس لديها تقارب كبير للعديد من المستجيبات التي تسمح لها بتنفيذ وظائفها. وتشمل هذه PI3K. GTPases صغيرة أخرى لربط محولات مثل ارفبتين أو أنظمة رسول الثاني مثل انزيم محلقة الأدينيلات.
في هذا الإطار، تم العثور على المجموعة الرابطة راس في الكثير من المستجيبات ويربط دائمًا بإحدى مناطق التحويل، نظرًا لأن هذا التغيير يتغير بين الأشكال النشطة وغير النشطة، قد ترتبط كذلك ببقية سطح البروتين، بروتينات أخرى موجودة قد تغير نشاط بروتينات عائلة راس، مثال واحد هو GDI (مثبط انفصال الناتج المحلي الإجمالي)؛ هذه الوظيفة عن طريق إبطاء تبادل الناتج المحلي الإجمالي ل GTP وبالتالي، طالة أمد حالة عدم نشاط أفراد عائلة راس. قد توجد بروتينات أخرى تزيد من هذه الدورة.
وفي هذا السياق، يحمل هذا الفوسفات الإضافي منطقتين للتبديل في تكوين «الربيع المحمل» (على وجه التحديد، Thr-35 و Gly-60). مناطق تبديل الاسترخاء الذي يسبب تغيير في الحالة إلى غير نشط. وبالتالي، يتم التحكم في تنشيط وتعطيل راس وغيرها من البروتينات (ج) الصغيرة عن طريق التدوير بين الحالتين في (GTP) والحالة الناتجة عن الناتج المحلي الإجمالي (GDP).
من جهة ثانية، يتم تسهيل عملية تبادل النوكليوتيدات المربوطة من قبل عوامل تبادل النوكليوتيدات في الغوانين (GEF), و GTPase لتنشيط البروتينات (GAPs). حسب تصنيفها، فإن بروتين راس لها نشاط بروتين الGTPase جوهري، ما يعني أن البروتين بمفرده يقوم بتحلل مائي لجزيء GTP إلى إجمالي الناتج المحلي (GDP). ومع ذلك، فإن هذه العملية بطيئة للغاية بالنسبة للوظيفة الفعالة، وبالتالي فإن GAP في راس، RasGAP ، قد ترتبط وتثبّت الماكينة التحفيزية في بروتين راس، توفير بقايا تحفزية إضافية («إصبع أرجينين») بحيث يتم وضع جزيء الماء على النحو المحب للنواة على فوسفات جاما من GTP. يتم تحرير الفوسفات غير العضوي ويكون جزيء الراس مرتبطًا بالناتج المحلي الإجمالي. ونظرًا لأن الشكل المحدد للناتج المحلي الإجمالي هو «إيقاف» أو «غير نشط» للإشارة، فإن GTPase Activating Protein يعطل رأسه عن طريق تنشيط نشاط GTPase.
وعلى صعيد آخر، بينما في حالة «التشغيل»، يكون مرتبطا بغوانوسين ثلاثي الفوسفات (بالإنجليزية: (guanosine triphosphate (GTP)، التي لديها مجموعة فوسفات إضافية مقارنة بالناتج المحلي الإجمالي (GDP).
ومن جهة أخرى، يحدد التوازن بين نشاط GEF و GAP وضع النوكليوتيد الغوانين في البروتين راس، وبالتالي تنظيم نشاط البروتين راس.
بروتينات راس والسرطان
ومن ناحية أخرى، حدوث الطفرات في عائلة راس من الجينات المسرطنة والتي تضم (H-RAS وN-RAS و K-RAS) عملية شائعة جدا، وجدت هذه الطفرات في 20% الي 30% من مجموع الاورام التي تصيب الإنسان. نتيجة لذلك فمن الطبيعي التوقع بان العلاج الدوائي الذي يحد من نشاط بروتين راس يمثل طريقة لتثبيط بعض أنواع السرطان في الإنسان. الطفرات النقطية الناتجة عن خلل في نيكليوتيد واحد في جينات راس هو الحالة الغير طبيعية الأكثر شيوعا في الجينات المسرطنة عند الإنسان. مثبط بروتين راس trans- farnesylthiosalicylic acid (FTS, Salirasib)) اظهر اثر كبير في كمضاد لتطور الورم في الكثير من الخلايا السرطانية.
بنية بروتينات راس
من جهة ثانية، بروتين راس كذلك يحتوي [أيون المغنيسيوم] الذي يساعد على تنسيق ربط النوكليوتيدات.
في هذا الإطار، العنصر (ج4) يحتوي على نموذج (LVGNKxDL)، ويوفر تفاعلًا محددًا مع الجوانين.
من جهة ثانية، حالة بروتين راس القائمة على بروتوكول GTP هي حالة «التشغيل»، والحالة المرتبطة بالناتج المحلي الإجمالي (GDP) هي حالة «التعطيل».
وعلى صعيد آخر، العنصر (ج1) أو P-loop، إلى فوسفات بيتا من الناتج المحلي الإجمالي و GTP.العنصر (ج2) والمعروف كذلك بالمفتاح 1، يحتوي على ثريونين 35، الذي يربط الفوسفات الطرفي (γ-phosphate) لـ GTP وأيون المغنيسيوم ثنائي التكافؤ المتواجد في الموقع النشط.العنصر (ج3)، الذي يُعرف كذلك بـالمفتاح 2، يحتوي (DXXGQ), (D) هو الاسبرتيت 57، وهو محدد لربط الغوانين مقابل الأدينين، و (Q) هو جلوتامين 61، وهو المتبقي الحيوي الذي ينشط جزيء ماء محفز للتحلل بالماء من (GTP) إلى إجمالي الناتج المحلي
علاوةً على ذلك، يحتوي العنصر (ج5) على تسلسل إجماع (SAK. A) وهو الانيين 146، الذي يوفر خصوصية لغوانين بدلا من الأدينين.
في هذا الإطار، يمثل كل من المفتاح 1 والمفتاح 2، (ج2)و (ج3)، الأجزاء الرئيسية من البروتين التي تتحرك عند التنشيط بواسطة GTP.
من جهة ثانية، تحتوي المجموعة (ج) على خمسة مجموعات جزئية من (ج) التي تربط الناتج المحلي الإجمالي GTP مباشرة.
إضافةً إلى ذلك، يحتوي البروتين على ستة خيوط بيتا (بالإنجليزية: beta strands) وخمسة لوالب الفا (بالإنجليزية:alpha helices) كما يتركب من مجموعتين رئيسيتين، المجموعة (ج) تتكون من 166 حمض اميني، ما يقارب 20 كيلودالتون، الذي يربط النوكليوتيدات الغوانوزينية، ومنطقة استهداف الغشاءالطرفي (سي) (CAAX-COOH)، المعروف كذلك باسم (CAAX box)، وهو معدل للدهون بواسطة فرانسيل ترانسفيراز (بالإنجليزية: farnesyl transferase) و RCE1 و ICMT.
وفي هذا الصدد، هذا التغير التطابقي من خلال (ج2) و (ج3) هو ما يتوسط الوظيفة الأساسية كبروتين تبديل جزيئي.
راس المنشط اساسا
إضافةً إلى ذلك، النهاية الطرفية 61 هي المسؤولة عن حفظ توازن المرحلة الانتقالية لتحلل GAP. لانه عموما التحفيز عن طريق الانزيم يتحقق من خلال تقليل الطاقة بين المواد المتفاعلة والنواتج، فان حدوث طفرة في Q61 إلى K يؤدي بالضرورة الي خفض مستوى تحلل Ras GTP الي مستويات لا معنى لها من الناحية الفسيولوجية.
إضافةً إلى ذلك، وهو الذي يحتوي على على طفرات تمنع تحلل GTP وبالتالي تجعل راس في حالة تنشيط وتشغيل دائمة.
إضافةً إلى ذلك، الطفرات الأكثر شيوعا تتواجد على جزيء G12 في P-loop وعلى جزيء الحفاز Q61.
إضافةً إلى ذلك، طفرة تحول الجلايسين (glycine) الي فالين (valine)على النهاية الطرفية 12 يحول مجال GTPase في Ras الغير حساس إلى غير فعال من خلال GAP مما يجعلها عالقة في حالة تنشيط دائمة. يحتاج بروتين راس إلى GAP للتثبيط لانه عبارة عن حفاز ضعيف نسبيا بمفرده، على عكس البروتينات الأخرى التي تحتوي على G-domain مثل الوحدة الفرعية الفا ل heterotrimeric G proteins.
التنشيط الغير مناسب
وعلى صعيد آخر، اخيرا، يمكن ان يتم تنشيط الجينات السرطانية راس من خلال الطفرات النقطية بحيث ان تفاعلات GTPase لا يمكن تحفيزها من خلال GAP وهذا يزيد العمر النصفي ل Ras-GTP النشط والذي حدثت فيه الطفرة.
ومن جهة أخرى، لقد اظهر التنشيط الزائد والغير مناسب لجينات راس دورا رئيسيا في نقل الاشارات الخاطئة التي تؤدي بدورها إلى نمو الخلايا وانقسامها بدرجة كبيرة وهذا النمو الغير طبيعي ينتج عنه تكون الورم السرطاني. الطفرات التي تحدث في عدد من الجينات المختلفة كما الحال في الجينات المترجمة لبروتين راس يمكن ان يكون لها هذا الاثر.الجينات السرطانية (Oncogenes) مثل p210BCR-ABL أو مستقبلات النمو erbB عبارة عن اشارات تنشيط قبلية ل راس. لذلك فانه إذا كانت منشطة اساسا فإن اشاراتها سوف تنتقل من خلال راس. يقوم الجين المثبط للورم NF1 بتشفير Ras-GAP حيث ان الطفرة في الورم الليفي العصبي (neurofibromatosis) تعني ان راس اقل عرضة للتثبيط وعدم التفعيل. ممكن ان يحدث تضخم راس، لكن هذه الحالة تحدث فقط في بعض الاورام.
ارتباطها على الغشاء
وفي السياق ذاته، يرتبط بروتين راس في الغشاء الخلوي نتيجة لعملية إضافة البرينيل أو البرنلة (بالإنجليزية:Prenylation) وعملية إضافة البالميتول (بالإنجليزية: Palmitoylation) ل (HRAS و NRAS)، أو نتيجة لمزيج من عملية البرنلة (بالإنجليزية:Prenylation) وتسلسل متعدد القواعد مجاور لمكان عملية البرنلة (بالإنجليزية:Prenylation) ل (KRAS). النهاية الطرفية سي (C-terminal) CaaX box لبروتين راس في البداية يتم التعديل عليها من خلال عملية إضافة farnesyl group لجزيء الحمض الاميني سيستين (cysteine) في السايتوسول (cytosol)، مما يسمح لبروتين راس بالدخول الي غشاء الشبكة الاندوبلازمية والاغشية الخلوية الأخرى بسهولة. ثم يتم فصل ثلاثي الببتيد (aaX) عن النهاية الطرفية سي (C-terminal) من خلال استخدام انزيمات خاصة لقطع البروتين ثم يتم إضافة مجموعة ميثل الي النهاية الطرفية سي (C-terminal) الجديدة من خلال الميثيل ترانسفيريز (بالإنجليزية: methyltransferase). في هذه المرحلة يتم الانتهاء من معالجة KRas. التفاعلات الحركية الكهربائية بين الشحنات الموجبة للقواعد المسلسلة والشحنات السالبة في الجزء الداخلي من الغشاء البلازمي مسؤولة عن بقائها مستقرة على سطح الخلية بشكل ثابت. يتم التعديل كذلك على NRAS و HRAS على سطح جهاز جولجي من خلال عملية البالميتوليشن (بالإنجليزية: Palmitoylation) لواحد أو اثنين من جزيئات الحمض الاميني سيستين (cysteine). وبذلك تصبح البروتينات مثبتة على الغشاء ويتم نقلها الي الغشاء البلازمي عن طريق حويصلات في المسار الافرازي. عملية الديبالميتوليشن (بالإنجليزية: Depalmitoylation) عن طريق acyl-protein thioesterases تسمح باطلاق سراح البروتين من الغشاء من اجل السماح له بالدخول الي دورة أخرى من عمليتي البالميتوليشن والديبالميتوليشن. وهذه الدورة المستمرة تمنع تسرب NRAS وHRAS للاغشية الأخرى وتحافظ على استقرارها على سطح جهاز جولجي، المسار الافرازي والغشاء الخلوي
علاجات السرطان التي تستهدف بروتين راس
في هذا الإطار، لقد لوحظ ان الريوفايروس (Reovirus ) قد يكون علاجا فعالا للسرطان عندما اوضحت الدراسات انه يتكاثر بشكل جيد في بعض الخلايا السرطانية. يتكاثر بشكل خاص في الخلايا التي تحتوي على مسار راس نشط (وهو مسار خلوي يدخل في نمو الخلية وتمايزها). يتكاثر الريوفايروس (Reovirus ) ويقتل الخلايا السرطانية التي تحتوي على بروتين راس نشط، عندما تموت الخلايا فاين بقايا الفيروس لها الحرية والإمكانية بالدخول الي خلايا سرطانية أخرى. يعتقد ان هذه الدورة من الإصابة والتكاثر وموت الخلايا تتكرر حتى يتم تدمير جميع الخلايا السرطانية التي يتواجد فيها مسار نشط من بروتين راس.
إضافةً إلى ذلك، هناك فايروس اخر يستهدف الخلايا السرطانية التي تحتوي على مسار راس نشط ويقوم بتحليل الورم، وهو النوع الثاني من فيروس الهربس البسيط (HSV-2). الطفرات النشطة في بروتينات راس تلعب دورا في قرابة ثلثي أنواع السرطانات التي تصيب الإنسان وتتضمن السرطانات القابلة للانتشار. ريوليوسين (Reolysin ) وهو نوع من أنواع الريوفايروس و FusOn-H2 المستعمل في الوقت الحالي في التجارب السريرية أو قيد التطوير لعلاج أنواع مختلفة من السرطان. علاوةً على ذلك العلاج القائم على siRNA مضاد الطفرات في K-RAS (G12D) المسمى siG12D LODER في الوقت الحالي هو قيد التجارب لعلاج سرطان البنكرياس متقدم المراحل.
أفراد عائلة راس
ومن ناحية أخرى، ابرز أعضاء هذه الفصيلة التي تم ملاحظتها سريرياK RAS وNRAS وHRAS نتيجة لمشاركتها ودورها في أنواع عديدة من السرطان.
وفي هذا الصدد، إضافة إلى ذلك هناك افراد أخرى من هذه الفصيلة:DIRAS1؛ DIRAS2؛ DIRAS3؛ ERAS; GEM; MRAS; NKIRAS1؛ NKIRAS2; NRAS; RALA; RALB; RAP1A; RAP1B; RAP2A; RAP2B; RAP2C; RASD1; RASD2; RASL10A; RASL10B; RASL11A; RASL11B; RASL12; REM1; REM2; RERG; RERGL; RRAD; RRAS; RRAS2
تاريخ
ومن جهة أخرى، عام 1982 جينات راس المفعلة والمحولة اكتشفت في جسم الإنسان داخل الخلايا السرطانية من قبل جيفري م. كوبر في هارفرد، ماريانو بارباسيد وستيوارت أ. آرونسون في منظمات الصحة الوطنية، روبرت واينبرغ في معهد ماساتشوستس للتكنولوجيا، ومايكل ويغلر في مختبر كولد سبرينغ هاربور. لاحقًا تم التعرف على الجين الثالث على يد مجموعة من الباحثين: روبن فايس في معهد أبحاث السرطان، ومايكل ويغلر في مختبر كولد سبرينغ هاربور، سمي هذا الجين بNRAS لدوره المهم في تحديد طبيعة الورم الخبيث الذي يصيب الخلايا العصبية البشرية (Neuroblastoma).
ومن ناحية أخرى، جينات راس الثلاثة تشفر بروتينات في غاية التشابه، تتكون من سلاسل من 188 إلى 189 حمض أميني. رموز الجينات الخاصة بهذه البروتينات هي: HRAS، KRAS، و NRAS.KRAS ينتج النظائر K-Ras4A و K-Ras4B من خلال الروابط التجديلية.
ومن جهة أخرى، تم اكتشاف أول جينَين مترجمَين لبروتنيات راس (HRAS وKRAS) من خلال الدراسات التي أُجريت على نوعين من الفيروسات المسببة للسرطان، هما: فيروس هارفي وفيروس كريستن، من قبل إدوارد م.سكولنك وزملاؤه في منظمات الصحة الوطنية (National Institutes of Health). لقد اكتُشفت هذه الفيروسات داخل الفئران في السيتينات من القرن الماضي من قبل جينيفر هارفي وويرنر كريستن، على التوالي، وعليه سمي بورم الفئران الخبيث (ساركوما الفئران).
📝 هل في هذه المقالة خطأ؟
إذا وجدت معلومة تحتاج تصحيحاً أو إضافة، أو أردت حذف المقالة، أرسل لنا طلباً وسنراجعه.
ما رأيك في هذه المقالة؟